
Herba Cistanche-Extrakt verbessert den mitochondrialen Glutathionstatus und die Atmung in Rattenherzen, mit möglicher Induktion von Entkopplungsproteinen
Mar 04, 2022
Ada Hoi-Ling Siu & Kam Ming Ko
Um diesen Artikel zu zitieren: Ada Hoi-Ling Siu & Kam Ming Ko (2010) Herba Cistanche-Extrakt verbessert den mitochondrialen Glutathionstatus und die Atmung in Rattenherzen, mit möglicher Induktion von Entkopplungsproteinen, Pharmaceutical Biology, 48:5, 512-517, DOI: 10.3109/13880200903190985
Um auf diesen Artikel zu verlinken: https://doi.org/10.3109/13880200903190985
Kontakt:joanna.jia@wecistanche.com
Abstrakt
KräuterCistanche, ein chinesisches Kraut, das aus der ganzen Pflanze gewonnen wirdCistancheDeserticolaEs wurde gezeigt, dass YC Ma (Orobanchaceae) die mitochondriale ATP-Erzeugung verstärkt und ex vivo bei Ratten vor myokardialer Ischämie/Reperfusion (I/R)-Schädigung schützt. Um die Rolle der Mitochondrien bei der kardioprotektiven Wirkung von Herba Cistanche zu definieren, haben wir die Wirkung von Herba untersuchtCistancheBehandlung des mitochondrialen Glutathionstatus und funktioneller Parameter in Rattenherzen. Behandlung mit einem Methanolextrakt von HerbaCistancheverbesserter mitochondrialer Glutathionstatus, verringerter mitochondrialer Ca2 plus-Gehalt und erhöhtes mitochondriales Membranpotential. Außerdem wurde in aus Herba isolierten Mitochondrien eine Zunahme der Respiration im Zustand 4 beobachtet, was auf eine ungekoppelte Respiration hinweistCistanche-behandelte Rattenherzen. Die Verbesserung des mitochondrialen Glutathionstatus und der Funktionsfähigkeit sowie die mutmaßliche Induktion von Entkopplungsproteinen können mit der von Herba gebotenen Kardioprotektion zusammenhängenCistancheBehandlung zum Schutz vor I/R-Verletzungen.

Cistanchehat viele gesundheitliche Vorteile
Schlüsselwörter:KräuterCistanche; Mitochondrien; Glutathion; Kalzium; Membranpotential; mitochondriale Atmung; Entkopplung
Einführung
Die Reperfusion eines zuvor ischämischen Myokards verursacht eine Reihe von mitochondrialen Veränderungen, einschließlich einer erhöhten Produktion reaktiver Sauerstoffspezies (ROS), einer Ca2-Plus-Überladung und einer Abnahme der Produktion von Adenosintriphosphat (ATP), die alle zu Nekrose und/oder Apoptose führen können. vermittelter Zelltod (Redegeld et al., 1992; Lemasters et al., 1998). Da Mitochondrien eine entscheidende Rolle bei der Bestimmung des Schicksals von Kardiomyozyten nach der Ischämie/Reperfusion (I/R)-Herausforderung spielen, sollte der Schutz vor myokardialer I/R-Schädigung daher auf die Erhaltung der strukturellen und funktionellen Integrität der Mitochondrien abzielen. Die Aufrechterhaltung des mitochondrialen Energiestoffwechsels nach der I/R-Provokation ist besonders wichtig, da die kontraktile Herzfunktion fast vollständig von mitochondriengeneriertem ATP abhängt. Kardiomyozyten, die leben, sich aber nicht zusammenziehen, sind von sehr geringem Nutzen.
Herba Cistanche, die ganze getrocknete Pflanze von Cistanche deserticola YC Ma (Orobanchaceae), ist eine parasitäre Pflanze, die hauptsächlich in den Wüstengebieten Nord- und Nordostchinas wächst. Herba Cistanche, in der chinesischen Medizin als „Yang-belebendes“ Kraut eingestuft, wird bei Niereninsuffizienz, weiblicher Sterilität und Verstopfung aufgrund von Darmtrockenheit bei senilen Patienten verschrieben (Chen, 1998). Frühere Studien in unserem Labor haben gezeigt, dass ein Methanolextrakt von Herba Cistanche die myokardiale ATP-Erzeugungskapazität erhöht (Leung & Ko, 2008) und bei Ratten vor myokardialer I/R-Verletzung schützt (Leung, 2006). Während die Stimulierung der ATP-Erzeugungskapazität mit einer Verbesserung des mitochondrialen Elektronentransports einherging (Leung & Ko, 2008), war die Kardioprotektion gegen I/R-Schädigung durch die Behandlung mit Herba Cistanche mit einer Abnahme der myokardialen ATP-Mangel verbunden (Leung, 2006). Um die Rolle der Mitochondrien bei der kardioprotektiven Wirkung von Herba Cistanche zu definieren, untersuchten wir in der vorliegenden Studie die Wirkung der Behandlung mit Herba Cistanche auf den mitochondrialen Glutathionstatus, den Ca2+-Gehalt, das Membranpotential und die Atemfrequenz in Rattenherzen.

ZistancheDeserticola-Vorteile
Materialen und Methoden
Pflanzliches Material
Herba Cistanche wurde von einem lokalen (in Hongkong ansässigen) Kräuterhändler (Lee Hoong Kee) gekauft. Das Kraut wurde vom Lieferanten authentifiziert und ein Belegexemplar (HKUST00301) wurde beim Department of Biochemistry der Hong Kong University of Science & Technology (HKUST) hinterlegt. Die Methanolextraktion des Krauts wurde durchgeführt, basierend auf früheren Studien, die darauf hinwiesen, dass ein solcher Extrakt die mitochondriale ATP-Erzeugung verstärkte und vor I/R-Verletzungen in Rattenherzen schützte (Leung, 2006; Leung & Ko, 2008). Kurz gesagt, Herba Cistanche (400 g) wurde in kleine Stücke geschnitten und durch Erhitzen unter Rückfluss in 300 ml Methanol bei 60 Grad für 2 Stunden extrahiert, wie zuvor beschrieben (Leung & Ko, 2008). Der Vorgang wurde zweimal wiederholt. Der gesammelte Extrakt wurde durch Verdampfen des Lösungsmittels unter vermindertem Druck getrocknet; die Ausbeute betrug 42 Prozent (w/w) bezogen auf die Rohkrautmenge. Der Extrakt wurde bis zur Verwendung bei 4 Grad gelagert. Obwohl chinesische Kräuter traditionell für den oralen Verzehr mit Wasser extrahiert werden, wurde in unserer früheren Studie aus praktischen Gründen bei der Verarbeitung und Lagerung von Proben Methanol verwendet (Yim & Ko, 2002), und wir fanden die Methanolextraktion in jeder Hinsicht zufriedenstellend.
Tierpflege und medikamentöse Behandlung
Erwachsene weibliche Sprague-Dawley-Ratten (8–10 Wochen alt; 2{{10}}0–230 g) wurden in einem feuchtigkeitskontrollierten Raum mit 12 Stunden Dunkelheit/Licht gehalten Zyklus, bei etwa 22 Grad, und Nahrung und Wasser nach Belieben erlaubt. Die Tiere wurden zufällig verschiedenen Gruppen zugeteilt, mit fünf Tieren in jeder Gruppe. Ratten erhielten den Herba Cistanche-Extrakt intragastral (0,2 g/ml in Wasser) mit 0,5 g/kg oder 1,0 g/kg an 3 aufeinanderfolgenden Tagen. Die (unbehandelten) Kontrolltiere erhielten nur Wasser. Vierundzwanzig Stunden nach der letzten Dosierung wurde Herzkammergewebe von anästhesierten Tieren zur biochemischen Analyse entnommen. Alle experimentellen Protokolle wurden vom Research Practice Committee, HKUST, genehmigt.
Vorbereitung von mitochondrialen Fraktionen
Zerkleinertes Herzkammergewebe (~{{0}},6 g) wurde in einem 10--fachen (w/v) Überschuss an eiskaltem Saccharosepuffer [0,32 M Saccharose, 1 mM Ethylendiamintetraessigsäure] homogenisiert (EDTA), 50 mM Tris/HCl; pH 7,4] unter Verwendung eines Teflon-Glas-Homogenisators bei 4000 U/min mit 25–30 Hüben. Mitochondrienpellets wurden aus Gewebehomogenaten durch Zentrifugation bei 800 × g bei 4 Grad für 30 Minuten hergestellt, und die Reinheit wurde durch Messung der relativen spezifischen Aktivitäten von Succinatdehydrogenase und Lactatdehydrogenase im Überstand bzw. Pellet bestimmt, wie zuvor beschrieben (Evans, 1992). Mitochondriale Pellets wurden in 1 ml des Homogenisierungspuffers suspendiert.
Messung des mitochondrialen Gehalts an reduziertem Glutathion und oxidiertem Glutathion
Mitochondriale reduzierte Glutathion (GSH)-Spiegel wurden enzymatisch unter Verwendung von 5,59-dithiobis(2- nitrobenzoesäure) (DTNB) und Glutathionreduktase (GR) in einem modifizierten Protokoll von Griffith (198{{17} }). Ein Aliquot (210 µL) der mitochondrialen Fraktion wurde mit 90 µL 10-prozentiger (v/v) 5--Sulfosalicylsäure (SSA) und der gemischt Das Gemisch wurde 10 min bei 600 × g zentrifugiert. Um die Konzentrationen an oxidiertem Glutathion (GSSG) zu messen, wurden 100-µl-Mengen von SSA-Überständen mit 10 µl 20-prozentigem (w/v) 2--Vinylpyridin und 10 µl 60-prozentigem (v/v) Triethanolamin in Mikrozentrifugenröhrchen gemischt. Jedes Röhrchen wurde mindestens 1 h bei Raumtemperatur stehengelassen. Ein Reaktionsgemisch, enthaltend 0,63 mM DTNB und 0,053 mM NADPH (reduziertes Nicotinamid-Adenin-Dinukleotid-Phosphat) in Phosphatpuffer (0,1 M, mit 5 mM Na 2 EDTA; pH 7,5) wurde bei 30 Grad für 2 Minuten vorinkubiert. Ein Aliquot (30 ul) entweder eines SSA-Probenüberstands (Gesamtglutathion) oder einer GSSG-Probe wurde in eine Vertiefung einer 96--Well-Mikrotiterplatte und 180 ul der vorgewärmten Reaktionsmischung, die 0,525 U enthielt, gegeben /ml GR, wurde als nächstes hinzugefügt. Absorptionsänderungen bei 412 nm wurden spektrophotometrisch für 5 min überwacht. Die Konzentrationen von GSH und GSSG wurden aus Kalibrierungskurven unter Verwendung von GSH und GSSG [gelöst in 3 Prozent (w/v) SSA] als Standards geschätzt und als nmol/mg Protein ausgedrückt. Die GSH-Spiegel wurden geschätzt, indem die doppelte Menge an GSSG von der des Gesamt-GSH abgezogen wurde.
Messung des mitochondrialen Ca2 plus-Gehalts
Der mitochondriale Ca2+-Gehalt wurde unter Verwendung einer Ca2+-empfindlichen Fluoreszenzsonde, Fluo-5N AM-Ester (Molecular Probes, Eugene, OR), unter Verwendung des Victor2 Multi-Label Counter (Modell 1420; PerkinElmer, Turku, Finnland), wie in Menze et al. (2005). Die Ca2-plus-Dissoziationskonstanten (Kd-Werte) wurden mit einem Ca2-plus-Kalibrierkit bestimmt, das im Konzentrationsbereich von 1–1000 µM gültig ist; Die geschätzten Kd-Werte betrugen 90–100 µM, mit hoher Zuverlässigkeit, gemäß den Daten des Kit-Herstellers. Ein Aliquot (25 µl) der mitochondrialen Fraktion (0,5 mg Protein/ml Endkonzentration) wurde mit 25 µl Inkubationspuffer {100 mM KCl und 30 mM MOPS [3-(N-Morpholino)propansulfonsäure] gemischt; pH7,2} in einer 96-schwarzen Mikrotiterplatte mit Vertiefungen. Die Mischung wurde 15 min bei 25 Grad inkubiert; 25 µl Digitonin (50 µg/ml) und 25 µl Fluo-5N AM-Ester (1 µM in 0,005 Prozent (w/v) Pluronic F-127) wurden dann hinzugefügt. Durch Erleichterung der Membranpermeation vermittelte Digitonin den mitochondrialen Eintritt von fluoreszierendem Farbstoff. Wir fanden heraus, dass die Fluo-5N-Spiegel in Rattenherz-Mitochondrienpräparaten in Gegenwart von Digitonin 20--fach erhöht waren. Reaktionsmischungen wurden bei 25 Grad für 30 Minuten inkubiert und Fluoreszenzablesungen wurden bei einer Anregungswellenlänge von 488 nm und einer Emissionswellenlänge von 532 nm gemessen. Mitochondriale Ca2 plus-Gehalte wurden unter Verwendung einer Kalibrierungskurve geschätzt und als µmol/mg Protein ausgedrückt.
Messung des mitochondrialen Membranpotentials
Das Membranpotential (ΔΨm) wurde durch ein Verfahren bestimmt, das gegenüber dem von Bonavita et al. (2003) unter Verwendung eines fluoreszierenden Farbstoffs, der lipophilen kationischen Sonde 5,596, 69- Tetrachlor-1,193, 39- Tetraethylbenzimidazolylcarbocyaniniodid, allgemein als JC-1 bezeichnet. Aliquots (50 µl) von mitochondrialen Fraktionen (eingestellt auf 1 mg Protein/ml) wurden bei 37 Grad mit 50 µl Substratlösung (enthaltend 6 mM Pyruvat und 6 mM Malat), 25 µl vorbehandelter Adenosindiphosphat (ADP) (30 mM)-Lösung, und 25 µL 3 µM JC-1, im Dunkeln. Die ΔΨm-Werte wurden durch Messung der Fluoreszenz bei 535 nm (FL1) gegenüber 580 nm (FL2) unter Verwendung des Victor2 Multi-Label Counter erhalten. JC-1 bildet ein Aggregat in den Mitochondrien, was zu hohen FL2-Fluoreszenzwerten führt und ein normales mitochondriales Potential anzeigt. Der Verlust von ΔΨm führt zu einer Verringerung der FL2-Fluoreszenz (JC-1-Aggregate in geringerem Ausmaß) und einer gleichzeitigen Zunahme der FL1-Fluoreszenz (von JC-1-Monomeren). Die Daten wurden als Verhältnisse von FL1/FL2-Fluoreszenzwerten ausgedrückt. Carbonylcyanid m-Chlorphenylhydrazon (CCCP), ein ΔΨm-Kollapsierungsmittel, wurde verwendet, um den Assay zu validieren.
Messung der mitochondrialen Atmung
Die mitochondriale Atmungsrate wurde bei 37 Grad unter Verwendung eines Hansatech Oxygraph-Plus-Instruments gemessen, das mit einer Sauerstoffelektrode vom Clark-Typ (Sarasota, FL, USA) ausgestattet war. Mitochondrienfraktionen (0,6 mg Protein/ml) wurden in Atmungspuffer suspendiert, der 125 mM KCl, 2 0 mM MOPS, 10 mM Tris, 0,5 mM Ethylenglykoltetraessigsäure (EGTA) und 2 mM KH 2 PO 4 enthielt; pH-Wert 7,2. Nach 2-minütiger Inkubation bei 37 Grad erhielt jede Probe 50 &mgr;l Substratlösung (5 mM Pyruvat und 5 mM Malat). Die Atmungsraten wurden in Gegenwart (Zustand 3) von 1 mM ADP und nach Phosphorylierung des gesamten ADP zu ATP (Zustand 4) gemessen. Das Verhältnis der Atemfrequenzen von Zustand 3:Zustand 4 ist der Atemkontrollindex, der die enge Kopplung zwischen Atmung und Phosphorylierung anzeigt (Javadov et al., 2005; Kuwabara et al., 1997). Vor der Zugabe der Substratlösung wurde die Respirationsrate von Zustand 1 bis zum Beginn der Respiration von Zustand 2 gemessen, und die Respirationsrate von Zustand 2 wurde vor der Zugabe von ADP geschätzt.
statistische Analyse
Die Daten wurden durch Einweg-Varianzanalyse (ANOVA) für mehrere Gruppenvergleiche analysiert. Die Werte der geringsten signifikanten Differenz (LSD) wurden verwendet, um signifikante Unterschiede zwischen den beiden Gruppen zu identifizieren, wenn die p-Werte < 0,05="">

CistanchehatmedizinischWert
Ergebnisse
Wie in den Abbildungen 1 und 2 gezeigt, verbesserte die Behandlung mit einem Methanolextrakt von Herba Cistanche (0,5 oder 1,0 g/kg/Tag × 3) den mitochondrialen Glutathionstatus in Rattenherzen signifikant, wie belegt durch dosisabhängige Erhöhungen der GSH-Spiegel (11–30 Prozent) und Abnahmen der GSSG-Spiegel (31 Prozent).

Die Behandlung mit Herba Cistanche verringerte dosisabhängig die mitochondrialen Ca2 plus-Spiegel in Rattenherzen im Vergleich zu Kontrollen; Unterdrückung betrug 41 Prozent bei einer Dosis von 1,0 g/kg (Abbildung 3).

Die Behandlung mit Herba Cistanche erhöhte mitochondriale ΔΨm, wie durch eine Abnahme (14–16 Prozent) des FL1/FL2-Verhältnisses belegt wird. CCCP (100 uM) verursachte einen ΔΨm-Kollaps, wie durch eine Erhöhung des FL1/FL2-Verhältnisses angezeigt wird (Fig. 4).

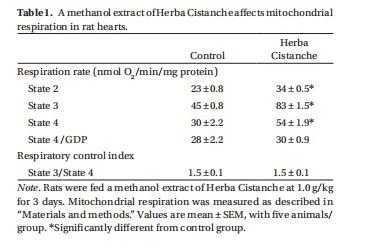
Die Behandlung mit Herba Cistanche verstärkte die mitochondriale Atmung, wie durch eine signifikant höhere Atmungsrate im Zustand 3 (84 Prozent) bei Testtieren im Vergleich zu Kontrolltieren belegt wurde (Tabelle 1). Die Atmungsniveaus von Zustand 2 und Zustand 4 wurden um 47 bzw. 80 Prozent erhöht, aber die Stimulierung der Atmung von Zustand 4 wurde durch 1 mM Guanosin-5'-diphosphat, einen Inhibitor des Entkopplungsproteins 2/3, vollständig unterdrückt. Die Behandlung mit Herba Cistanche hatte keinen Einfluss auf den Atmungskontrollindex, wie anhand des Verhältnisses der Atemfrequenzen von Zustand 3/Zustand 4 geschätzt.

CistanchehatneuroprotektivEigenschaften
Diskussion
Mitochondrien, die aus mit Herba Cistanche behandelten Rattenherzen isoliert wurden, zeigten einen verbesserten Glutathionstatus, wie durch erhöhte GSH-Spiegel und verringerte GSSG-Spiegel angezeigt wird. Die Aufrechterhaltung des mitochondrialen Glutathion-Redoxstatus ist entscheidend für die Kardioprotektion gegen I/R-Verletzungen (Chiu & Ko, 2003). Der zytosolische Ca2 plus-Gehalt steigt während einer myokardialen Ischämie über die Aufnahme von Ca2 plus-Uniporter durch die innere Membran (Ataka et al., 1992; Grover et al., 1990), was zu einer mitochondrialen Ca2 plus-Akkumulation führt. Unsere Ergebnisse zeigen, dass die Behandlung mit Herba Cistanche-Extrakten den mitochondrialen Glutathion-Redox-Status verbessert und den mitochondrialen Ca2 plus-Spiegel verringert, was einen Schutz vor myokardialer I/R-Verletzung bieten kann (Leung, 2006). Die Unfähigkeit der Behandlung mit Herba Cistanche bei einer höheren Dosis von 1,0 g/kg, die GSSG- und Ca2+-Spiegel weiter zu senken, kann mit der Existenz eines selbstlimitierenden Regulationsmechanismus zusammenhängen, der das Redoxpotential von Glutathion und den Calciumstatus in Mitochondrien beeinflusst.
Mitochondrien erzeugen durch Elektronentransport einen elektrochemischen Protonengradienten über die innere Membran. Dieser Gradient wird von der ATP-Synthase verwendet, um ADP zu ATP zu phosphorylieren. Ein vermindertes Mitochondrienmembranpotential, wie bei Hypoxie/Reoxygenierung nach Verletzung kultivierter Kardiomyozyten (Chiu et al., 2008), führt zu einer Verringerung der ATP-Erzeugung. Die Behandlung mit Herba Cistanche, die das myokardiale mitochondriale Membranpotential erhöhen kann, verstärkt möglicherweise die ATP-Erzeugung, insbesondere während der postischämischen Reperfusion. Auch hier könnte die Existenz eines selbstbegrenzenden Regulationsmechanismus erklären, warum die Wirkungen der Behandlung mit Herba Cistanche auf das mitochondriale Membranpotential nicht dosisabhängig sind.
Die Behandlung mit Herba Cistanche erhöhte die Respirationsrate von Zustand 3 in Mitochondrien des Rattenherzens stark, wie anhand des Sauerstoffverbrauchs festgestellt wurde. Dieser Befund steht im Einklang mit Ergebnissen, die aus In-vitro- und Situ-Messungen der mitochondrialen ATP-Erzeugungskapazität gewonnen wurden (Leung & Ko, 2008). Obwohl die Behandlung mit Herba Cistanche den Steady-State-Spiegel von myokardialem ATP reduzierte (Daten nicht gezeigt), verstärkte die Behandlung interessanterweise die mitochondriale ATP-Erzeugung. Die Beteiligung der ungekoppelten Atmung kann diese widersprüchlichen Beobachtungen erklären. Entkoppelte oxidative Phosphorylierung tritt auf, wenn Protonen durch die mitochondriale Innenmembran zurück in die mitochondriale Matrix bewegt werden, wodurch das durch die Elektronentransportkette gebildete Membranpotential abgebaut wird. Dies führt zu einer Verringerung der protonentreibenden Kraft, die die ATP-Bildung antreibt (Garvey, 2003). Als Folge wird die Ca2+-Konzentration und die ROS-Produktion in den Mitochondrien dramatisch abgeschwächt (Teshima et al., 2003). Dieser Vorschlag stimmt mit den Ergebnissen der vorliegenden Studie überein, die eine Abnahme der mitochondrialen Ca2+-Spiegel in mit Herba Cistanche behandelten Herzen zeigte. In Bezug auf die ungekoppelte Atmung kann die Synthese von Entkopplungsproteinen (UCPs) durch die Behandlung mit Herba Cistanche induziert werden. Es ist bekannt, dass UCPs die oxidative Phosphorylierung entkoppeln und die Expression von UCP1 in transgenen Mäuseherzen vor I/R-induzierten Myokardschäden schützt (Hoerter et al., 2004). Die Entkopplungswirkung von UCPs wurde durch Purinnukleotiddiphosphate und -triphosphate (wie ADP, ATP, Guanosindiphosphat (GDP) und GTP) gehemmt (Echtay et al., 2002). In der vorliegenden Studie wurden mitochondriale Parameter wie Membranpotential und Atemfrequenz in Gegenwart von ADP (als Substrat) gemessen; die entkoppelnde Wirkung von UCPs wurde daher gehemmt. Wenn jedoch die mitochondriale Zustands-4-Respirationsrate in Abwesenheit von ADP gemessen wurde, war diese Rate in Mitochondrien, die aus mit Herba Cistanche behandelten Herzen präpariert wurden, höher als in Herzen von unbehandelten Kontrollen. Die Atemfrequenz von Zustand 4 spiegelt den Sauerstoffverbrauch der Mitochondrien wider, wenn Protonen über einen Mechanismus, an dem die F1F0 -ATPase nicht beteiligt ist, zurück in die mitochondriale Matrix gelangen (Garvey, 2003). Die mögliche Beteiligung von UCPs an der Herba Cistanche-induzierten Zunahme der Respiration von Zustand 4 wird durch die Feststellung unterstützt, dass diese Zunahme durch das BIP unterdrückt wurde (Bento et al., 2007).
Zusammenfassend lässt sich sagen, dass die Behandlung mit Herba Cistanche den mitochondrialen Glutathionstatus verbessern, den mitochondrialen Ca2+-Spiegel verringern und das mitochondriale Membranpotential und die Atemfrequenz in Rattenherzen erhöhen kann. Die Verbesserung des mitochondrialen Glutathionstatus und der Funktionsfähigkeit sowie die mutmaßliche Induktion von UCPs können mit der Kardioprotektion zusammenhängen, die durch die Behandlung mit Herba Cistanche nach einer I/R-Verletzung erreicht wird.

CistancheKann erhöhenmitochondrialAtmung Bewertung
Interessenserklärung
Die Autoren melden keinen Interessenkonflikt. Die Autoren sind für den Inhalt und das Schreiben der Arbeit verantwortlich.
Verweise
Ataka K., Chen D., Levitsky S., Jimenez E., Feinberg H. (1992): Wirkung des Alterns auf intrazelluläres Ca2+, pHi und Kontraktilität während Ischämie und Reperfusion. Umlauf 86 II371–II376.
Bento LM, Fagian MM, Vercesi AE, Gontijo JA (2007): Auswirkungen einer NH4 Cl-induzierten systemischen metabolischen Azidose auf die mitochondriale Kopplung der Niere und den Calciumtransport bei Ratten.
Nephrol Dial Transplant 22: 2817–2823. Bonavita F, Stefanelli C, Giordano E, Columbaro M, Facchini A, Bonafe F, Caldarera CM, Guarnieri C (2003): H9c2-Herzmyoblasten durchlaufen Apoptose in einem Ischämiemodell, das aus Serumentzug und Hypoxie besteht: Hemmung durch PMA. FEBS Lett 536: 85–91.
Chen P (1998): Tonische Kräuter. Erweiterte TCM-Serie. Peking, Science Press, S. 233–320.
Chiu PY, Ko KM (2003): Die zeitabhängige Verbesserung des mitochondrialen Glutathionstatus und der ATP-Erzeugungskapazität durch die Behandlung mit Schismdrin B verringert die Anfälligkeit von Rattenherzen für Ischämie-Reperfusionsschäden.
Biofaktoren 19: 43–51. Chiu PY, Luk KF, Leung HY, Ng KM, Ko KM (2008): Schisandrin B-Stereoisomere schützen vor Hypoxie/Reoxygenierung-induzierter Apoptose und hemmen damit verbundene Veränderungen des Ca2 plus -induzierten mitochondrialen Permeabilitätsübergangs und des mitochondrialen Membranpotentials in H9c2-Kardiomyozyten. Life Science 82: 1092–1101.
Echtay KS, Roussel D, St Pierre J, Jekabsons MB, Cadenas S, Stuart JA, Harper JA, Roebuck SJ, Morrison A, Pickering S, Clapham JC, Brand MD (2002): Superoxide activates mitochondrial uncoupling proteines. Natur 415: 96–99.
Evans WH (1992): Isolierung und Charakterisierung von Membranen und Zellorganellen. In: Rickwood D, Hrsg., Präparative Zentrifugation. Ein praktischer Ansatz. New York, Oxford University Press, S. 233–270.
Garvey WT (2003): Die Rolle des Entkopplungsproteins 3 in der menschlichen Physiologie. J Clin Invest 111: 438–441. Griffith OW (1980): Bestimmung von Glutathion und Glutathiondisulfid mit Glutathionreduktase und 2-Vinylpyridin.
Anal Biochem 106: 207–212. Grover GJ, Dzwonczyk S, Sleph PG (1990): Rutheniumrot verbessert die postischämische kontraktile Funktion in isolierten Rattenherzen. J Cardiovasc Pharmacol 16: 783–789.
Hoerter J, Gonzalez-Barroso MD, Couplan E, Mateo P, Gelly C, Cassard-Doulcier AM, Diolez P, Bouillaud F (2004): Mitochondrial uncoupling protein 1, das im Herzen transgener Mäuse exprimiert wird, schützt vor Schäden durch ischämische Reperfusion. Auflage 110: 528–533.
Javadov S, Huang C, Kirshenbaum L, Karmazyn M (2005): NHE-1-Hemmung verbessert den gestörten mitochondrialen Permeabilitätsübergang und die Atmungsfunktion während des Postinfarkt-Umbaus bei der Ratte. J Mol Cell Cardiol 38: 135–143.
Kuwabara M, Takenaka H, Maruyama H, Onitsuka T, Hamada M (1997): Wirkung einer verlängerten hypothermischen Ischämie und Reperfusion auf den Sauerstoffverbrauch und die gesamte mechanische Energie im Rattenmyokard: Beteiligung der mitochondrialen oxidativen Phosphorylierung. Transplantation 64: 577–583.
Lemasters JJ, Nieminen AL, Qian T, Trost LC, Elmore SP, Nishimura Y, Crowe RA, Cascio WE, Bradham CA, Brenner DA, Herman B (1998): Der mitochondriale Permeabilitätsübergang beim Zelltod: ein gemeinsamer Mechanismus bei Nekrose, Apoptose und Autophagie. Biochim Biophys Acta 1366: 177–196.
Leung HY (2006): Wirkung von Herba Cistanche auf die mitochondriale ATP-Erzeugung: eine pharmakologische Grundlage der "Yang-Stärkung". MPhil Thesis, Hong Kong University of Science and Technology, S. 67–69.
Leung HY, Ko KM (2008): Herba Cistanche-Extrakt verbessert die mitochondriale ATP-Erzeugung in Rattenherzen und H9C2-Zellen. Pharma Biol 46: 418–424.
Menze MA, Hutchinson K, Laborde SM, Hand SC (2005): Übergang der mitochondrialen Permeabilität im Krustentier Artemia franciscana: Fehlen einer kalziumregulierten Pore angesichts starker Kalziumspeicherung. Am J Physiol Regul Integr Comp Physiol 289: R68–R76.
Redegeld FA, Moison RM, Koster AS, Noordhoek J (1992): Die Depletion von ATP, aber nicht von GSH beeinflusst die Lebensfähigkeit von Rattenhepatozyten. Eur J Pharmacol 228: 229–236.
Teshima Y, Akao M, Jones SP, Marban E (2003): Uncoupling protein-2 overexpression hemmt den mitochondrialen Todesweg in Kardiomyozyten. Circ Res 93: 192–200.
Yim TK, Ko KM (2002): Antioxidative und immunmodulatorische Aktivitäten chinesischer Tonisierungskräuter. PharmBiol 40: 329–335.


