Identifizierung von auf Wasserstoffperoxid ansprechenden ESTs, die an der Phenylethanoidglycosid-Biosynthese in Cistanche-Salsa-Zellkulturen beteiligt sind
Mar 17, 2022
Kontakt: Audrey Hu WhatsApp/hp: 0086 13880143964 E-Mail:audrey.hu@wecistanche.com
J. CHENet al
Abstrakt
Wasserstoffperoxid ist ein wirksamer abiotischer Auslöser, der die Biosynthese von Sekundärmetaboliten in Pflanzen induzieren kann. Das zeigen wir in der Zellsuspensionskultur einer salztoleranten HeilpflanzeCistancheSalsa, die Produktion von bioaktiven KomponentenPhenylethanoidGlykoside(PeGs) war nach H2O2-Behandlung erhöht. Um mit PeGs verwandte Gene zu identifizieren(PhenylethanoidGlykoside)Biosynthese durch H2O2 beeinflusst, konstruierten wir eine subtraktive Suppressions-Hybridisierungsbibliothek von H2O2-responsiven Genen unter Verwendung von aCistancheSalsaZelllinie und identifizierte 105 exprimierte Sequenz-Tags (ESTs) und 85 Gene. Die funktionelle Annotation der EST-Bibliothek und Genontologieanalysen zeigten Gene, die mit verschiedenen Stressreaktionen, der Biosynthese von Sekundärmetaboliten und der Transkriptionsregulation in Zusammenhang stehen. Darunter identifizierten wir zwei mit den PeGs verwandte Gene(PhenylethanoidGlykoside)Biosyntheseweg (4-Cumarat-Coenzym-A-Ligase und Cinnamat-4--Hydroxylase) und zwei Transkriptionsfaktoren vom WRKY-Typ. Die Expression ausgewählter Gene nach der H2O2-Behandlung wurde mittels RT-qPCR analysiert. Früh erhöhte Transkription von PeG(PhenylethanoidGlykoside)Biosyntheseweg-Gene nach der Behandlung zeigten, dass H2O2 PeGs induzierte(PhenylethanoidGlykoside)Biosynthese durch Hochregulierung seiner Schlüsselgene.
Zusätzliche Schlüsselwörter: Cinnamat-4--Hydroxylase, 4-Cumarat-Coenzym-A-Ligase, subtraktive Unterdrückungshybridisierung.CistancheSalsa. PhenylethanoidGlykoside.

Einführung
CistancheSalsaist ein mehrjähriger Pflanzenparasit an der Wurzel von Haloxylos ammodendrun und wächst in den Wüstengebieten Westchinas. Seit Jahrhunderten,CistancheArt wurde als traditionelle Kräutermedizin verwendet (Wang et al. 2012). Bioaktive Komponenten sindPhenylethanoidGlykoside(PeGs), die eine bemerkenswerte Wirkung auf die Clearance reaktiver Sauerstoffspezies (ROS), den Strahlenschutz, die Verbesserung der Immunität und das Anti-Aging haben (Nan et al. 2013). PeGs(PhenylethanoidGlykoside)Biosynthese einCistanchewird von Phenylalanin initiiert (Fig. 1 Suppl.) und synthetisierte Kaffeesäure wird weiter glykosyliert, um verschiedene PeGs zu bilden(PhenylethanoidGlykoside)(Wang et al. 2012). Drei Haupt-PEGs(PhenylethanoidGlykoside), Echinacosid, Acteosid und 2'-Acetylacteosid gelten als die aktivsten Komponenten inCistanche(Kobayashi et al. 1984). Um ihren Inhalt zu verbessern inCistancheZellkultur wurden verschiedene Auslöser getestet, darunter Chitosan, Putrescin, Ag plus und osmotischer Stress (Ouyang et al. 2005a,b, Cheng et al. 2005, 2006, Liu et al. 2007, Liu und Cheng 2008). Allerdings sind Gene an PeGs beteiligt(PhenylethanoidGlykoside)Biosynthese einCistanche, hauptsächlich Gene des Phenylalaninstoffwechselwegs, wurden selten identifiziert. Lediglich ein Gen, das für Phenylalanin-Ammoniak-Lyase (PAL) kodiert, wurde kürzlich in Cistanche deserticola identifiziert (Hu et al. 2011). Andere Gene codieren zum Beispiel Cinnamat-4-hydroxylase (C4H), die die Umwandlung von Cinnamat in Cumarsäure katalysieren könnte, und 4-Cumarat-Coenzym-A-Ligase (4CL), ein essentielles Gen für Lignin und Flavanoide Biosynthesen, wurden nicht gefundenCistanche.
Wir verwendeten die Zellkultur vonCistancheSalsaPeGs zu studieren(PhenylethanoidGlykoside)Biosynthese und verwandte Genexpression. Wir untersuchten auch die Wirkung eines wirksamen Auslösers H2O2 auf PeGs(PhenylethanoidGlykoside)Biosynthese. Darüber hinaus, frühe responsive Gene zu finden, die an PeGs beteiligt sind(PhenylethanoidGlykoside)Biosynthese führten wir eine subtraktive Suppressionshybridisierung (SSH) durch, um eine cDNA-Bibliothek H2O2--responsiver Gene zu konstruieren.

Abb. 1. Relative Genexpression bestimmt durch RT-qPCR nach H2O2-Behandlung. CsWRKY1 - WRKY Transkriptionsfaktor (Contig07), CsC4H1 - Cinnamat 4-hydroxylase (Contig09), Cs4CL1 - 4-Cumarat: Ligase (Contig03), CsHSP1 --Hitzeschockprotein 70 kDa (Contig 01) und CsSOD1 --Superoxiddismutase (Contig16). Die Zellen wurden mit 80 ug dm-3 H2O2 in einem flüssigen Medium für 2 h behandelt und die Expression wurde mit einer mit Wasser behandelten Kontrolle verglichen. Mittel plus - SD von drei biologischen Wiederholungen; * – P < 0,05,="" **="" –="" p=""><>
Materialen und Methoden
Die CS2001-Zelllinie wurde aus Blütenblättern von etabliertCistancheSalsa(CA Mey.) Beck in der Provinz Neimenggu gesammelt und subkultiviert. Die Kulturmethode ähnelte einem zuvor veröffentlichten Protokoll (Liu et al. 2007). Im Allgemeinen wurde ein festes Medium von Murashige und Skoog (1962; MS) für die Subkultur und ein flüssiges Medium für PeGs verwendet(PhenylethanoidGlykoside)Biosynthese (es war das modifizierte MS-Medium, ergänzt mit 30 g dm-3 Glucose und 2,0 mg dm-3 Indol-3-essigsäure). Für die H2O2-Behandlung wurden 5,0 ± 0,2 g Zellen in einer schnellen Wachstumsphase, normalerweise 20 bis 30 Tage, nachdem sie im festen Medium subkultiviert wurden, in ein 50 cm3 flüssiges Medium in einem 250 cm3 Erlenmeyerkolben inokuliert und im Dunkeln mit oder ohne unterschiedliche H2O2-Konzentrationen kultiviert. Die PeGs(PhenylethanoidGlykoside)Gehalt nach 10 d Induktion durch H2O2 wurde nach einer zuvor veröffentlichten Methode (Liu et al. 2007) basierend auf Umkehrphasen-Hochleistungsflüssigkeitschromatographie mit Methanol-Gradientenelution analysiert.
Die Zellen wurden 2 h nach der H 2 O 2 -Behandlung durch Filterpapier unter Verwendung eines Büchner-Trichters vom Medium gesammelt und dann in flüssigem Stickstoff eingefroren und zu Pulver gemahlen. Jeweils 2 g Zellpulver wurden unter Verwendung einer Mischung aus 1 cm3 2-Mercaptoethanol, 1 cm3 200 g dm{{10}} Sarcosyl, und 8 cm 3 eines GTC-Puffers (5 M Guanidiniumisothiocyanat, 62,5 mM Tris-HCl, pH 8,0, 6,25 mM EDTA, pH 8,0, 5 mM Thioharnstoff und 10 mM Dithiothreitol). Die Zellen wurden dann 15 min auf Eis inkubiert, dann wurde 1/3 Volumen 8,5 M CH 3 COOK, pH 6,0, zugegeben, und die Zellen wurden 15 min auf Eis inkubiert und dann 15 min bei 15 000 g zentrifugiert . Der Überstand wurde zu einem gleichen Volumen Isopropanol gegeben, um Gesamt-RNA auszufällen. Die Gesamt-RNA wurde mit einem RNeasy-Minikit (Qiagen, Hilden, USA) gemäß den Anweisungen des Herstellers weiter gereinigt. Messenger-RNA wurde aus Gesamt-RNA unter Verwendung eines Oligotex-mRNA-Midi-Kits (Qiagen) isoliert.

PhenylethanoidGlykosideinCistancheSalsa
Eine SSH-Bibliothek wurde aus Kontroll- und 30 % H2O2--ausgelösten Zellproben 2 h nach der Auslösung unter Verwendung eines PCR-selektiven cDNA-Subtraktionskits (Clontech, Mountain View, USA) erzeugt. Für die Bibliothekskonstruktion wurden die Produkte separat unter Verwendung eines Gelreinigungskits (Qiagen) gereinigt und unter Verwendung eines TA-Klonierungskits (Tiangen, Peking, China) in einen pGEM-Vektor kloniert. Plasmide von unabhängigen Klonen wurden isoliert und unter Verwendung von T7-Primer sequenziert. Alle exprimierten Sequenz-Tag-(EST)-Sequenzen aus der Bibliothek (mit entfernten Vektorsequenzen) wurden für die Contig-Assemblierung mit CAP3 (http://doua.prabi.fr/software/cap3) verwendet. Die ESTs wurden in Contigs und Singletons gruppiert; sie wurden für die Homologiesuche unter Verwendung des BLASTx-Programms bei NCBI (http://blast.ncbi. nlm.nih.gov) verwendet. Die Sequenzen wurden dann mit Blast2GO (http://www.blast2go.com) nach genontologischen (GO) Begriffen annotiert, analysiert und klassifiziert.
Quantitative Polymerase-Kettenreaktion in Echtzeit (RT-qPCR) wurde gemäß Bustin et al. (2009). Die cDNA-Proben wurden unter Verwendung eines PrimeScript RT-Reagenzienkits (Takara, Dalian, China) aus 0,5 &mgr;g Gesamt-RNA synthetisiert. RT-qPCR wurde unter Verwendung von SYBR Premix Ex Taq II und ROX plus Kits (Takara) auf einem ABI 7300 real-time PCR System (Applied Biosystems, Foster City, USA) mit drei technischen Wiederholungen durchgeführt. Primer wurden unter Verwendung der Online-Software Primer3 gemäß den Anweisungen von Takara entworfen; Primer, die in dieser Studie verwendet wurden, sind in Tabelle 1 Suppl aufgeführt. Die Genexpressionen wurden auf 18S-RNA normalisiert, deren Expression in allen Proben stabil war.
Die Ergebnisse wurden mit R Version 3.1.1 analysiert, die Signifikanz der Unterschiede wurde durch den Student's t-Test verifiziert.

Ergebnisse
Wasserstoffperoxid induzierte die Biosynthese aller drei Haupt-PeGs(PhenylethanoidGlykoside)inCistancheSalsaSuspensionszellen (Tabelle 1), jedoch ohne offensichtlichen Effekt auf das Zellwachstum (Abb. S2). Der Gehalt an Echinacosid stieg bereits nach der Behandlung mit 10 ug dm-3 H2O2 an (P < 0.05),="" ein="" stärkerer="" anstieg="" wurde="" nach="" 20="" ug="" dm="" verzeichnet="" -3="" h2o2-behandlung="" (p="">< 0,01),="" und="" der="" höchste="" anstieg="" war="" nach="" den="" behandlungen="" mit="" 40,="" 80="" und="" 160 ug="" dm="" -3="" h2o2.="" ähnliche="" ergebnisse="" werden="" für="" acteosid="" gezeigt,="" aber="" sein="" gehalt="" erreichte="" seinen="" höhepunkt="" nach="" der="" behandlung="" mit="" 80 ug="" dm-3="" h2o2.="" die="" biosynthese="" von="" 2'-acetylacteosid="" war="" weniger="" empfindlich="" gegenüber="" h2o2-behandlung;="" eine="" signifikante="" zunahme="" seines="" gehalts="" (p="">< 0,05)="" erfolgte="" bei="" h2o2-konzentrationen="" über="" 40="" µg="" dm-3.="" nach="" der="" behandlung="" mit="" 80 ug="" dm-3="" h2o2="" die="" menge="" aller="" drei="">(PhenylethanoidGlykoside)signifikant erhöht (P < 0,01)="" gegenüber="" der="" kontrolle.="" daher="" wurde="" diese="" konzentration="" in="" weiteren="" experimenten="">
Um eine Bibliothek zu erstellen, die für früh ansprechende Gene angereichert ist, die durch H2O2 hochreguliert werden, verwendeten wir cDNA vonCistancheSalsaSuspensionszellen behandelt mit 80 ug dm-3 H2O2 für 2 h. Single-Pass-Sequenzierung von 129 rekombinanten Klonen in der SSH-Bibliothek ergab 105 saubere ESTs nach Ausschluss der Vektorsequenz. Diese klaren ESTs wurden für den Zusammenbau durch CAP3 verwendet, und 18 Contigs und 67 Singletons wurden erzeugt (Tabelle 2). Somit wurden in dieser Bibliothek 85 Gene isoliert. Die mittlere Länge der sauberen 105 ESTs betrug 527 bp, was für eine auf Sequenzähnlichkeit basierende funktionelle Klassifizierung angemessen ist.


PhenylethanoidGlykosideinCistancheSalsa
Alle 85 in der Bibliothek erhaltenen Gene wurden von BLASTx gegen die nicht-redundante Proteindatenbank der GenBank auf Sequenzähnlichkeit (E-Wert kleiner als oder gleich 0.001) abgeglichen. Einundzwanzig Gene zeigten keine Treffer in der Datenbank, für die sie möglicherweise spezifisch sindCistancheSalsa. Die Ergebnisse mit BLASThits wurden für weitere Analysen der GO- und KEGG-Weganreicherung in die Blast2GO-Software importiert. Von den 64 Genen mit BLAST-Treffern wurden 50 entsprechend der Beschreibung homologer Gene anderer Spezies annotiert. Die annotierten Gene wurden nach der Beschreibung der BLAST-Treffer benannt. Die GO-Analyse (Abb. 3 Suppl.) zeigt, dass unter diesen 50 Genen 14 Gene an Reaktionen auf Reize beteiligt waren und über 30 Gene im Zusammenhang mit Stoffwechselprozessen (Tabellen 1 und 2). Unter diesen Genen wurden erwartungsgemäß zwei Genhomologe des PeG-Biosynthesewegs isoliert: 4-Cumarat-Coenzym-A-Ligase (mit der Bezeichnung Cs4CL1: Contig03) und Cinnamat-4--Hydroxylase (mit der Bezeichnung CsC4H1: Contig14). Darüber hinaus wurde RT-qPCR durchgeführt, um die induzierte Expression von Genen aus der Bibliothek nach der H2O2-Behandlung zu bestätigen.
Um zu bestätigen, dass essentielle Gene, die aus der SSH-Bibliothek identifiziert wurden, auf die H2O2-Behandlung reagierten, wurde die Expression von zwei PeGs durchgeführt(PhenylethanoidGlykoside)Biosyntheseweg-bezogene Gene (Cs4CL1, CsC4H1), zwei ROS-induzierte Gene (CsSOD1: Contig 16, CsHSP1: CISTH099) und ein Transkriptionsfaktor-ähnliches Gen der WRKY-Familie (CsWRKY1: Contig 07) wurden nach der Behandlung durch RT-qPCR gemessen mit H2O2 (Abb. 1). CsC4H1-, Cs4CL1-, CsSOD1- und CsWRKY1-Expressionen wurden mehr als 15--fach, 3--fach, 45--fach und 4--fach hochreguliert, jeweils 2 h nach H2O2 Behandlung. Die Expression von CsHSP1 war nach der H2O2-Behandlung nur 1,8-fach verändert.
Der zeitliche Verlauf der Expression von CsWRKY1, CsC4H1 und Cs4CL1 nach der H2O2-Behandlung wurde weiter durch RT-qPCR analysiert (Abb. 2). Die CsC4H1- und Cs4CL1-Expression war nach der 16--stündigen Behandlung stark erhöht (mehr als 80--fach bzw. 50--fach) und dann nach 32 h herunterreguliert. Die Expression von CsWRKY1 wurde nach 4 Stunden mehr als 20--fach hochreguliert und nahm dann ab 8 Stunden danach ab (Abb. 2).

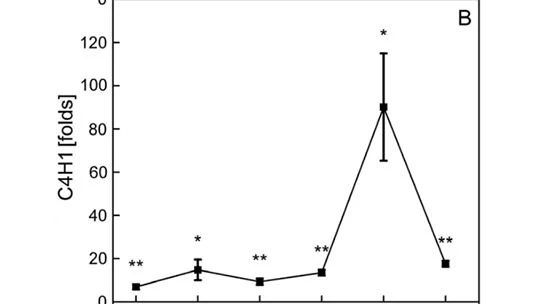

Abb. 2. Die relative Expression von CsWRKY1 (A), CsC4H1 (B) und Cs4CL1 (C) zu unterschiedlichen Zeitpunkten nach Behandlung mit 80 ug dm-3 H2O2. Die Ausdrücke wurden auf eine Kontrolle normalisiert; (mit Wasser behandelt). Mittel plus - SD von drei biologischen Wiederholungen; * – P < 0,05,="" **="" –="" p=""><>
Diskussion
Wasserstoffperoxid ist ein bekannter Pflanzenauslöser, der verschiedene Wirkungen auf Pflanzen zeigt. Wie ROS kann es das ROS-Abfangsystem induzieren, das aus Superoxiddismutase, Katalase, Peroxidasen usw. besteht, und es dient als nachgeschaltetes Signal für Salz, Osmose und Dehydratation
(Wi et al. 2006, Kar 2011, Furlan et al. 2013, Sathiyaraj et al. 2014). Es wurde vermutet, dass die H2O2-Erzeugung in Pflanzen von einer induzierten Biosynthese von Sekundärmetaboliten in der Pflanze begleitet wirdCistancheSalsaZellkultur. Wie erwartet zeigen unsere Ergebnisse, dass PeGs(PhenylethanoidGlykoside)Biosynthese in derCistanche-SalsaZellkultur wurde nach der H2O2-Behandlung induziert (Tabelle 1). Der Inhalt der drei wichtigsten PeGs(PhenylethanoidGlykoside)nach der H2O2-Behandlung erhöht, was auf seine Schlüsselrolle in der PeGs-Biosynthese hinweist. Gene, die in der SSH-Bibliothek angereichert sind, legten ferner ihre Wirkung auf PeGs nahe(PhenylethanoidGlykoside)Biosyntheseinduktion inCistanche-Salsa.
Viele bekannte H2O2--responsive Gene, wie Ascorbatperoxidase (CISTH069, Karyotou und Donaldson 2005), h-Chinon-Oxidoreduktase (CISTH125, Bello, et al. 2001), CsSOD1, CsHSP1 (Baruah et al. 2014), und Krankheitsresistenz-Reaktionsgene (Contig10, Nanda, et al. 2010), wurden in der SSH-Bibliothek angereichert (Tabelle 3, Tabelle 2 Suppl.). Einige dieser typischen ROS-responsiven Gene mit einer induzierten Expression nach der H2O2-Behandlung wurden durch RT-qPCR (Abb. 1 und 2) weiter bestätigt, was darauf hindeutet, dass hier eine qualifizierte SSH-Bibliothek erstellt wurde. Zwei Gene des PeG-Biosynthesewegs, CsC4H1 und Cs4CL1, wurden ebenfalls in dieser Bibliothek gefunden, und diese beiden Genexpressionen wurden durch die H2O2-Behandlung zeitabhängig induziert (Abb. 2). Es deutet darauf hin, dass die H2O2-Behandlung PeGs induzierte(PhenylethanoidGlykoside)Biosynthese auf genetischer Ebene über die Regulation von Genen des PAL-Signalwegs. Allerdings wurden PAL und andere nachgeschaltete PeGs-Biosynthesegene (Wang et al. 2012) nicht in der SSH-Bibliothek identifiziert; es könnte daran liegen, dass die Bibliothek nicht ausreichend sequenziert wurde. Ein Zusammenhang zwischen CsC4H1- und Cs4CL1-induzierter Expression und einer erhöhten PeGs-Biosynthese nach der H2O2-Behandlung sollte durch weitere Analysen geklärt werden.

Zusätzlich zu den durch die H2O2-Behandlung induzierten Genen des PAL-Signalwegs wurden zwei Transkriptionsfaktoren der WRKY-Familie (CsWRKY1, CsWRKY2) in der SSH-Bibliothek gefunden (Tabelle 3 und Tabelle 2, Anhang), und eine CsWRKY1-induzierte Expression wurde durch RT-qPCR bestätigt . Seine Expression reagierte früher auf die H2O2-Behandlung als die Expression von zwei Genen des PAL-Signalwegs, Cs4CL1 und CsC4H1 (Abb. 2). In früheren Studien wurde die Koexpression einiger WRKY-Transkriptionsfaktoren und Gene des PAL-Signalwegs in Reis beobachtet (Gupta et al. 2012). Darüber hinaus ist die PAL-Genexpression in einer OsWRKY03-Überexpressionsmutante hochreguliert (Liu et al. 2005). Die oben erwähnten zwei Transkriptionsfaktoren der WRKY-Familie könnten auch an PeGs beteiligt sein(PhenylethanoidGlykoside)Biosynthese einCistancheSalsa. Interessanterweise wurden in der SSH-Bibliothek dehydrationsbezogene ESTs (CISTH067, CISTH064) gefunden, was darauf hindeuten könnte, dass die H2O2-Behandlung mit der Expression von auf Dehydratation ansprechenden Genen in Zusammenhang standCistancheSalsawie in anderen Pflanzen beobachtet (Schmidt et al. 2013, Zhou et al. 2013). In der SSH-Bibliothek wurde ein Gen für die Gibberellin (GA)-Signalübertragung identifiziert, das Gibberellin-Rezeptor-gid1b-like (CISTH092), was auf eine Verbindung zwischen der GA-Signalübertragung und der Behandlung mit H2O2 hindeutetCistancheSalsa, die auch bei Gerste berichtet wurde (Bahin et al. 2011). Es sind jedoch weitere Studien erforderlich, um zu bestätigen, ob diese Gene mit PeGs verwandt sind(PhenylethanoidGlykoside)Biosynthese. Neben den oben genannten Genen präsentiert die hier konstruierte SSH-Bibliothek auch Gene mit oder ohne BLAST-Treffer. Es verbessert unser Verständnis der H2O2-Wirkung auf C. salsa und liefert erstens die Information seiner Gene, die an der PeGs-Biosynthese beteiligt sind.

Abschließend bewerteten wir die Wirkung von H2O2 auf PeGs(PhenylethanoidGlykoside)Induktion in derCistancheSalsaZellkultur. Die SSH-Bibliothek wurde nach der H2O2-Behandlung konstruiert, und die Expression ausgewählter Gene wurde durch RT-qPCR bestätigt. Zwei mit dem PeG-Biosyntheseweg verwandte Gene und andere H2O2--responsive Gene wurden identifiziert. Diese Ergebnisse werden unser Verständnis von H2O2--induzierten PeGs erweitern(PhenylethanoidGlykoside)Biosynthese einCistancheSalsaauf molekularer Ebene und liefert die Informationen für die Genmanipulation vonCistancheSalsaZellkulturen zur Verbesserung von PeGs(PhenylethanoidGlykoside)Produktion.
Aus: „Identifizierung von auf Wasserstoffperoxid ansprechenden ESTs, die an der Phenylethanoidglykosid-Biosynthese in Cistanche-Salsa-Zellkulturen beteiligt sind“ vonJ. CHENet al.
--- BIOLOGIA PLANTARUM 59 (4): 695-700, 2015 J. CHEN et al. DOI: 10.1007/s10535-015-0541-y
Verweise
Bahin, E., Bailly, C., Sotta, B., Kranner, I., Corbineau, F., Leymarie, J.: Übersprechen zwischen reaktiven Sauerstoffspezies und hormonellen Signalwegen reguliert die Kornruhe in Gerste. - Pflanzenzellumgebung. 34: 980-993, 2011.
Baruah, K., Norouzitallab, P., Linayati, L., Sorgeloos, P., Bossie, r P.: Reaktive Sauerstoffspezies, die von einem Hitzeschockprotein (Hsp)-induzierenden Produkt erzeugt werden, tragen zur Hsp70-Produktion und Hsp bei{{1} }vermittelte schützende Immunität bei Artemia franciscana gegen pathogene Vibrionen. - Entwickler Komp. Immunol. 46: 470-479, 2014.
Bello, RI, Gomez-Diaz, C., Navarro, F., Alcain, FJ, Villalba, JM: Expression von NAD(P)H: Chinonoxidoreduktase 1 in HeLa-Zellen – Rolle von Wasserstoffperoxid und Wachstumsphase. - J. biol. Chem. 276: 44379-44384, 2001.
Bustin, SA, Vandesompele, J., Pfaffl, MW: Standardisierung von qPCR und RT-qPCR. - Genet. Eng. Biotechnologie. Nachrichten 29: 40-43, 2009.
Cheng, XY, Wei, T., Guo, B., N, I W., Liu, CZ:CistancheDeserticola-Zellsuspensionskulturen:PhenylethanoidGlykosideBiosynthese und antioxidative Aktivität. - Prozess Biochem. 40: 3119-3124, 2005.
Cheng, XY, Zhou, HY, Cui, X., Ni, W., Liu, CZ Verbesserung vonPhenylethanoidGlykosideBiosynthese einCistancheDeserticola-Zellsuspensionskulturen durch Chitosan-Auslöser. - J. Biotechnol. 121: 253-260, 2006.
Furlan, A., Llanes, A., Luna, V., Castro, S.: Abscisinsäure vermittelt die durch Wasserstress induzierte Wasserstoffperoxidproduktion in Erdnüssen. - Biol. Anlage. 57: 555-558, 2013.
Gupta, SK, Ra,i AK, Kanwar, SS, Chand, D., Singh, NK, Sharma, TR: Das einzelne funktionelle Explosionsresistenzgen Pi54 aktiviert einen komplexen Abwehrmechanismus in Reis. - J. exp. bot. 63: 757-772, 2012.
Hu, GS, Jia, JM, Hur, YJ, Chung, YS, Lee, JH, Yun, DJ, Chung, WS, Yi, GH, Kim, TH, Kim, DH: Molecular characterization of phenylalanine ammonia-lyase gene fromCistancheDeserticola. -Mol. biol. Rep. 38: 3741-3750, 2011.
Kar, RK: Pflanzenreaktionen auf Wasserstress: Rolle reaktiver Sauerstoffspezies. - Pflanzensignalverhalten 6: 1741-1745, 2011.
Karyotou, K., Donaldson, RP: Ascorbatperoxidase, ein Abfänger von Wasserstoffperoxid in glyoxysomalen Membranen. - Bogen. Biochem. Biophys. 434: 248-257, 2005.
Kobayashi, H., Karasawa, H., Miyase, T., Fukushima, S.: Studien zu den Inhaltsstoffen vonZistancheist herba. 4. Isolierung und Strukturen von 2 neuen Phenylpropanoidglykosiden, Cistanosid-C und Cistanosid-D. -Chem. Pharm. Stier. 32: 3880-3885, 1984.
Liu, CZ, Cheng, XY: Verbesserung vonPhenylethanoidGlykosideBiosynthese in Zellkulturen vonCistancheDeserticola durch osmotischen Stress. - Plant Cell Rep. 27: 357-362, 2008.
Liu, JY, Guo, ZG, Zeng, ZL: Verbesserte Akkumulation vonPhenylethanoidGlykosidedurch Vorläuferfütterung in Suspensionskultur vonCistancheSalsa. - Biochem. Eng. J. 33: 88-93, 2007.
Liu, XQ, Bai, XQ, Qian, Q., Wang, XJ, Chen, MS, Chu, CC: OsWRKY03, ein Reis-Transkriptionsaktivator, der im Verteidigungssignalweg vor OsNPR1 fungiert. - Zellres. 15: 593-603, 2005.
Murashige, T., Skoog, F.: Ein überarbeitetes Medium für schnelles Wachstum und Bioassays mit Tabakgewebekulturen. - Physiol. Anlage. 15: 473-497, 1962.
Nan, ZD, Zeng, KW, Shi, SP, Zhao, MB, Jiang, Y., Tu, PF:PhenylethanoidGlykosidemit entzündungshemmenden Aktivitäten aus den Stielen vonCistancheDeserticola in der Tarim-Wüste kultiviert. - Fitoterapia 89: 167-174, 2013.
Nanda, AK, Andrio, E., Marino, D., Pauly, N., Dunand, C.: Reaktive Sauerstoffspezies während der frühen Wechselwirkungen zwischen Pflanzen und Mikroorganismen. - J.Integr. Pflanzenbiol. 52: 195-204, 2010.
Ouyang, J., Wang, XD, Zhao, B., Wang, YC: Enhanced production ofPhenylethanoid Glykosidedurch Vorläuferfütterung an die Zellkultur vonCistancheDeserticola. - Prozess Biochem. 40: 3480-3484, 2005a.
Ouyang, J., Wang, XD, Zhao, B., Wang, YC: Improved production ofPhenylethanoidGlykosidedurchCistancheDeserticola-Zellen, kultiviert in einem Airlift-Bioreaktor mit interner Schleife und Sieb-Riser. - Enzym Mikrobiol. Technik. 36: 982-988, 2005b.
Salcedo-Morales, G., Jimenez-Aparicio, AR, Cruz-Sosa, F., Trejo-Tapia, G.: Anatomische und histochemische Charakterisierung von In-vitro-Haustorium aus Wurzeln von Castilleja tenuiflora. - Biol. Anlage. 58: 164-168, 2014.
Sathiyaraj, G., Srinivasan, S., Kim, YJ, Lee, OR, Parvin, S., Balusamy, SR, Khorolragchaa, A., Yang, DC: Die Akklimatisierung von Wasserstoffperoxid erhöht die Salztoleranz durch Aktivierung abwehrrelevanter Proteine Panax Ginseng CA Meyer. -Mol. biol. Rep. 41: 3761-3771, 2014.
Schmidt, R., Mieulet, D., Hubberten, HM, Obata, T., Hoefgen, R., Fernie, AR, Fisahn, J., Segundo, BS, Guiderdoni, E., Schippers, JHM, Mueller-Roeber, B.: SALTRESPONSIVE ERF1 reguliert die reaktive Sauerstoffspezies-abhängige Signalübertragung während der anfänglichen Reaktion auf Salzstress
im Reis. - Pflanzenzelle 25: 2115-2131, 2013.
Wang, T., Zhang, XY, Xie, WY:Cistanchedeserticola YC Ma, "Desert Ginseng": eine Rezension. - Amer. J. Kinn. Med. 40: 1123-1141, 2012.
Wi, SG, Chung, BY, Kim, JH, Lee, KS, Kim, JS Ablagerungsmuster von Wasserstoffperoxid in den Blattscheiden von Reis unter Salzstress. - Biol. Anlage. 50: 469-472, 2006.
Zhou, XF, Jin, YH, Yoo, CY, Lin, XL, Kim, WY, Yun, DJ, Bressan, RA, Hasegawa, PM, Jin, JB: CYCLIN H1 reguliert Trockenstressreaktionen und die durch blaues Licht induzierte Öffnung der Stomata Hemmung der Akkumulation reaktiver Sauerstoffspezies in Arabidopsis. - Pflanzenphysiol. 162: 1030-1041, 2013.