
Neuroprotektives Potenzial von Isothiocyanaten in einem In-vitro-Modell der Neuroinfammation
Mar 27, 2022
Kontakt:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Tiziana Latronico1 · Marilena Larocca2 · Serafna Milella1 · Anna Fasano1 · Rocco Rossano2 · Grazia Maria Liuzzi1
Eingegangen: 10. Juli 2020 / Angenommen: 25. Oktober 2020 / Online veröffentlicht: 16. November 2020
© Der/die Autor(en) 2020

Cistanche-Kräuterpulver-Funktion: hat eine sehr guteneuroprotektive Wirkung
Abstrakt
Isothiocyanate (ITCs), die als Glucosinolatvorläufer in Kreuzblütlern vorhanden sind, haben gezeigtAntiphlogistikum, antioxidative und antikarzinogene Aktivitäten. Hier haben wir die Auswirkungen von drei verschiedenen ITCs auf die ROS-Produktion und auf die Expression von Matrix-Metalloproteinase (MMP) -2 und -9 verglichen, die wichtige pathogenetische Faktoren verschiedener neurologischer Erkrankungen darstellen. Primärkulturen von Rattenastrozyten wurden durch LPS aktiviert und gleichzeitig mit unterschiedlichen Dosen von Allylisothiocyanat (AITC), 2-Phenethylisothiocyanat (PEITC) und 2-Sulforaphan (SFN) behandelt. Die Ergebnisse zeigten, dass SFN und PEITC der durch H2O2 induzierten ROS-Produktion entgegenwirken konnten. Die zymographische Analyse von Zellkulturüberständen zeigte, dass PEITC und SFN die wirksamsten Inhibitoren von MMP-9 waren, wohingegen nur SFN die MMP-2-Aktivität signifikant hemmte. Die PCR-Analyse zeigte, dass alle verwendeten ITCs sowohl die MMP-2- als auch die MMP-9-Expression signifikant hemmten. Die Untersuchung des Signalwegs der Mitogen-aktivierten Proteinkinase (MAPK) zeigte, dass ITCs die MMP-Transkription modulieren, indem sie die Aktivität der extrazellulär regulierten Proteinkinase (ERK) hemmen. Die Ergebnisse dieser Studie deuten darauf hin, dass ITCs vielversprechende Nutrazeutika für die Prävention und ergänzende Behandlung von neurologischen Erkrankungen im Zusammenhang mit einer MMP-Beteiligung sein könnten.
SchlüsselwörterAntioxidans · Entzündungshemmer · Isothiocyanat · Matrix-Metalloproteinasen · Neurodegenerative Erkrankungen
Einführung
Neuroinflammation ist eine komplexe Reaktion auf eine Hirnverletzung, die eine Kaskade von biochemischen Ereignissen umfasst, die zur Aktivierung von im Zentralnervensystem (ZNS) ansässigen Zellen führt. Die fehlerhafte Aktivierung von Astrozyten beeinträchtigt ihre neuroprotektive Rolle, was zur Freisetzung von Entzündungsmediatoren führt, wie reaktive Sauerstoffspezies (ROS), Stickoxid (NO), Zytokine, Chemokine und Matrix-Metalloproteinasen
(MMPs).
MMPs sind eine große Familie von neutralen, Zn2 plus -abhängigen Endopeptidasen, deren Hauptziele die Komponenten der extrazellulären Matrix (ECM) wie Fibronektin, Kollagen, Elastin und Laminin sind (Latronico und Liuzzi 2017).
Tiziana Latronico
tiziana.latronico@uniba.it
Institut für Biowissenschaften, Biotechnologien und Biopharmazie, Universität Bari „Aldo Moro“,
Bari, Italien
Fakultät für Naturwissenschaften, Universität Basilikata, Potenza,
Italien
Im ZNS sind MMPs an verschiedenen physiologischen Reaktionen beteiligt, wie z. B. Morphogenese, Turnover und Umbau von ECM, Embryogenese und Wundheilung; Wenn MMPs jedoch Regulierungsmechanismen entkommen, werden sie schädlich (Rosenberg 2009; Agrawal et al. 2008).
In dieser Hinsicht ist bekannt, dass Veränderungen der MMP-Expression und -Aktivität zentrale pathogenetische Ereignisse bei mehreren neurologischen Erkrankungen sind (Latronico und Liuzzi 2017; Mastroianni und Liuzzi 2007; Brkic et al. 2015). Experimentelle Beweise haben gezeigt, dass unter den MMPs die Gelatinasen A (MMP-2) und B (MMP-9) besonders an der Neuroinflammation beteiligt sind, da ihre Hochregulierung die Integrität der Blut-Hirn-Schranke (BBB) beeinträchtigen kann. Dies führt zu einer erhöhten Rekrutierung und Infiltration von peripheren Immunblutzellen in das Gehirnparenchym, wodurch der Entzündungsprozess aufrechterhalten wird, der die Ursache für den fortschreitenden neuronalen Verlust und die Beeinträchtigung der neuronalen Funktion ist (Rivest 2009). Mehrere In-vitro- und In-vivo-Studien haben gezeigt, dass die ROS-Produktion einer der Faktoren ist, die an der Hochregulierung der MMP-9-Expression in Gehirnzellen über mitogenaktivierte Proteinkinase (MAPK)-Signalweg-abhängige Mechanismen beteiligt sind (Hsieh und Yang 2013).
Basierend auf diesen Beweisen ist es klar, dass die Herunterregulierung von neurotoxischen Faktoren, die zu verringerten neuroinflammatorischen Reaktionen führt, eine wirksame therapeutische Strategie darstellen kann, um das Auftreten von Gehirnerkrankungen zu verhindern oder deren Fortschreiten zu lindern.
In den letzten Jahren konzentrierte sich das biomedizinische Interesse im neurologischen Bereich zunehmend auf die Erforschung natürlicher Verbindungen, die in der Lage sind, die mit neuroinflammatorischen Reaktionen verbundenen Prozesse zu modulieren. In dieser Hinsicht haben mehrere Studien gezeigt, dass phytochemische Verbindungen wie Polyphenole, Isothiocyanate (ITCs) und andere ein neuroprotektives Potenzial haben, das sich auch aus ihrer Fähigkeit ergibt, die Expression von MMPs zu hemmen und der ROS-Produktion entgegenzuwirken (Dinkova-Kostova und Kostov 2012; Liuzzi ua 2007, 2011).
Isothiocyanate sind Stoffwechselprodukte, die von mehreren Pflanzen der Brassicaceae-Familie als Abwehrsystem gegen Pathogenangriffe produziert werden (Bones und Rossiter 2006). Sie entstehen beim enzymatischen Abbau von Glucosinolaten (GSL) durch das Enzym Myrosinase. ITCs sind in häufig verzehrten Kreuzblütlern wie Brokkoli, Rosenkohl, Kohl, Rüben, Meerrettich, Kohlrabi, Senf, Rettich, Brunnenkresse und Grünkohl enthalten. Ihre Mengen in Lebensmitteln sind sehr variabel und abhängig von der Lebensmittelverarbeitung und -zubereitung.
Kürzlich wurde gezeigt, dass ITCs eine Vielzahl von therapeutischen Wirkungen besitzen, einschließlich antioxidativer, antibakterieller, entzündungshemmender und chemopräventiver Wirkung (Dufour et al. 2015; Marzocco et al. 2015).
Die schützende Aktivität von ITCs erfolgt durch die Modulation verschiedener Signalwege, die an Entgiftung, Entzündung, Apoptose und Zellzyklusregulation beteiligt sind. Mehrere Beweise weisen darauf hin, dass die antikarzinogenen und entzündungshemmenden Eigenschaften von ITCs hauptsächlich ihrer Fähigkeit zugeschrieben werden könnten, den nuklearen Faktor Erythroid 2--verwandten Faktor 2 (Nrf2)-Weg zu aktivieren. Nrf2 ist ein Redox-sensitiver Transkriptionsfaktor, der in Gegenwart von elektrophilen Mitteln und oxidativen Stressbedingungen in den Zellkern wandert, wo es die Antioxidans-Response-Elemente (ARE) bindet und die Expression von zytoprotektiven Genen induziert, die an der Entgiftung und an der Modulation oxidativer Bedingungen beteiligt sind entzündliche Prozesse (Heiss et al 2001). In diesem Zusammenhang wurde berichtet, dass ITCs in der Lage sind, die antioxidative Kapazität menschlicher Zellen zu erhöhen, indem sie die Expression von entgiftenden Phase-II-Enzymen induzieren und die GSH-Produktion hochregulieren (Wagner et al. 2010). Darüber hinaus wurde über die Existenz einer Wechselwirkung zwischen Nrf2 und dem Kernfaktor (NF)-κB-Weg berichtet, die zur Modulation der Entzündung führt (Sturm und Wagner 2017; Lee und Johnson 2004). In dieser Hinsicht haben verschiedene experimentelle In-vitro- und In-vivo-Modelle der Neuroinflammation gezeigt, dass ITCs in der Lage sind, die NF-κB-Translokation mit der daraus folgenden Hemmung proinflammatorischer Zytokine und MMPs signifikant zu verringern (Lee et al. 2015; Subedi et al. 2017).
In diesem Artikel untersuchten wir die Wirkung von drei ITCs, nämlich Allylisothiocyanat (AITC), 2-Phenethylisothiocyanat (PEITC) und 2-Sulforaphan (SFN) auf die Freisetzung von MMP-2 und -9 sowie auf die ROS-Produktion durch LPS-aktivierte Astrozyten. Unsere Ergebnisse zeigten, dass PEITC, SFN und AITC in der Lage sind, die Expression von MMP-9 und MMP-2 in LPS-aktivierten Astrozyten in vitro zu hemmen und der durch H2O2 induzierten ROS-Produktion entgegenzuwirken. Darüber hinaus haben wir gezeigt, dass ITCs die Überexpression von MMPs mit Mechanismen modulieren, die mit der Hemmung der Aktivität der extrazellulär regulierten Proteinkinase (ERK) zusammenhängen. Diese Ergebnisse deuten darauf hin, dass eine an Kreuzblütlern reiche Ernährung potenzielle Vorteile für die Prävention und ergänzende Behandlung von neurologischen Erkrankungen haben kann.

Materialen und Methoden
Chemikalien und Reagenzien
Dulbeccos modifiziertes Eagle-Medium (DMEM), fötales Rinderserum (FBS), Penicillin und Streptomycin wurden von GIBCO (Paisley, Schottland) bereitgestellt. Gelatine, DNase 1, Poly-L-Lysin
(PLL), Trypsin, Lipopolysaccharid (LPS), Trypanblau und 3-(4,5-Dimethylthiazol-2-yl)-2.5-Diphenyltetrazoliumbromid (MTT ), Allylisothiocyanat (AITC) [cod. 377.430, Reinheit 95 Prozent (HPLC)], 2-Phenethylisothiocyanat (PEITC) [cod. 253.731, Reinheit 99 % )], 2-Sulforaphan (SFN) [cod. S6317, Reinheit größer als oder gleich 95 Prozent (HPLC)] wurden von Sigma (St. Louis, MO, USA) bereitgestellt. 2',7'-Dichlorfluoresceindiacetat (DCFH-DA) wurde von Calbiochem bezogen. Standardproteine und R-250 Coomassie Brilliant Blue stammten von Bio-Rad (Hercules, CA, USA). Anti-gliales fibrilläres saures Protein (GFAP)-Antikörper (RRID: AB_2294571) wurden von Serotec (Oxford, UK) gekauft. Antikörper gegen extrazellulär regulierte Proteinkinasen (ERK) 1/2 und phosphorylierte ERK 1/2 (p-ERK 1/2) stammten von Santa Cruz Biotechnology (Santa Cruz, CA). Hybond-P PVDF-Membranen, verstärktes Chemilumineszenz (ECL)-Western-Blotting-Analysesystem und Anti-Maus-HRP-Sekundärantikörper stammten von GE
Biowissenschaften im Gesundheitswesen (Little Chalfont, Buckinghamshire,
Das Vereinigte Königreich). Für MMP-2, MMP-9 und 18S-rRNA spezifische Primerpaare stammten von Sigma Genosys (Cambs, UK). Das RNeasy-Mini-Kit und das QuantiTect-Reverse-Transcription-Kit wurden von Qiagen (Valencia, CA, USA) bezogen. Die Econo-Taq PLUS GREEN 2X Master Mix-Reagenzien für die PCR wurden von Lucigen Corporation (Middleton, WI, USA) bezogen.
Ethik-Erklärung
Die Tierversuche wurden gemäß den Empfehlungen des NIH-Leitfadens für die Pflege und Verwendung von Labortieren und mit Genehmigung des Institutional Animal Care and Use Committee der Universität Bari, Italien, durchgeführt (Genehmigungsnummer: 23-98- EIN).
Herstellung von Astrozytenkulturen
Astrozyten wurden aus den neokortikalen Geweben von {{0}} Tage alten Wistar-Ratten (RRID: RGD_737960, Harlan Laboratories srl, Udine, Italien) präpariert. Für die Präparation von Astrozyten wurden 6 Würfe mit je 12 Jungtieren beiderlei Geschlechts verwendet. Die Tiere wurden eingeschläfert, indem man sie Kohlendioxid (CO2) aussetzte und durch schnelles Köpfen tötete. Die neokortikalen Gewebe wurden präpariert und zur Reinigung von primären Gliazellkulturen nach dem von Latronico et al. berichteten Verfahren verwendet. (2018). Kurz gesagt, nach der Sektion wurden Rattengehirne von Meningen und Blutgefäßen befreit, mechanisch zerkleinert und mit 0,25 Prozent Trypsin in Gegenwart von 0,01 Prozent DNase verdaut. Nach Zentrifugation und Bewertung der Zelllebensfähigkeit wurden die Zellen in PLL-beschichteten Kolben (75 cm2) mit einer Dichte von 1,5 × 10⁷ Zellen/Kolben in DMEM, 10 Prozent FBS, 100 IE ml –1 Penicillin, 100 μg ml –1 Streptomycin ausplattiert , und gehalten bei 37 Grad in einem 5-Prozent-CO2. Nach 7 Tagen wurden die Kolben geschüttelt, um Oligodendrozyten und Mikroglia zu entfernen. Die Reinheit der durch Trypsinisierung (0,25 Prozent Trypsin/0,02 Prozent EDTA) erhaltenen Astrozyten wurde durch Immunfärbung auf GFAP bewertet.
Behandlung von LPS‑aktivierten Astrozyten mit Allylisothiocyanat, Phenethylisothiocyanat oder 2‑Sulforaphan
Konfluente Astrozyten, ausgesät in 96-Well-Platten, wurden mit 10 µg mL –1 LPS stimuliert und gleichzeitig mit unterschiedlichen Konzentrationen von Allylisothiocyanat (AITC), 2-Phenethylisothiocyanat (PEITC) oder 2-Sulforaphan behandelt (SFN) in serumfreiem DMEM. Astrozyten in serumfreiem DMEM und LPS-aktivierte Astrozyten stellten Negativ- bzw. Positivkontrollen dar. Da die Stammlösungen von AITC (100 µM), PEITC (67 µM) und SFN (56,4 µM) in DMSO hergestellt wurden, wurde außerdem eine Dosis-Wirkungs-Kurve für DMSO, verdünnt in Kulturmedium bei der gleichen Lösungsmittelkonzentration, die in vorhanden ist, erstellt den analysierten Proben, wurde durchgeführt, um die Toxizität der Verbindung abzuschätzen. Nach 20 h Inkubation bei 37 Grad, 5 Prozent CO2 wurden die Überstände gesammelt und bis zur Verwendung bei -20 Grad gelagert, während die Zellen einem MTT-Test unterzogen wurden, um die Lebensfähigkeit der Zellen zu beurteilen.
MTT-Zelllebensfähigkeitstest
Die Zytotoxizität von AITC, PEITC und SFN auf Astrozyten wurde mit dem MTT [{{0}}(4,5-dimethylthiazol-2-yl)- 2,{{5 }}Diphenyltetrazoliumbromid]-Assay. Dieser Assay basiert auf der Reduktion von MTT durch die mitochondriale Succinat-Dehydrogenase in lebensfähigen Zellen zu einem unlöslichen blauen Formazan-Produkt, das spektrophotometrisch gemessen werden kann. Kurz gesagt, nach 20-stündiger Behandlung mit AITC, PEITC oder SFN wurde das Kulturmedium entfernt und die Zellen wurden mit 0,5 mg ml –1 MTT beladen. Nach 2-stündiger Inkubation bei 37 Grad wurde das 5-prozentige CO2-Medium entfernt und die Formazan-Kristalle in den Zellen wurden mit 90-prozentigem Ethanol solubilisiert. Nach 15-minütigem Schütteln der Platten, um eine vollständige Solubilisierung der Kristalle zu erhalten, wurde die Menge des Formazan-Produkts durch optische Extinktion bei 560 nm mit einer Referenzwellenlänge von 690 nm bestimmt. Die Lebensfähigkeit der Zellen wurde als Prozentsatz der Kontrolle (CTRL) ausgedrückt, dargestellt durch unbehandelte Zellen, die auf 100 Prozent gesetzt wurde. Für jede Verbindung wurde eine Dosis-Antwort-Kurve der Zelllebensfähigkeit erhalten.
Erkennung reaktiver Sauerstoffspezies
Der Nachweis reaktiver Sauerstoffspezies (ROS) erfolgte durch Beladen von Astrozyten mit 10 μM 2',7'-Dichlorfluoresceindiacetat (DCFH-DA) in phenolrotfreiem DMEM bei 37 Grad für 30 min. Dann wurde DCFH-DA aus den Vertiefungen entfernt und die Zellen wurden für 1 h mit AITC (400 μM), PEITC (10 μM) oder SFN (25 μM) in Phenolrot-freiem DMEM in Gegenwart von H2O2 in der Endkonzentration von 100 μM behandelt . Nur mit DCFH-DA oder mit H2O2 behandelte Zellen stellten die negative (CTRL) bzw. positive Kontrolle (H2O2) dar. Nach der Inkubation wurden die Zellen mit PBS gespült und mit lysiert
Tris-HCl 10 mM/NaCl 150 mM/Triton X-100 0,5 Prozent, pH 7,5,
dann zentrifugiert bei 10,000×g, 4 Grad für 10 min. Überstände wurden gesammelt und ihre spektrofluorimetrische Analyse wurde bei 525 nm unter Anregung bei 485 nm durchgeführt. Die Ergebnisse wurden auf den Gesamtproteingehalt normalisiert und die ROS-Produktion wurde als relativer Prozentsatz der Intensität der Photolumineszenz (PL) gegenüber der Positivkontrolle ausgedrückt.
Nachweis von Gelatinasen
Gelatinase-Aktivität in Zellüberständen (SNs) wurde durch zymographische Analyse nachgewiesen, wie von Latronico et al. (2013). Kurz gesagt wurde eine Menge an SN, die etwa 10 &mgr;g Gesamtproteinen entsprach, mit 30 &mgr;l Laemmli-Probenpuffer ohne &bgr;-Mercaptoethanol solubilisiert. Proben wurden in einem 7,5-prozentigen Polyacrylamidgel laufen gelassen, das mit 0,1 Prozent (Gew./Vol.) Gelatine copolymerisiert war. Nach dem Elektrophoreselauf wurden die Gele zweimal mit 2,5 % Triton X-100/10 mM CaCl2 in 50 mM Tris-HCl, pH 7,4 gespült und für 24 h bei 37 Grad in 1 % Triton X-100 inkubiert. /50 mM Tris-HCl/10 mM CaCl2, pH 7,4. Die Gele wurden mit Coomassie-Brillantblau R-250 gefärbt und in Methanol/Essigsäure/H2O (4:1:5 v/v) entfärbt. Die Gelatinase-Aktivität wurde als klare Verdauungsbande auf einem blauen Hintergrund des Gels sichtbar gemacht und wurde durch computergestützte densitometrische Bildanalyse unter Verwendung der Image LabTM-Software (Bio-Rad Laboratories) quantifiziert. Gelatinase
Die Aktivität wurde als optische Dichte (OD) × mm2 ausgedrückt, die den Scanbereich unter den Kurven darstellt, der sowohl die Helligkeit als auch die Breite der Substratlysezone berücksichtigt. Die Daten wurden unter Verwendung der folgenden Gleichung ausgedrückt: Prozent Hemmung=[100 – (OD-Probe/OD-Positivkontrolle) × 100].
Reverse Transkription-Polymerase-Kettenreaktion (RT-PCR)
In Platten mit 6 Vertiefungen ausgesäte Astrozyten wurden mit LPS (10 µg ml –1) aktiviert und gleichzeitig mit ITCs in der maximalen nicht-toxischen Konzentration behandelt. Nach 20 h Inkubation wurde Gesamt-RNA aus Astrozyten unter Verwendung des Qiagen RNeasy Mini-Kits gemäß den Anweisungen des Herstellers extrahiert. Komplementäre DNA (cDNA) wurde aus 500 ng RNA unter Verwendung des QuantiTect Reverse Transcription Kits gemäß den Anweisungen des Herstellers synthetisiert. Insgesamt 25 ng Produkte der reversen Transkription wurden verwendet, um ein 591 bp-Fragment unter Verwendung spezifischer Primer zu amplifizieren (Sense 5′-GTC ACT CCG CTG CGC TTT TCT CG-3′; Antisense 5′-GAC ACA TGG GGC ACC TTC TGA-3′) für die Ratten-MMP-2-Sequenz und ein 541-bp-Fragment unter Verwendung spezifischer Primer (Sense 5′-CGG AGC ACG GGG ACG GGT ATC 3′; Antisense 5′-AAG ACG AAG GGG AAG ACG CAC ATC 3′) für die Ratten-MMP-9-Sequenz. Parallel dazu wurde die Amplifikation eines 308-bp-Fragments der Ratten-18S-rRNA (Sense-5′-GCCTAGATA CGCCAGCTAGGA-3′; Antisense-5′-TCATGGCCTCAG TTCCGAA-3′), eines relativ unveränderlichen internen Referenzgens, durchgeführt . Die bereits in anderen Studien validierten Primer-Sets (Latronico et al. 2013; Liuzzi et al. 2004; Gramegna et al. 2011) erkennen spezifisch nur die interessierenden Gene, was durch die Amplifikation einer einzelnen Bande der erwarteten Größe der PCR angezeigt wird Produkte. Die PCR - Amplifikation wurde für 25 Zyklen durchgeführt , von denen jeder aus Denaturierung bei 94 Grad , Annealing bei 59 Grad und Verlängerung bei 72 Grad bestand . Nach der Amplifikation wurden die Produkte in 1,5-prozentigen Agarosegelen analysiert. Nach der densitometrischen Analyse der Gele wurde die Amplifikation der Zielgene auf die 18S-rRNA-Expression normalisiert, und die Ergebnisse wurden als Prozentsatz der Hemmung im Vergleich zur positiven Kontrolle ausgedrückt, wie für die Gelatinase-Quantifizierung angegeben.
Nachweis der ERK 1/2-Phosphorylierung durch Western-Blot-Analyse
ERK 1/2 wurden durch Immunoblot-Analyse nachgewiesen, wie von Latronico et al. (2018). Kurz gesagt, konfluente primäre
in {{0}}-Well-Platten ausplattierte Astrozyten, die 24 h in serumfreiem Medium ruhten, wurden 1 h mit AITC (400 μM), PEITC (10 μM) vorbehandelt, oder SFN (25 μM) in Phenolrot-freiem DMEM. Nach Stimulation für 2 h mit 10 ug mL-1 LPS wurden die Zellen mit 20 mM Tris-HCl, 150 mM NaCl, 2,5 mM Na-Pyrophosphat, 1 mM Glycerophosphat 1 % Triton X-100, 1 mM lysiert Phenylmethylsulfonylfluorid, 20 ug/ml Aprotinin, 1 mM EGTA, 1 mM Na-Fuorid, 1 mM Na3VO4, pH 7,5. 60 ug Gesamtproteine jeder Probe wurden durch 10-prozentige SDS-Polyacrylamid-Gelelektrophorese aufgelöst und die Proteine wurden dann auf Polyvinylidendifluorid-Membranen immungeblottet. Nach dem Blockieren über Nacht bei 4 Grad mit 0,05 Prozent Tween 20, 1 Prozent Milch, 1 Prozent Rinderserumalbumin in 150 mM NaCl, 20 mM Tris-HCl (pH 7,5) wurden die Membranen über Nacht bei 4 Grad mit einem monoklonalen Anti-p- ERK 1/2 Antikörper (1:500). Dann wurden die Membranen dreimal mit 0,05 % Tween 20 in Tris-gepufferter Kochsalzlösung gewaschen, mit Anti-Maus-Meerrettich-Peroxidase-Sekundärantikörper (1:20, 000) für 2- h bei 24 Grad sondiert und nachgewiesen mit verstärkter Chemilumineszenz. Um die Gesamtmenge an ERK zu bestimmen, wurden Membranen abgestreift und mit einem für nicht-phosphoryliertes ERK 1/2 (1:500) spezifischen Antikörper inkubiert. Die Bandenintensitäten wurden durch densitometrisches Scannen von Blots quantifiziert und die Phosphorylierungsgrade von ERK 1/2 wurden auf nicht phosphoryliertes ERK 1/2 normalisiert und als Prozentsatz im Vergleich mit der Positivkontrolle (mit LPS behandelte Astrozyten) ausgedrückt, gemäß der folgende Gleichung:
Prozent pERK 1/2=(OD-Probe/OD-Positivkontrolle) × 100.
statistische Analyse
Die Datenanalyse wurde mit dem GraphPad Prism 5.0 (GraphPad Software Inc., San Diego, CA, USA) durchgeführt. Die Daten wurden als Mittelwerte ± SD ausgedrückt. Die statistische Analyse wurde unter Verwendung einer Einweg-Varianzanalyse (ANOVA), gefolgt von dem Dunnett-Mehrfachvergleichs-Post-Hoc-Test, durchgeführt.

Ergebnisse
Wirkung von Isothiocyanatverbindungen auf die Lebensfähigkeit von Astrozyten
Vorläufige Experimente wurden durchgeführt, um die Zytotoxizität von AITC, PEITC oder SFN zu bewerten. Zu diesem Zweck wurden gereinigte Astrozyten für 20 h mit den ITC-Verbindungen in Konzentrationen zwischen 5 und 400 &mgr;M oder mit DMSO, verdünnt in Kulturmedium, wie im Methodenteil beschrieben, behandelt. Wie in Fig. 1 gezeigt, war das DMSO bei allen verwendeten Konzentrationen, die denen der getesteten ITC-Lösungen entsprechen, nicht toxisch. Unter den untersuchten ITCs sind AITC
Abb. 1 Zelllebensfähigkeit von mit Isothiocyanatverbindungen behandelten Astrozyten. Konfluente primäre Astrozyten wurden 20 h mit Allylisothiocyanat (AITC), 2-Phenethylisothiocyanat (PEITC) oder 2-Sulforaphan (SFN) in den angegebenen Konzentrationen behandelt und dann dem MTT-Assay unterzogen. Da es außerdem in den Stammlösungen in Dimethylsulfoxid (DMSO) gelöst war, wurde in jedem Experiment eine Dosis-Wirkungs-Kurve für DMSO, verdünnt in Kulturmedium bei der gleichen Lösungsmittelkonzentration (Prozent), die in den ITC-Proben vorhanden war, durchgeführt, um zu erhalten eine zuverlässige Schätzung der ITC-Toxizität. Die Steuerung (CTRL) wurde
parfümiert aus unbehandelten Astrozyten in serumfreiem DMEM. Die Diagramme stellen die Dosis-Antwort-Kurven der Zelllebensfähigkeit dar, ausgedrückt als Prozentsatz des Zellüberlebens im Vergleich zur Kontrolle. Die Dosen von Verbindungen, die die Zelllebensfähigkeit über 60 Prozent bestimmten, wurden als maximale nicht-toxische Konzentrationen gewählt. Die Werte sind Mittelwerte ± Standardabweichung von n=3 Experimenten, die an verschiedenen Zellpopulationen durchgeführt wurden. Mikrographen zeigen repräsentative Ergebnisse der Zellmorphologie, beobachtet unter einem Phasenkontrastmikroskop (50-fache Vergrößerung) nach Behandlung mit den verschiedenen Verbindungen
war weniger toxisch für Astrozyten. Insbesondere war AITC für Zellen bis zu 400 &mgr;M nicht toxisch, während PEITC und SFN bei Konzentrationen über 10 bzw. 25 &mgr;M toxisch waren. Die mikroskopische Beobachtung bestätigte die Ergebnisse des MTT-Assays, die zeigten, dass bei den toxischen Konzentrationen von PEITC und SFN die Zahl der Astrozyten reduziert war und die verbleibenden zytotoxische Veränderungen in ihrem Zytoplasma zeigten.
Schutzwirkung von ITC-Verbindungen auf die ROS-Produktion in mit Wasserstoffperoxid behandelten Astrozyten
Um die Schutzwirkung von ITCs gegenüber oxidativem Stress zu bewerten, wurden Astrozyten mit PEITC, AITC und SFN in der maximalen nicht-toxischen Konzentration vorbehandelt und dann mit H2O2 stimuliert. Die durch H2O2 induzierte intrazelluläre ROS-Produktion wurde mit DCFH-DA untersucht. Wie in Abb. 2 gezeigt, verstärkt die Einwirkung von H2O2 das Fluoreszenzsignal
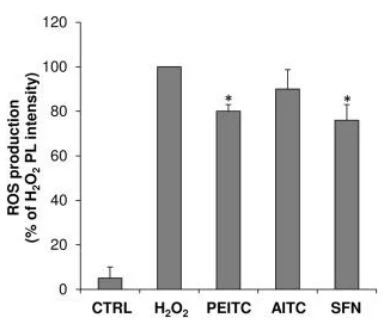
Abb. 2 Produktion von reaktiven Sauerstoffspezies (ROS) in mit ITCs behandelten Astrozyten. Das Vorhandensein von ROS wurde durch Messen der Änderungen des Fluoreszenzsignals von 2',7'-Dichlorfluorescein (DCFA) untersucht, wie im Abschnitt "Materialien und Methoden" berichtet. In 6-Well-Platten ausgesäte Astrozyten wurden 30 min mit DCFA vorbehandelt und dann 1 h mit 10 μM PEITC, 400 μM AITC oder 25 μM SFN in Gegenwart von H2O2 in einer Endkonzentration von 100 μM behandelt . Astrozyten, die mit DCFA allein (CTRL) oder mit 100 μM H2O2 behandelt wurden, repräsentierten negative bzw. positive Kontrollen. Das in Zelllysaten nachgewiesene Fluoreszenzsignal wurde mit einem Fluorometer bei 525 nm unter Anregung bei 485 nm gemessen. Die ROS-Produktion wurde als Prozentsatz (Prozent) der Intensität der Photolumineszenz (PL) im Vergleich zur Positivkontrolle ausgedrückt. Die Werte sind Mittelwerte ± SD von n=3 Experimenten, die an verschiedenen Zellpopulationen durchgeführt wurden. Statistisch signifikante Abnahme im Vergleich zu H2O2 wird durch Sternchen angezeigt (Einweg-ANOVA gefolgt von Dunnets Post-Hoc-Test; *p <>
Astrozyten im Vergleich zur Kontrolle (CTRL). Wie durch die Abnahme der DCF-Fluoreszenzintensität belegt, wirkte die Vorbehandlung von Astrozyten mit ITC-Verbindungen der durch H2O2 induzierten ROS-Erzeugung entgegen. Unter den getesteten ITCs konnten nur PEITC und SFN die ROS-Produktion im Vergleich zu einer Positivkontrolle (H2O2) signifikant um etwa 20 bzw. 24 Prozent reduzieren.
Die Isothiocyanat-Verbindungen hemmen die MMP-2- und MMP-9-Spiegel in LPS-aktivierten Astrozyten
Die Wirkung von ITC-Verbindungen auf die MMP-2- und MMP-9-Spiegel wurde an Astrozyten bewertet, die mit LPS aktiviert wurden, von dem bekannt ist, dass es die Expression von Gelatinasen induziert (Gottschall und Deb 1996), und gleichzeitig mit AITC behandelt wurden. PEITC oder SFN im Konzentrationsbereich, der für Zellen nicht toxisch war. Wie in Fig. 3a gezeigt, waren zwei klare Verdauungsbanden von 72 und 92 kDa auf dem Gel vorhanden, die MMP-2 bzw. MMP-9 entsprachen. Die Aktivierung von Astrozyten mit LPS erhöhte die Spiegel von MMP-2 und induzierte die Synthese von MMP-9. Die Behandlung mit AITC (Abb. 3b), PEITC (Abb. 3c) oder SFN (Abb. 3d) bestimmt sich dosisabhängig
Verringerung der MMP-9-Spiegel, die je nach verwendeter Verbindung variierten. Unter den verwendeten ITC war insbesondere SFN das wirksamste bei der Hemmung von MMP-9, da es eine 70-prozentige Hemmung bei einer Dosis von 10 μM und eine 100-prozentige Hemmung bei einer Dosis von 25 μM feststellte. Darüber hinaus war nur SFN in der maximalen nicht-toxischen Konzentration in der Lage, MMP -2 signifikant zu hemmen (Abb. 2d).
Die Isothiocyanatverbindungen hemmen die MMP-2- und MMP-9-Genexpression in LPS-aktivierten Astrozyten
Um zu bestimmen, ob die untersuchten ITC-Verbindungen in der Lage waren, die MMP-2- und MMP-9-Expression zu inhibieren, wurde RT-PCR an LPS-aktivierten Astrozyten durchgeführt, die mit der maximalen nicht-toxischen Konzentration von ITCs behandelt wurden. Wie in den repräsentativen Gelen in Abb. 4a gezeigt, konnte die Behandlung von LPS-aktivierten Astrozyten mit den einzelnen ITCs der erhöhten Expression von MMP-2- und MMP-9-mRNA entgegenwirken. Wie in Fig. 4b gezeigt, zeigte die quantitative Analyse der Ergebnisse, dass die ITC-Verbindungen bei der maximalen nicht-toxischen Konzentration eine statistisch signifikante Hemmung der MMP-2- und MMP-9-Expression im Vergleich bewirkten zu einer positiven Kontrolle (LPS). Insbesondere üben PEITC und SFN den gleichen Prozentsatz an Hemmung auf MMP-2 (85 Prozent) und MMP-9 (100 Prozent) aus, während AITC bei der Hemmung von MMP{{17} weniger wirksam war als PEITC und SFN. } (65 Prozent) und MMP-9-Ausdruck (90 Prozent).
ERK 1/2 ist an der Hemmung der MMP-Expression durch ITC beteiligt
Da ERK 1/2 der wichtigste Signaltransduktionsweg ist, der an der Regulation der MMP-2- und MMP-9-Expression in LPS-aktivierten Astrozyten beteiligt ist (Lee et al. 2003), ist die Wirkung von ITC-Verbindungen auf die Die Aktivierung von extrazellulär regulierten Proteinkinasen (ERK) 1/2 wurde getestet.
Wie in Fig. 5 gezeigt, induzierte LPS einen statistisch signifikanten Anstieg der Spiegel an phosphoryliertem ERK 1/2 (p-ERK), dem durch Vorbehandlung mit den ITC-Verbindungen entgegengewirkt wurde.
Diskussion
Es wird allgemein angenommen, dass die wichtigsten Abwehrstrategien gegen viele Krankheiten hauptsächlich darin bestehen, Risikofaktoren zu vermeiden und einen richtigen Lebensstil anzunehmen. Es gibt zahlreiche wissenschaftliche Beweise, die die Hypothese stützen, dass einige natürliche Metaboliten, die typischerweise von verschiedenen Arten von Obst und Gemüse produziert werden, pathologische Phänomene wie Krebs, neurologische Erkrankungen und andere multifaktorielle Erkrankungen modulieren können. In diesem Szenario weckten die Isothiocyanate (ITCs) aufgrund ihrer antimykotischen, antibakteriellen,
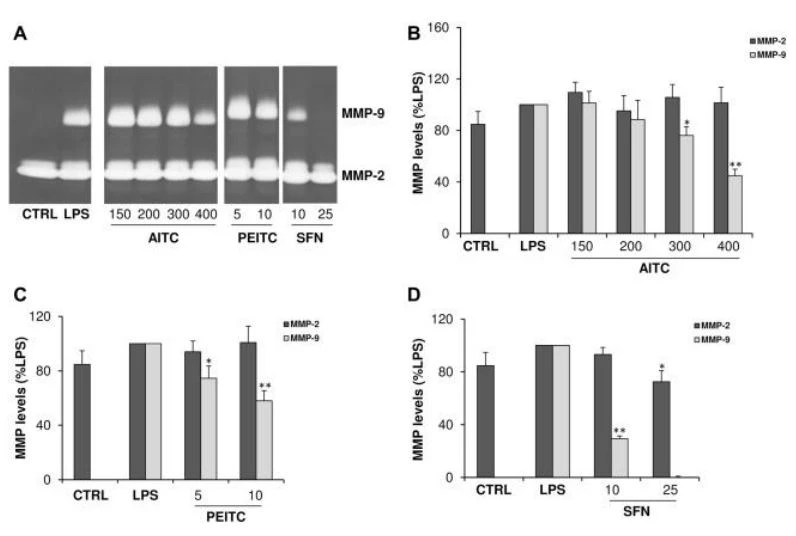
Abb. 3 Wirkung von Isothiocyanatverbindungen auf MMP-2- und MMP-9-Spiegel in LPS-aktivierten Astrozyten. In a wird über ein repräsentatives zymographisches Gel der Analyse von Kulturüberständen von Astrozyten berichtet, die mit LPS (10 ug mL-1) aktiviert und gleichzeitig 20 h lang mit AITC, PEITC oder SFN in den angegebenen Konzentrationen (μM) behandelt wurden. Negativ- und Positivkontrollen wurden von unstimulierten und unbehandelten Astrozyten in serumfreiem Medium (CTRL) und LPS- erhalten.
aktivierte Zellen (LPS). Die Histogramme b–d stellen die Ergebnisse (Mittelwert ± Standardabweichung) von n {{0}} Experimenten dar, die an verschiedenen Zellpopulationen durchgeführt wurden, ausgedrückt als Prozentsatz der MMP-Hemmung im Vergleich zu LPS, berechnet nach Scanning-Densitometrie und computergestützter Analyse von Gelen . Eine statistisch signifikante Abnahme im Vergleich zu LPS ist durch Sternchen gekennzeichnet (Einweg-ANOVA, gefolgt von Dunnets Post-Hoc-Test; *p < 0,05,="" **p=""><>
antikarzinogene, antimutagene, antioxidative und entzündungshemmende biologische Eigenschaften (Dufour et al. 2015; Marzocco et al. 2015; Vig et al., 2009; Talalay und Fahey 2001). Isothiocyanate stammen aus dem enzymatischen Abbau von Glucosinolaten (GSL), die sekundäre Metaboliten sind, die in 15 botanischen Familien der Capparales-Ordnung vorkommen und in der Familie Brassicaceae sehr häufig vorkommen (Fahey et al. 2001). GSL werden durch Myrosinase (-Thioglucosid-Glucohydrolase E; EC 3.2.3.147) in eine Vielzahl von Komponenten wie ITCs, Nitrite, Thiocyanate, Epithionitrile, SFGate, Glucose und Oxazolidine hydrolysiert (Li und Kushad 2005). Obwohl ITCs auf dem Gebiet der Chemotherapie ausgiebig untersucht wurden (Grundemann und Huber 2018), wurden nur wenige Untersuchungen zu ihrem therapeutischen Potenzial bei neurologischen Erkrankungen durchgeführt, obwohl die Fähigkeit von SFN und AITC gezeigt wurde, die BBB zu durchqueren und sich im Gehirnparenchym anzureichern (Clarke et al. 2011; Jazwa et al. 2011; Zhang 2010). In diesem Papier haben wir die Auswirkungen von drei ITCs verglichen,
in mehreren häufig verzehrten Kreuzblütlern, auf die Produktion reaktiver Sauerstoffspezies (ROS) und die Expression von Matrix-Metalloproteinase (MMP) in einem In-vitro-Modell der Neuroinflammation, dargestellt durch Astrozyten, die mit Lipopolysaccharid (LPS) aktiviert oder mit H2O2 behandelt wurden. Astrozyten, der am häufigsten vorkommende Gliazelltyp des ZNS, spielen eine entscheidende Rolle bei der Aufrechterhaltung der Homöostase des Gehirns und sind Kennzeichen verschiedener neurologischer Erkrankungen (Cekanaviciute und Buckwalter 2016; Colombo und Farina 2016). Sie gelten als entscheidende Regulatoren der angeborenen Immunantwort und ihre Reaktion auf schädliche Einflüsse wie oxidativen Stress kann Entzündungsreaktionen und Gewebeschäden verschlimmern oder die Gewebereparatur fördern. Es ist bekannt, dass aktivierte Astrozyten neurotoxische Faktoren wie MMPs produzieren, die eine Schlüsselrolle bei der Förderung von Neuroinflammation und fortschreitendem neuronalem Verlust bei neurologischen Erkrankungen spielen (Hsieh und Yang 2013). Daher ist die Modulation der
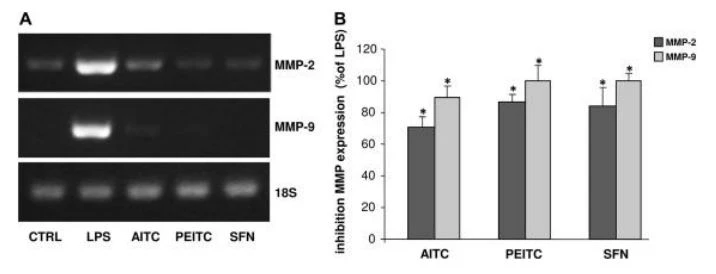
Abb. 4 Wirkung von ITC-Verbindungen auf die MMP-2- und MMP-9-Expression in LPS-aktivierten Astrozyten. In 6-Well-Platten ausgesäte Astrozyten wurden mit LPS (10 µg mL-1) aktiviert und gleichzeitig für 20 h mit AITC (400 µM), PEITC (10 µM) oder SFN (25 µM) behandelt und dann einer RT-PCR. Repräsentative Agarosegele der MMP-2- und MMP-9-Expression sind in (a) angegeben. Histogramme in (b) stellen Ergebnisse (Mittelwert ± Standardabweichung) von n=3-Experimenten dar, die an verschiedenen Zellen durchgeführt wurden
Ereignisse, die nach der Aktivierung von Astrozyten auftreten, könnten die Entzündungsreaktion und den neuronalen Schaden abschwächen.
Die Ergebnisse dieser Studie zeigten, dass AITC unter den untersuchten ITCs weniger toxisch war, da es bei allen verwendeten Konzentrationen zu keiner Verringerung der Zelllebensfähigkeit führte. Im Gegensatz dazu zeigten PEITC und SFN, ähnlich wie von anderen Autoren bei verschiedenen Gliazelllinien beobachtet, Zelltoxizität bei Konzentrationen von mehr als 10 bzw. 25 µM (Lee et al. 2015; Eren et al. 2018; Su et al . 2015).
In der aktuellen wissenschaftlichen Literatur gibt es viele kontroverse Daten zu den molekularen Mechanismen, die den Auswirkungen von ITCs auf die Zelllebensfähigkeit zugrunde liegen. In dieser Hinsicht deuten die meisten Studien darauf hin, dass ITCs die Zellwachstum-induzierende Apoptose, den Zellzyklusarrest und die Bildung von ROS in Krebszellen, aber nicht in normalen Zellen hemmen (Fofaria et al. 2015; Qin et al. 2018; Sestili und Fimognari 2015). Wir fanden heraus, dass SFN und PEITC, aber nicht AITC, eine schützende Rolle gegen oxidativen Stress in Astrozyten spielen, tatsächlich waren sie bei den maximalen nicht-toxischen Konzentrationen in der Lage, der durch H2O2-Exposition induzierten ROS-Produktion entgegenzuwirken. Das ZNS ist aufgrund seines hohen Sauerstoffverbrauchs, seiner schwachen Antioxidationssysteme und seines hohen Gehalts an oxidationsanfälligen Biomakromolekülen besonders anfällig für oxidativen Stress. Es wird angenommen, dass die Erzeugung von ROS und oxidativen Schäden an der Pathogenese von neurologischen Erkrankungen wie der Alzheimer-Krankheit (AD), der Parkinson-Krankheit (PD), der Amyotrophen Lateralsklerose (ALS) und der Multiplen Sklerose (MS) beteiligt ist (Lee et al. 2015). Obwohl in unseren In-vitro-Experimenten SFN und PEITC der ROS-Produktion in moderatem Maße entgegenwirkten, könnten wir daher annehmen, dass eine verlängerte Verabreichung von ITCs in vivo zu einer signifikanteren Verringerung der ROS führen kann, die im Laufe der Zeit zu einer Bedeutung führen kann für Populationen, ausgedrückt als Prozentsatz der MMP-Hemmung im Vergleich zur Positivkontrolle (LPS), berechnet nach Scanning-Densitometrie und computergestützter Gelanalyse. Eine statistisch signifikante Abnahme der MMP-2- und MMP-9-Expression im Vergleich zu LPS ist durch Sternchen gekennzeichnet (Einweg-ANOVA, gefolgt von Dunnets Post-Hoc-Test; *p <>
die Prävention und Modulation von Gehirnerkrankungen. ROS fungiert als entscheidendes Signalmolekül, um die Kaskade der Entzündungsreaktion in das ZNS auszulösen. In dieser Hinsicht ist bekannt, dass ROS die Expression vieler Gene regulieren, die an der Neuroinflammation beteiligt sind, indem sie entzündungsfördernde Transkriptionsfaktoren wie den Nuklearfaktor κB (NF-κB) aktivieren (Lee et al. 2015; Chiurchiù et al. 2016; Martorana et al. 2019). In diesem Szenario spielen MMPs eine wichtige Rolle, deren Expression durch ROS durch die Aktivierung von NF-κB hochreguliert wird (Yan und Boyd 2007).
Da die MMP-Dysregulation zur Pathogenese zahlreicher neuroinflammatorischer und neurodegenerativer Erkrankungen beiträgt, stellt ihre Hemmung eine wichtige therapeutische Strategie dar. Aus diesem Grund konzentrierte sich in den letzten zehn Jahren ein wachsendes Interesse auf das Potenzial von Arzneimitteln und Naturstoffen, MMPs zu hemmen. Zahlreiche In-vitro-Studien haben gezeigt, dass die entzündungshemmende und antioxidative Wirkung mehrerer Medikamente und bioaktiver Verbindungen, die in Gemüse und Meeresorganismen vorhanden sind, mit ihrer Fähigkeit verbunden sind, die Expression von MMPs zu hemmen (Latronico et al. 2016, 2018; Di Bari et al . 2015). In dieser Studie haben wir gezeigt, dass unter den getesteten ITCs SFN und PEITC am wirksamsten bei der Hemmung der MMP-2- und MMP-9-Spiegel und der Expression in LPS-aktivierten Astrozyten waren. Die Hemmung von MMPs durch ITCs wurde in anderen In-vivo- und In-vitro-Studien berichtet. Insbesondere Li et al. (2013) zeigten, dass SFN in der Lage ist, den BBB-Schaden zu mildern, indem es die MMP-9-Expression in einem In-vivo-Modell der experimentellen Autoimmunenzephalomyelitis hemmt. Andere Autoren berichteten, dass SFN die MMP-9-Expression nach einer Rückenmarksverletzung bei Mäusen abschwächen konnte (Mao et al. 2010a). Darüber hinaus zeigten In-vitro-Studien, dass die Unterdrückung von Zellmigration und Zellmigration durch ITCs

Abb. 5 Die extrazelluläre signalregulierte Kinase 1/2 (ERK 1/2) ist an der Hemmung der MMP-Expression durch ITC-Verbindungen beteiligt. Repräsentative autoradiographische Filme von Western-Blotting-Analysen von Lysaten aus Astrozyten, die 1 h mit AITC (400 μM), PEITC (10 μM) oder SFN (25 μM) vorbehandelt und dann 2 h mit LPS (10 ug mL) aktiviert wurden{{ 13}}). Unbehandelte und unstimulierte Zellen stellen eine Negativkontrolle dar (CTRL). Das Histogramm in (b) stellt dar, dass die pERK1/2-Level-Invasion in C6-Gliomzellen mit einer durch NF-κB vermittelten Hemmung der MMP-9-Expression assoziiert war (Lee et al. 2015).
Die molekularen Mechanismen, durch die ITCs MMPs hemmen, sind unklar, und es gibt keine Studien, die die antioxidativen und entzündungshemmenden Eigenschaften von ITCs an primären Astrozytenkulturen untersuchen. Mehrere Studien stützen die Hypothese, dass die hemmende Wirkung von ITCs eine Folge ihrer Fähigkeit ist, NF-κB über den Nrf2-Signalweg zu blockieren. In dieser Hinsicht zeigte eine In-vivo-Studie, dass Nrf2-Knockout-Mäuse anfälliger für eine NF-κB-vermittelte Entzündungsreaktion des Rückenmarks und für die erhöhte Expression von NFκB-abhängigen Genen einschließlich MMP-9 waren (Mao et al. 2010b ). Obwohl NF-κB- und Nrf2-Signalwege zusammenspielen könnten, haben wir gezeigt, dass die Regulation von NF-κB auch durch die Modulation molekularer Mechanismen erfolgt, die von Nrf2 unabhängig sind. Tatsächlich fanden wir heraus, dass AITC, PEITC und SFN die Aktivierung von ERK1/2 hemmten, das eine zentrale Rolle in der Kaskade von Signaltransduktionsereignissen spielt, die letztendlich die Transkription des MMP-Gens regulieren.
Der experimentelle Beweis, dass SFN bei der maximalen nicht-toxischen Konzentration sowohl die MMP-9-Expression als auch die Spiegel vollständig hemmte, während AITC und PEITC die MMP-9-Expression maximal hemmten, aber nur MMP{{3} absenkten }-Spiegel auf etwa 50 Prozent, könnte darauf hindeuten, dass diese Verbindungen die MMP-9-Transkription mit unterschiedlichen Wirkmechanismen modulieren. In diesem Zusammenhang wurde berichtet, dass SFN zusätzlich zur Hemmung der LPS-induzierten Aktivierung von NF-κB die Bindung von LPS an den TLR4-Rezeptor stört (Koo et al. 2013). Die hemmende Wirkung von SFN auf TLR4 könnte die Aktivierung von Astrozyten durch LPS verhindern und dies kann zu einer stromaufwärts gelegenen Hemmung der MMP-9-Expression mit einem daraus resultierenden Mangel an MMP-9-Produktion führen.
erhalten nach densitometrischem Scannen von autoradiographischen Filmen und Normalisierung auf nicht phosphoryliertes ERK 1/2. Die Daten stellen Mittelwerte ± Standardabweichung von n=3 Experimenten dar, die an verschiedenen Zellpopulationen durchgeführt wurden. Sternchen stellen Werte dar, die sich statistisch von der Positivkontrolle (LPS-aktivierte Astrozyten) unterscheiden, die auf 100 Prozent festgelegt wurde (Einweg-ANOVA, gefolgt vom Post-Hoc-Test mit Mehrfachvergleich nach Dunnett; *p <>

Schlussfolgerungen
Zusammenfassend zeigen unsere Daten, dass die Behandlung von Astrozyten mit ITCs die ROS-Bildung reduziert und die Freisetzung von MMP-2 und MMP-9 hemmt, was neue Einblicke in die antioxidativen und entzündungshemmenden Eigenschaften von ITCs auf Glia liefert Zellen. Diese Ergebnisse deuten darauf hin, dass ITCs vielversprechende Nutrazeutika für die Entwicklung von Neuroernährungsinterventionen sein könnten, die auf der Verwendung gesunder Lebensmittel basieren, zur Vorbeugung und ergänzenden Behandlung von neurologischen Erkrankungen.
Finanzierung Open-Access-Finanzierung durch die Università Degli Studi di Bari Aldo Moro im Rahmen des CRUI-CARE-Abkommens.
Einhaltung ethischer Standards
Interessenkonflikt Die Autoren geben keinen Interessenkonflikt an.
Open Access Dieser Artikel ist unter einer Creative Commons Attribution 4.0 International License lizenziert, die die Verwendung, gemeinsame Nutzung, Anpassung, Verbreitung und Reproduktion in jedem Medium oder Format erlaubt, solange Sie den ursprünglichen Autor angemessen erwähnen (s) und die Quelle, stellen Sie einen Link zur Creative Commons-Lizenz bereit und geben Sie an, ob Änderungen vorgenommen wurden. Die Bilder oder andere Materialien von Drittanbietern in diesem Artikel sind in der Creative Commons-Lizenz des Artikels enthalten, sofern nicht anders in einer Quellenangabe für das Material angegeben. Wenn Material nicht in der Creative-Commons-Lizenz des Artikels enthalten ist und Ihre beabsichtigte Nutzung durch gesetzliche Vorschriften nicht gestattet ist oder die zulässige Nutzung überschreitet, müssen Sie die Genehmigung direkt vom Urheberrechtsinhaber einholen. Um eine Kopie dieser Lizenz anzuzeigen, besuchen Sie http://creativecommons.org/licenses/by/4.0/.