Teil 1. Art der erworbenen Immunantworten, Epitopspezifität und daraus resultierender Schutz vor SARS-CoV-2
Apr 17, 2023
Abstrakt
Die weltweit wichtigste Reaktion auf die SARS-CoV-2-Pandemie bestand darin, so schnell wie möglich eine Reihe von Impfstoffen in die Klinik zu bringen, von denen erwartet wird, dass sie die Immunität gegen diese Virusinfektion stärken. Während die schnelle Entwicklung und Erprobung dieser Impfstoffe (zumindest im Hinblick auf kurzfristige Wirksamkeit und Sicherheit) lobenswert ist, sollte anerkannt werden, dass dies trotz des Mangels an Forschung und Verständnis der wichtigen Immunelemente der natürlichen Wirtsresistenz gegen stattgefunden hat das Virus, was diesen Versuch in der Geschichte der Medizin einzigartig macht. Umgekehrt gab es, wie die folgende Übersicht zeigt, in der Vergangenheit wichtige Beobachtungen, die darauf hindeuten, dass Atemwegsinfektionen auf Schleimhautoberflächen anfällig für Immun-Clearance-Mechanismen sind, die für Infektionen durch systemische (durch Blut übertragene) Krankheitserreger nicht typisch sind. Daher kann es wichtig sein, die Rolle der angeborenen und erworbenen Immunität als Reaktion auf Virusinfektionen und die optimalen erworbenen Immunresistenzmechanismen (B-Zellen- oder Antikörper-vermittelt im Vergleich zu T-Zellen-vermittelt) für die Virusclearance zu verstehen. Diese Informationen werden benötigt, um die Impfstoffentwicklung zu steuern und den Impferfolg zu überwachen. Wir wissen bereits, dass viele Krankheitserreger eine quasi-symbiotische Beziehung mit ihren Wirten eingehen, wobei jeder Krankheitserreger als Reaktion auf Veränderungen in seiner Anwesenheit durch einen anderen Krankheitserreger sukzessive Veränderungen durchläuft. Die anschließende Entwicklung viraler Varianten im Zuge der Entwicklung der Wirtsimmunität in den letzten 3-6 Monaten ist eine völlig vorhersehbare Reaktion, die weitreichende Besorgnis erregt hat. Unklar ist, ob der Einsatz neuartiger Impfstoffe beim Menschen weitere, noch nicht identifizierte, unbeabsichtigte Nebenwirkungen hervorruft und wenn ja, wie und ob diese Nebenwirkungen vermieden werden können. Abschließend stellen wir fest, dass es eine schlechte Praxis ist, aus Zweckmäßigkeitsgründen eine große Anzahl gut dokumentierter immunologischer Studien zu ignorieren.
Schlüsselwörter
SARS-CoV-2; Wirtsresistenz; angeborene Immunität; erworbene Immunität; Schleimhautimmunität; Impfung;Cistanche-Vorteile.

Klicken Sie hier, um zu kaufenCistanche-Ergänzungsmittel
Einführung
In den letzten 18 Monaten hat die Welt unter den verheerenden Auswirkungen einer Pandemie gelitten, die Ende 2019 durch eine Coronavirus-Infektion mit Ursprung in Wuhan, China, verursacht wurde Das sozioökonomische und medizinische Dilemma bestand darin, schnell ein universelles Impfprogramm zu entwickeln und umzusetzen. Im Gegensatz zu früheren Präzedenzfällen geschieht dies jedoch vor dem Hintergrund eines relativen Mangels an detaillierten Kenntnissen und Untersuchungen über die natürliche Natur der Wirtsresistenz gegen den betreffenden Krankheitserreger und vor dem Hintergrund einer „beschleunigten“ Entwicklung neuer Impfstoffe klinische Anwendung, wiederum in Ermangelung detaillierter Kenntnisse über die wahrscheinlichen kurz- und langfristigen Auswirkungen einer solchen Impfstoffverabreichung. Derselbe Mangel an detaillierten Kenntnissen über die wahrscheinlichen kurz- und langfristigen Auswirkungen einer solchen Impfstoffverabreichung. In einer aktuellen Übersicht wurde der (damals) aktuelle Stand des Verständnisses der SARS-CoV-2-Impfung und die möglichen Auswirkungen auf künftige Schutzimpfungsansätze diskutiert. Eine in dieser Überprüfung geäußerte Sorge bestand darin, dass zu wenig Aufwand in das Verständnis der Art der Immunantwort investiert wurde, die einen optimalen Immunschutz bieten könnte. Im Folgenden finden Sie eine Analyse der Fortschritte, die zur Verbesserung dieses Verständnisses erzielt wurden, und wie und ob diese Fortschritte die globale Reaktion auf die SARS-COV-- 2-Pandemie beeinflusst haben und sie möglicherweise weiter beeinflussen.
Die Immunität von Säugetieren hat sowohl angeborene als auch adaptive Aspekte. Die angeborene Immunität ist der einzige Immunmechanismus, der sich bei 95 Prozent der Arten auf der Erde schnell (1-2 Tage) entwickelt, und einige Hinweise deuten auch darauf hin, dass das Immungedächtnis „Training den Schutz vor einer erneuten Infektion (mit demselben Krankheitserreger) erhöht und sogar die Immunität stärkt.“ gegen neuartige Krankheitserreger. Diese neue Idee deutet auf eine engere Verbindung zur adaptiven Immunität hin, von der lange angenommen wurde, dass sie das einzige Immunsystem ist, das Gedächtnis zeigt.
Abbildung 1 zeigt den kausalen Zusammenhang zwischen der mutagenen Aktivität der Desaminase, der SARS-COV-2-Infektion, der Rolle des Interferon-stimulierten Gens (ISG)-Signalwegs, der angeborenen und adaptiven Immunantwort des Wirts und der anschließenden möglichen Akkumulation von Kollateralzellen Schaden. Die angeborene Immunität mit Desaminasen zielt darauf ab, Krankheitserreger durch MUL zu unterdrücken. Mehrere, meist nicht genetische Wege. Das genetische Targeting des SARs-Cov-2-RNA-Genoms durch Desaminasen, d. h. durch angeborene Immunität induzierte Mutationen im Pathogengenom, beeinflusst dessen Replikationseffekt. Die Desaminasen APOBEC3B und APOBEC3Gin werden seit 20 Jahren untersucht und werden heute allgemein als „Virusbrecher“ bezeichnet, da sie über gut charakterisierte Mechanismen verfügen, um die Wirksamkeit und Funktion von Viren zu beeinflussen. Dies ist die erste Linie der angeborenen Immunabwehr, um das SARS-CoV-2-Virus zu unterdrücken oder zu eliminieren. Während des ISG-induzierten Desaminase-Angriffs auf fremde Krankheitserreger können sich auch einige unkorrigierte De-novo-Mutationen in der transkribierten Nicht-G-Gen-DNA ansammeln und zu weiteren Zellschäden in infizierten Geweben führen.
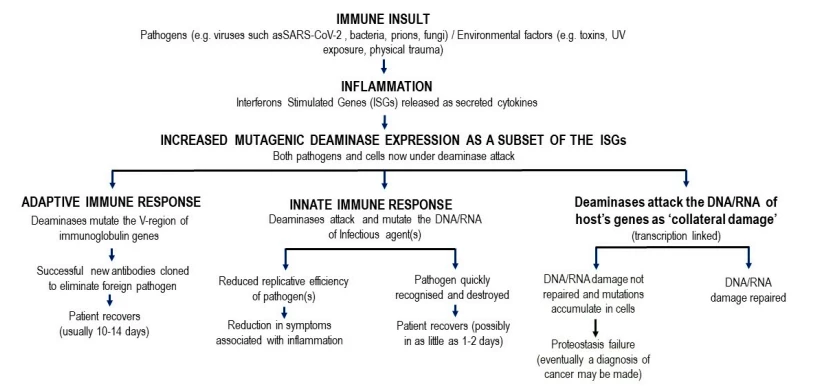
Abbildung 1. Ein Modell, das nachgeschaltete angeborene und adaptive Immunveränderungen nach einem Krankheitserregerbefall verknüpft.
Zu den Mechanismen, die am Training des angeborenen Immunsystems beteiligt sind, gehören möglicherweise epigenetische Veränderungen (veränderte DNA-Methylierung; Histon-Deacetylase-Aktivität), die zu einer schnelleren Aktivierung von Genen führen, die mit der Reaktion auf Krankheitserreger verbunden sind. Epigenetische chemische Veränderungen in Genteilen stellen einen Teil oder alle genetischen Regionen dar, die während der Transkription Ziel einer Desaminierung sein können. Umgekehrt ist es plausibel, dass diejenigen Regionen konserviert werden, die chemisch vor Desaminierung geschützt sind und in denen die DNA-Treue aufrechterhalten werden muss, um das biologische Überleben und die normale Funktion aufrechtzuerhalten. In einer wegweisenden Studie von Guo et al. wurde festgestellt, dass das TET1-Gen und die onkogene Adenosin-Desaminase APOBEC1 aktiv an DNA-Methylierungsänderungen beteiligt sind, die durch regionsspezifische neuronale Aktivität induziert werden. Das Konzept des Trainings der angeborenen Immunantwort kann in gewissem Maße dazu beitragen, die geringere Säuglingssterblichkeit und sogar die Sterblichkeit von Erwachsenen in derselben Bevölkerungsgruppe zu erklären, die mit BCG geimpft wurde (BCG gemischt mit Adjuvans ist ein ausgezeichneter Auslöser der angeborenen Immunantwort) als bei nicht geimpften Personen -BCG-geimpfte Bevölkerung. Bei der Impfstoffentwicklung war das BCG-vermittelte Training des angeborenen Immunsystems das Grundprinzip der ACTIVATE-Studie an älteren Freiwilligen, die darauf abzielte, den Beitrag von BCG zur Verringerung der Anfälligkeit für bakterielle Erkrankungen und neuerdings auch für SARS-CoV zu bewerten.-2 Infektion.
Angeborene und erworbene Immundefizite treten besonders bei älteren Menschen auf. Die angeborene Immunität steuert die Virusreplikation bei infizierten gesunden Probanden schnell durch eine durch Interferon Typ I und Typ III induzierte antivirale Immunität. Ältere Patienten, denen diese schnelle angeborene Reaktion fehlt, haben ein sehr hohes Risiko für schwerwiegende Folgen nach einer SARS-CoV-2-Infektion, einschließlich erhöhter Morbidität und Mortalität. Typ-1- und Typ-III-Interferon-induzierbare Gene umfassen APOBEC- und ADAR-induzierbare Expression, wie in Abbildung 1 und anderswo beschrieben, und sie können wiederum in SARS-COV-2-exprimierenden Genen des „Haplotypwechsels“ exprimiert werden Dies führt wiederum zu einer Diversifizierung der viralen Vererbungsmuster, wie sie bei manchen Probanden, insbesondere aber bei Menschen mit eingeschränkter angeborener Immunität, zu beobachten ist (siehe unten).
Die adaptive (erworbene) durch T- und B-Lymphozyten vermittelte Immunität ist zwar sicherlich in erster Linie für das Immungedächtnis verantwortlich, wird jedoch erst etwa 10-14 Tage nach der Exposition gegenüber dem Krankheitserreger aktiv, weist jedoch typischerweise eine größere Vielfalt bei der Erkennung von Krankheitserregern auf als die angeborene Immunität. Angesichts der Erfahrung im Verständnis, wie erworbene Immunmechanismen durch gezielte Impfung zur Verbesserung der Krankheitserregerresistenz genutzt werden können, und der daraus resultierenden zahlreichen Erfolge bei der weltweiten Krankheitsbekämpfung ist es nicht verwunderlich, dass diese Strategie in der Vergangenheit als Schlüsselstrategie eingesetzt wurde 12-18 Monate Bemühungen zur Bewältigung der aktuellen Pandemie. In der folgenden Diskussion wird erläutert, was wir über die Bedeutung der Antikörper- (B-Zell-vermittelten) und T-Effekt-Immunität für die Bereitstellung von Schutz nach einer natürlichen Infektion oder Impfung gelernt haben und wie Krankheitserreger wiederum auf natürlich erworbene oder durch die Impfung induzierte Erhöhungen der Wirtsresistenz reagieren . Darüber hinaus wird ein kurzer Überblick über einige der unerwarteten Nebenwirkungen gegeben, die bei derzeit „funktionierenden“ Impfstoffen festgestellt wurden, und wie diese die zukünftige Ausrichtung der Vakzinologie beeinflussen könnten.

Die Wirkung von Cistanche auf die Verbesserung der Immunität
1. Heterogenität bei SARS-CoV-2-Antikörperreaktionen und SARS-CoV-2-Schutz
Frühe Studien zum Viruseintritt in die Zellen infizierter Personen zeigten, dass der Viruseintritt von der rezeptorbindenden Strukturdomäne (RBD) des Spike-Proteins (S) von SARS-CoV-2 abhängt. Daher haben sich viele Studien an natürlich infizierten und sogar geimpften Personen auf die Epitope (verschiedene einzigartige Antigenkonfigurationen) des RBD konzentriert, die von Antikörpern erkannt werden (siehe unten, T-Zellen). Trotz niedrigerer virusneutralisierender Titer nach natürlicher Infektion und Genesung wurde bei genesenen Personen eine Gemeinsamkeit der Ig-Reaktionen auf verschiedene RBD-Strukturdomänen in S-Proteinen festgestellt. Bemerkenswerterweise zeigten unabhängige Analysen von natürlich infizierten COVID-Probanden eine sehr schwache Korrelation zwischen Antikörpertitern und neutralisierender Aktivität in Seren, die in kommerziellen klinischen Labors gemessen wurden. Dies ist möglicherweise nicht überraschend, da in einer unabhängigen Studie verschiedene B-Zell-Untergruppen untersucht wurden, die nach einer SARS-CoV-2-Infektion Antigen-spezifische Ig-Reaktionen hervorrufen. Diese Gruppe berichtete, dass B-Zellen in diskrete funktionelle Subpopulationen aufgeteilt werden könnten, die spezifisch für Spike-in- (S), Nukleokapsid- (NP) und Open-Reading-Frame-Proteine (ORF) sind (konsistent benannt: 7a und 8), aber nur S-spezifisches B Zellen wurden in Gedächtnis-B-Zellclustern angereichert und monoklonale Antikörper (mAbs) aus diesen Zellen wurden effizient neutralisiert. Im Gegensatz dazu wurden ORF8- und NP-spezifische B-Zellen in naiven und angeborenen Clustern angereichert und monoklonale Antikörper gegen diese Ziele wurden nicht neutralisiert. Auch hier wurde die Serum-Ig-Bindung an die viralen Antigen- und Antikörperplattformen von 15 SARS-CoV-2-positiven und 30 negativen Kontrollen untersucht und dann auf Virusneutralisierung beurteilt, wobei S-IgG3 Berichten zufolge die höchste Genauigkeit bei der Virusvorhersage lieferte neutralisierende Aktivität bei serologisch positiven Personen.
Aktuelle Analysen der Epitopbindung haben die Komplexität der Analyse von Ig-Reaktionen auf das RBD zur Beurteilung der Schutzwirkung hervorgehoben. 38 RBD-bindende neutralisierende Antikörper mit bekannten Strukturen, die größtenteils aus virusinfizierten Patienten isoliert wurden, wurden in fünf allgemeine Cluster gruppiert, die wiederum verschiedene nicht neutralisierende Oberflächen auf dem RBD erfassen konnten. Diese neutralisierenden Antikörper können höchstens gleichzeitig an das RBD binden, was wichtige Auswirkungen auf die Impfstoffentwicklung hat. Diese klinischen Analysen unterstreichen die Bedeutung der Reaktion auf die RBD im S-Protein für den Schutz, was wiederum durch unabhängige Daten aus Tiermodellstudien gestützt wird. Nach einem hochdosierten SARS-CoV-2-Angriff bei syrischen Hamstern sorgte die passive Übertragung starker neutralisierender Antikörper (nAbs) auf zwei Epitope auf der RBD der S-Protein-Rezeptor-Bindungsdomäne für Schutz vor Krankheiten durch Aufrechterhaltung des Körpergewichts und Überwachung niedriger Lungenvirustiter. Darüber hinaus produzierte die Immunisierung von Mäusen mit rekombinantem Pockenvirus, das ein modifiziertes SARS-CoV-2- s-Protein exprimiert (das von Anti-rbd-Ig und dem löslichen menschlichen ACE2-Rezeptor auf virusinfizierten Zellen erkannt wird), neutralisierendes Ig, das transgene Menschen passiv schützte ACE2-Mäuse durch eine tödliche SARS-CoV-2-Infektion. Transgene Mäuse, die mit Kuhpockenvektoren immunisiert wurden, die vor der Infektion mit dem Neo-Coronavirus inokuliert worden waren, zeigten nach einer intranasalen Infektion mit dem Neo-Coronavirus weder nach 3 noch nach 7 Wochen Morbidität oder Gewichtsverlust. Darüber hinaus wurde in der Lunge keine infektiöse SARS-CoV-2- oder subgenomische virale mRNA nachgewiesen. Darüber hinaus wurde berichtet, dass die Induktion von Zytokinen und Chemokin-mRNA stark reduziert war und am zweiten Tag (und danach keine) in den Nasenmuscheln von 1/8 rMVA-geimpften Mäusen geringe Virusmengen gefunden wurden.
Trotz dieser Daten sollte anerkannt werden, dass eine SARS-CoV-2-Infektion bei Kindern nicht das gleiche klinische Erscheinungsbild aufweist und nach der Infektion nicht die gleiche Immunantwort hervorruft. Kinder bleiben von schweren Atemwegserkrankungen weitgehend verschont, können jedoch ein multisystemisches Entzündungssyndrom ähnlich der Kawasaki-Krankheit entwickeln. Die Diversität und Spezifität der SARS-CoV-2-spezifischen Igs sind bei Kindern im Vergleich zu Erwachsenen geringer, und sowohl Kinder als auch Erwachsene produzieren IgG-, IgM- und IgA-Abs gegen S-Proteine, aber nur Erwachsene zeigen signifikante Reaktionen auf Kernkapsid ( N) Proteine. Kinder zeigten im Vergleich zur Kohorte der mit SARS-CoV-2-infizierten Erwachsenen eine deutlich geringere neutralisierende Aktivität. Zur relativen Reaktion der beiden Kohorten auf die Impfung liegen keine Daten vor.

Standardisierte Cistanche
2. Die Rolle der Schleimhautimmunität beim Schutz vor SARS-CoV-2
Seit vielen Jahren ist bekannt, dass die lokal sekretorische IgA-Reaktion die beste Form der schützenden Immunität gegen Krankheitserreger darstellt, die über die Nase oder den Mund eindringen. Aktuelle Analysen der SARS-CoV-2-Reinfektion und -Übertragung bei geimpften Personen und Studien zur Bewertung der Influenza- und SARS-CoV-2-Impfung stimmen mit diesem Konzept überein. Froberg et al. berichteten, dass bei natürlichen Infektionen ohne Serumantikörperreaktion mukosale IgA-Reaktionen festgestellt wurden, wobei in diesem Fall die mukosalen Antikörperspiegel stark mit der Virusneutralisierung korrelierten. Angesichts der aktuellen Konzentration auf die SARS-CoV-2-Impfung als primäres Mittel zur Bewältigung der klinischen Folgen der aktuellen Pandemie ist es besorgniserregend, dass der impfstoffinduzierten Schleimhautimmunität so wenig Aufmerksamkeit geschenkt wird. Dies könnte zumindest teilweise die im CDC-Update vom 20. April 2021 zur Impfstoffwirksamkeit gemeldeten Beobachtungen erklären, die einen geringen Schutz vor Infektionen zeigten, obwohl die Schwere der Erkrankung bei infizierten geimpften Personen deutlich abgeschwächt war. Smith et al. berichteten, dass die systemische und mukosale Immunität nach einer SARS-CoV-2-Infektion eine wichtige Dichotomie zwischen systemischer und mukosaler Immunität mit wichtigen Implikationen für die Behandlung und pathologische Interpretation darstellt. aktuelle unabhängige Studien von Lopez et al. und Cheemarla et al. haben gezeigt, dass die Versorgung mit antiviralem Interferon es nasopharyngealen Schleimhautepithelzellen ermöglicht, das Wachstum von SARS-CoV-2 zu hemmen, und dass Interferon-induzierte Schleimhautgene somit als Biomarker für Infektionen dienen (siehe oben und unten im Abschnitt über angeborene Immunität). ).
Eine weitere Studie maß die humorale Reaktion auf SARS-CoV-2 und umfasste die Analyse spezifischer neutralisierender Antikörper im Serum, Speichel und der bronchoalveolären Flüssigkeit von 159 Patienten, die auf natürliche Weise mit SARS-CoV-2 infiziert waren. Auch hier wurden die frühen virusspezifischen humoralen Reaktionen von IgA-Antikörpern dominiert und erreichten ihren Höhepunkt in der dritten Woche nach der Infektion, wobei IgA stärker zur Virusneutralisierung beitrug als IgG- oder IgM-Antikörper. Obwohl die antiviralen IgA-Serumkonzentrationen nach einem Monat abnahmen, blieb IgA bis zu 10 Wochen lang im Speichel nachweisbar. Zu derselben Schlussfolgerung kamen unabhängig voneinander Butler et al. die erkannten, dass die Neutralisierung des Serums und die Effektorfunktion mit dem Ausmaß der systemischen SARS-CoV-2--spezifischen IgG-Reaktion verbunden waren, wohingegen die Neutralisierung der Schleimhaut mit nasalem SARS-CoV-2--IgA und einer weniger schweren Erkrankung verbunden war. Eine aktuelle Studie untersuchte die Art der Schleimhautimmunität, die durch zwei unabhängige US-mRNA-Impfstoffe (BNT162b2 von Pfizer/BioNTech und mRNA von Moderna) induziert wird. Beide Impfstoffe induzierten Antikörper gegen das SARS-CoV-2-Protein, einschließlich neutralisierender Antikörper (nAbs) gegen RBD, wobei nach der zweiten Impfung ein deutlicher Anstieg der Titer beobachtet wurde. In ähnlicher Weise wurden S-Protein- und RBD-Antikörper in Speichelproben von mit mRNA geimpftem Gesundheitspersonal festgestellt, wobei 100 Prozent der mit beiden Impfstoffen geimpften Probanden IgG im Speichel und 50 Prozent IgA im Speichel aufwiesen.
Es liegen begrenzte Studien zur impfstoffinduzierten Schleimhautimmunität bei Tieren vor. Es wurde ein Schimpansen-Adenovirus-Vektorimpfstoff untersucht, der ein vorfusioniertes stabiles Spike-in-Protein (ChAd-SARS-CoV-2-S) kodiert und Mäusen, die die menschlichen Angiotensin-Converting-Enzym-2-Rezeptoren exprimieren, intramuskulär verabreicht wurde, um SARS- zu verhindern. CoV-2-Infektion. Eine Einzeldosis induzierte systemische humorale und zellvermittelte Immunantworten und schützte Mäuse vor Lungeninfektionen, Entzündungen und Pathologien, ohne eine sterile Immunität auszulösen, wie durch virale RNA-Assays nach einer SARS-CoV-2-Infektion bestätigt wurde. Im Gegensatz dazu induzierte eine einzelne intranasale Dosis desselben Impfstoffs hohe Konzentrationen neutralisierender Antikörper, verstärkte systemische und mukosale IgA- und T-Zell-Reaktionen und verhinderte eine SARS-CoV-2-Infektion in den oberen und unteren Atemwegen. In einer Studie an Makaken wurden Tiere, die sowohl eine inotrope Impfung als auch eine Auffrischung erhielten, mit Tieren verglichen, die eine inotrope Impfung, aber eine intranasale Auffrischung erhielten. Der verwendete Impfstoff war der SARS-CoV-2 S-Protein-Adjuvans-Impfstoff. Die Impfung induzierte nur gebundene und neutralisierende Antikörper mit einem anhaltenden zellulären Immunsystem und Schleimhaut, wohingegen die Verwendung einer intranasalen Boosting-Strategie zu schwächeren T-Zell- und IgG-Antworten, aber höherem dimeren IgA und IFN führte. Im Vergleich zu den ursprünglichen Kontrollen wurde nach der SARS-CoV-2-Exposition in den oberen oder unteren Atemwegen beider Tiergruppen keine subgenomische RNA nachgewiesen, was wiederum die Wirksamkeit der Schleimhautimmunisierungsstrategie unterstützt.
Studien an Kindern haben außerdem die Bedeutung der Schleimhautimmunität (und ihrer Induktion) und die ineffektive Immunität gegen eine SARS-CoV-2-Infektion gezeigt. Im Gegensatz zu den Krankheitsmanifestationen anderer Atemwegsviren, die bei Kindern tendenziell schwerwiegender sind, verläuft die SARS-CoV-2-Infektion bei Kindern in der Regel harmloser. Pierce et al. fanden heraus, dass die SARS-CoV-2-Kopienzahl, ACE 2 und die TMPRSS2-Genexpression bei Kindern und Erwachsenen ähnlich waren, dass infizierte Kinder jedoch eine erhöhte Expression von Molekülen aufwiesen, die den angeborenen Immunweg stimulieren (IFN-Signalisierung, NLRP3-Entzündungsvesikel usw.). Expression anderer angeborener Signalweg-bezogener Gene). Die Proteinspiegel von IFN- 2, IFN-, IP-10, IL-8 und IL-1 waren in der Nasenflüssigkeit von Kindern höher als bei Erwachsenen, und SARS-CoV{{17 }}Die spezifischen IgA- und IgG-Spiegel waren in beiden Gruppen ähnlich. Der Krankheitsverlauf nach der Infektion war bei allen Kindern deutlich glimpflicher als in der Erwachsenenkohorte. Angesichts der Bedeutung von sekretorischem dimerem IgA (sIgA) für den Schutz von Schleimhautoberflächen vor Krankheitserregern und der Beweise (siehe oben), die auf die Bedeutung von mukosalem sIgA für die Immunität gegen SARS-CoV schließen lassen-2, wurde durch einen Bericht von Quinti weiteres Interesse geweckt et al. Dies zeigt einen (genetischen) Mangel an SARS-CoV-2-spezifischem IgA und sekretorischem IgA [49] bei Personen mit erhöhter Anfälligkeit und heftigerem Krankheitsverlauf. Wie sie betonten, handelt es sich beim selektiven IgA-Mangel im Gegensatz zu anderen primären Antikörperdefiziten normalerweise um eine „stille“, unerkannte Krankheit, kann aber eine (unerforschte) wichtige Ursache für Variationen bei der Reaktion auf eine SARS-CoV-2-Infektion sein. Colleen und Kollegen zeigten auch eine erhöhte Anfälligkeit für SARS-CoV-2 bei Patienten mit IgA-Mangel.

Cistanche-Extrakt
3. T-Zell-Immunität gegen SARS-CoV-2
Es ist seit einiger Zeit bekannt, dass aktivierte T-Lymphozyten für den Schutz der Immunität gegen Virusinfektionen von entscheidender Bedeutung sind. Dies steht im Einklang mit dem, was wir über die völlig unterschiedliche Antigenerkennung durch B-Zellen und T-Zellen wissen. Letztere erkennen MHC-präsentierende Epitope auf der Zelloberfläche, die bei einer Virusinfektion verändert werden, und können daher potenzielle „Virusfabriken“ zerstören, bevor die Replikation lebender Viren in infizierten Zellen abgeschlossen ist. Obwohl die Überwachung von (Serum-)Ig die Entwicklung der Immunantwort auf einen Krankheitserreger leichter beurteilen kann, wie oben erwähnt, liefert sie möglicherweise nur wenige Informationen über die Entwicklung einer schützenden Immunität im infizierten Wirt. Dieses Problem wird in einer aktuellen Rezension ausführlicher erörtert. Die Korrelation zwischen Antikörperreaktion und Krankheit ist gering, insbesondere bei leichten Infektionen, und stärkere Reaktionen spiegeln normalerweise eine schwerere klinische Erkrankung wider. Im Gegensatz dazu hält die viral-reaktive T-Zell-Immunität länger an und eine natürliche Infektion mit SARS-CoV-2 induziert eine umfassende Epitopabdeckung durch CD4- und CD8-T-Zellen. Die S-Protein-Immunität ist im Vergleich zu Ig-Reaktionen weniger eingeschränkt, die Relevanz für den Krankheitsverlauf muss jedoch noch ermittelt werden. Die Korrelation klinischer Ergebnisse mit Labormarkern der zellvermittelten Immunität, nicht nur mit Antikörperreaktionen, könnte darüber hinaus Aufschluss darüber geben, wie die Induktion einer schützenden Immunität nach einer natürlichen Infektion und Impfung optimiert werden kann. Kürzlich wurde ein vorläufiger Bericht über solche Untersuchungen an Probanden im Alter von 18-55 Jahren bis zu 8 Wochen nach einer Einzeldosis des ChAdOx1 nCoV-19-Impfstoffs veröffentlicht. Die CD4-T-Zell-Reaktionen waren durch die Sekretion von Interferon- und Tumornekrosefaktor-Zytokinen gekennzeichnet, wobei IgG1- und IgG3-Antikörper vorherrschten. Einige CD8-plus-T-Zellen wurden auch zu monofunktionellen, multifunktionalen und zytotoxischen Phänotypen induziert, wobei bisher nur eine geringe klinische Bedeutung dokumentiert wurde. Kürzlich wurde auch über eine detailliertere Studie zur CD8-T-Zell-Immunität nach der natürlichen Infektion berichtet. Bei der Ausrichtung auf strukturelle und nichtstrukturelle Ziele im SARS-CoV-2-Proteom wurden in zahlreichen CD8-Plus-Epitopen und mehreren (6)HLAs äußerst heterogene Reaktionen gefunden, wobei bis zu 52 eindeutige Epitope dokumentiert wurden, obwohl sie für die Ergebnisse nicht relevant waren muss noch bestätigt werden.
Zhuang und seine Kollegen untersuchten Tiere, um ein tieferes Verständnis der T-Zell-Resistenzmechanismen zu erlangen. Ihre Daten legen nahe, dass der Typ-I-Interferon-Weg entscheidend für die Erzeugung einer optimalen antiviralen T-Zell-Reaktion nach einer SARS-CoV-2-Infektion bei Mäusen ist und dass eine T-Zell-Impfung infizierte Tiere sogar teilweise vor schweren Erkrankungen schützen kann.
Verweise
1. Gorczynski, RM Personalisierung der Impfung gegen Infektionskrankheiten im 21. Jahrhundert. J. Impfstoffe Impfstoff. 2020, S5, 5.
2. Netea, MG Training der angeborenen Immunität: Das sich verändernde Konzept des immunologischen Gedächtnisses in der angeborenen Wirtsabwehr. EUR. J. Clin. Investig. 2013, 43, 881–884.
3. Samuel, CE Adenosin-Desaminasen, die auf RNA wirken (ADARs), sind sowohl antiviral als auch proviral. Virology 2011, 411, 180–193.
4. Vartanian, J.-P.; Henry, M.; Marchio, A.; Suspène, R.; Aynaud, M.-M.; Guétard, D.; Cervantes-Gonzalez, M.; Battiston, C.; Mazzaferro, VM; Pineau, P.; et al. Massive APOBEC3-Bearbeitung der Hepatitis-B-Virus-DNA bei Leberzirrhose. PLoS Pathog. 2010, 6, e1000928.
5. Lindley, RA Ein Überblick über die Mutationsrolle von Desaminasen und die Erstellung eines zugehörigen molekularen Modells zur Erklärung von Krebsmutationsspektren. Med. Res. Bogen. 2020, 8, 8.
6. Kunst, RJW; Moorlag, SJCFM; Novakovic, B.; Li, Y.; Wang, SY; Oosting, M.; Kumar, V.; Xavier, RJ; Wijmenga, C.; Joosten, LABOR; et al. Die BCG-Impfung schützt vor experimentellen Virusinfektionen beim Menschen durch die Induktion von Zytokinen, die mit einer trainierten Immunität verbunden sind. Cell Host Microbe 2018, 23, 89–100.
7. Guo, JU; Su, Y.; Zhong, C.; Ming, G.-L.; Song, H. Hydroxylierung von 5-Methylcytosin durch TET1 fördert die aktive DNA-Demethylierung im erwachsenen Gehirn. Zelle 2011, 145, 423–434.
8. Scourzic, L.; Mouly, E.; Bernard, OA TET-Proteine und die Kontrolle der Cytosin-Demethylierung bei Krebs. Genommed. 2015, 7, 9.
9. Rieckmann, A.; Villumsen, M.; Sørup, S.; Haugaard, LK; Ravn, H.; Roth, A.; Baker, JL; Benn, CS; Aaby, P. Impfungen gegen Pocken und Tuberkulose sind mit einem besseren Langzeitüberleben verbunden: Eine dänische Fallkohortenstudie 1971–2010. Int. J. Epidemiol. 2016, 46, 695–705.
10. Covián, C.; Fernández-Fierro, A.; Retamal-Díaz, A.; Díaz, FE; Vasquez, A.; Lay, MK; Riedel, C.; Gonzalez, PA; Bueno, SM; Kalergis, AM BCG-induzierter Kreuzschutz und Entwicklung einer trainierten Immunität: Implikationen für das Impfstoffdesign. Vorderseite. Immunol. 2019, 10, 2806.
11. Impfung gegen Bacillus Calmette-guérin zur Vorbeugung von Infektionen bei älteren Menschen (AKTIVIEREN).
12. BCG-Impfstoff für Beschäftigte im Gesundheitswesen zur Abwehr von COVID-19 (BADAS).
13. Acharya, D.; Liu, G.-Q.; Gack, MU Dysregulation von Typ-I-Interferon-Reaktionen bei SARS-CoV-2. Nat. Rev. Immunol. 2020, 20, 397–398.
14. Blanco-Melo, D.; Nilsson-Payant, BE; Liu, W.-C.; Uhl, S.; Hoagland, D.; Møller, R.; Jordan, TX; Oishi, K.; Panis, M.; Sachs, D.; et al. Unausgewogene Wirtsreaktion auf SARS-CoV-2 treibt die Entwicklung von COVID voran-19. Zelle 2020, 181, 1036–1045.e9.
15. Hadjadj, J.; Yatim, N.; Barnabei, L.; Corneau, A.; Boussier, J.; Smith, N.; Péré, H.; Charbit, B.; Bondet, V.; Chenevier-Gobeaux, C.; et al. Beeinträchtigte Typ-I-Interferonaktivität und verstärkte Entzündungsreaktionen bei Patienten mit schwerem Covid{2}}. Wissenschaft 2020, 369, 718–724.
16. Netea, MG; Giamarellos-Bourboulis, EJ; Domınguez-Andrés, J.; Curtis, N.; van Crevel, R.; van de Veerdonk, FL; Bonten, M. Trained Immunity: Ein Instrument zur Reduzierung der Anfälligkeit und der Schwere einer SARS-CoV-2-Infektion. Zelle 2020, 181, 969–977.
17. Zhang, Q.; Bastard, P.; Liu, Z.; Le Pen, J.; Moncada-Velez, M.; Chen, J.; Ogishi, M.; Sabli, IKD; Hodeib, S.; Korol, C.; et al. Angeborene Fehler der Typ-I-IFN-Immunität bei Patienten mit lebensbedrohlichem SARS-CoV-2. Wissenschaft 2020, 370.
18. Moderbacher, CR; Ramirez, SI; Dan, JM; Dan, JM; Grifoni, A.; Hastie, KM; Weiskopf, D.; Belanger, S.; Abbott, RK; Kim, C.; et al. Antigenspezifische adaptive Immunität gegen SARS-CoV-2 bei akutem COVID-19 und Zusammenhänge mit Alter und Krankheitsschwere. Zelle 2020, 183, 996–1012.
19. Sette, A.; Crotty, S. Adaptive Immunität gegen SARS-CoV-2. Zelle 2012, 184, 1–20.
20. Lucas, C.; Wong, P.; Klein, J.; Castro, TBR; Silva, J.; Sundaram, M.; Ellingson, MK; Mao, T.; Oh, JE; Israelow, B.; et al. Längsschnittanalysen zeigen immunologische Fehlfunktionen bei schwerem SARS-CoV-2. Natur 2020, 584, 463–469.
21. Hansen, CH; Michlmayr, D.; Gubbels, SM; Mølbak, K.; Ethelberg, S. Bewertung des Schutzes vor einer erneuten Infektion mit SARS CoV-2 bei 4 Millionen PCR-getesteten Personen in Dänemark im Jahr 2020: Eine Beobachtungsstudie auf Bevölkerungsebene. Lancet 2021, 397, 1204–1212.
22. Steele, EJ; Lindley, RA Analyse von APOBEC- und ADAR-Deaminase-gesteuerten Riboswitch-Haplotypen in SARS-CoV-2-RNA-Stammvarianten und die Auswirkungen auf das Impfstoffdesign. Res. Rep. 2020, 4, e1–e146.
23. Tan, CW; Chia, WN; Qin, X.; Liu, P.; Chen, MI; Tiu, C.; Hu, Z.; Chen, VCW; Jung, BE; Sia, WR; et al. Ein SARS-CoV-2-Ersatzvirus-Neutralisationstest, der auf einer Antikörper-vermittelten Blockierung der ACE2--Spike-Protein-Protein-Interaktion basiert. Nat. Biotechnologie. 2020, 38, 1073–1078.
24. Robbiani, DF; Gaebler, C.; Mücksch, F.; Lorenzi, JCC; Wang, Z.; Cho, A.; Agudelo, M.; Barnes, CO; Gazumyan, A.; Finkin, S.; et al. Konvergente Antikörperreaktionen auf SARS-CoV-2 bei rekonvaleszenten Personen. Natur 2020, 584, 437–442.
25. Arashkia, A.; Jalilvand, S.; Mohajel, N.; Afchangi, A.; Azadmanesh, K.; Salehi-Vaziri, M.; Fazlalipour, M.; Pouriayevali, MH; Jalali, T.; Nasab, SDM; et al. Impfstoffkandidaten auf der Basis von Spike (S)-Proteinen gegen das schwere akute respiratorische Syndrom-Coronavirus-2: Stand der Technik und Zukunftsaussichten. Rev. Med. Virol. 2020, 31, e2183.
26. Criscuolo, E.; Diotti, RA; Strollo, M.; Rolla, S.; Ambrosia.; Locatelli, M.; Burioni, R.; Mancini, N.; Clementi, M.; Clementi, N. Schwache Korrelation zwischen Antikörpertitern und neutralisierender Aktivität in Seren von SARS-CoV-2-infizierten Probanden. J. Med. Virol. 2021, 93, 2160–2167.
27. Wilson, P.; Stamper, C.; Dugan, H.; Kleine.; Asby, N.; Halfmann, P.; Zheng, N.-Y.; Huang, M.; Stovicek, O.; Wang, J.; et al. Bestimmte B-Zell-Untergruppen führen zu Antigen-spezifischen Antikörperreaktionen gegen SARS-CoV-2. Res. Quadrat. 2020. Vordruck.
28. Rathe, JA; Hemann, EA; Eggenberger, J.; Li, Z.; Knoll, ML; Stokes, C.; Hsiang, T.-Y.; Netland, J.; Takehara, KK; Pfeffer, M.; et al. Serologische SARS-CoV-2-Tests in Kontrollpopulationen und unbekannten Populationen belegen die Notwendigkeit von Virusneutralisationstests. J. Infizieren. Dis. 2021, 223, 1120–1131.
29. Niu, L.; Wittrock, KN; Clabaugh, GC; Srivastava, V.; Cho, MW Eine strukturelle Landschaft neutralisierender Antikörper gegen die SARS-CoV-2-Rezeptorbindungsdomäne. Vorderseite. Immunol. 2021, 12, 647934.
30. Fu, D.; Zhang, G.; Wang, Y.; Zhang, Z.; Hu, H.; Shen, S.; Wu, J.; Li, B.; Li, X.; Fang, Y.; et al. Strukturelle Basis für neutralisierende SARS-CoV-2-Antikörper mit neuartigen Bindungsepitopen. PLoS Biol. 2021, 19, e3001209.
31. Rogers, TF; Zhao, F.; Huang, D.; Beutler, N.; Burns, A.; Er, WT; Limbo, O.; Smith, C.; Lied, G.; Wöhl, J.; et al. Isolierung wirksamer SARS-CoV-2-neutralisierender Antikörper und Schutz vor Krankheiten in einem Kleintiermodell. Wissenschaft 2020, 369, 956–963.
32. Liu, R.; Americo, JL; Cotter, Kalifornien; Earl, PL; Erez, N.; Peng, C.; Moss, B. Eine oder zwei Injektionen eines MVA-vektorisierten Impfstoffs schützen hACE2-transgene Mäuse vor SARS-CoV-2-Infektionen der oberen und unteren Atemwege. Proz. Natl. Acad. Wissenschaft. USA 2021, 118, e2026785118.
33. Weisberg, SP; Connors, T.; Zhu, Y.; Baldwin, M.; Lin, WH; Wontakal, S.; Szabo, PA; Wells, SB; Dogra, P.; Gray, JI; et al. Die Antikörperreaktionen auf SARS-CoV2 sind bei Kindern mit MIS-C anders als bei Erwachsenen mit SARS-CoV-2. Version 1. medRxiv 2020, 20151068.
34. Wilkie, BN Immunantwort der Atemwege auf mikrobielle Krankheitserreger. Marmelade. Tierarzt. Med. Assoc. 1982, 181, 1074–1079.
35. Schiavone, M.; Gasperetti, A.; Mitacchione, G.; Viecca, M.; Forleo, GB Reaktion auf: COVID-19-Reinfektion. Geimpfte Personen als potenzielle Übertragungsquelle. EUR. J. Clin. Investig. 2021, 51, e13544.
36. Bleier, BS; Ramanathan, M.; Lane, AP COVID-19-Impfstoffe verhindern möglicherweise nicht die nasale SARS-CoV-2-Infektion und die asymptomatische Übertragung. Otolaryngol. Kopf-Hals-Chirurgie. 2021, 164, 305–307.
37. Matsuda, K.; Migueles, SA; Huang, J.; Bolkhovitinov, L.; Stuccio, S.; Grossman, T.; Pullano, AA; Kang, BH; Ishida, E.; Zimmermann, M.; et al. Ein replikationskompetenter Adenovirus-vektorisierter Influenza-Impfstoff induziert eine dauerhafte systemische und mukosale Immunität. J. Clin. Investig. 2021, 131.
38. Fröberg, J.; Diavatopoulos, DA Schleimhautimmunität gegen schwere Infektionen mit dem akuten respiratorischen Syndrom Coronavirus 2. Curr. Meinung. Infizieren. Dis. 2021, 34, 181–186.
39. CDC-Update: Science Brief: Hintergrundbegründung und Belege für öffentliche Gesundheitsempfehlungen für vollständig geimpfte Menschen, Zentren für die Kontrolle und Prävention von Krankheiten, SARS-CoV-2 2021. Aktualisiert am 2. April 2021.
40. Smith, N.; Goncalves, P.; Charbit, B.; Grzelak, L.; Beretta, M.; Planchais, C.; Bruel, T.; Rouilly, V.; Bondet, V.; Hadjadj, J.; et al. Ausgeprägte systemische und mukosale Immunantworten während einer akuten SARS-CoV-2-Infektion. Nat. Immunol. 2021, 22, 1428–1439.
41. Lopez, J.; Mommert, M.; Mouton, W.; Pizzorno, A.; Brengel-Pesce, K.; Mezidi, M.; Villard, M.; Lina, B.; Richard, J.-C.; Fassier, J.-B.; et al. Die frühe nasale Typ-I-IFN-Immunität gegen SARS-CoV-2 ist bei Patienten mit Autoantikörpern gegen Typ-I-IFNs beeinträchtigt. J. Exp. Med. 2021, 218.
42. Cheemarla, NR; Watkins, TA; Mihaylova, VT; Wang, B.; Zhao, D.; Wang, G.; Landry, ML; Foxman, EF Die dynamische angeborene Immunantwort bestimmt die Anfälligkeit für eine SARS-CoV-2-Infektion und die frühe Replikationskinetik. J. Exp. Med. 2021, 218, e20211211.
43. Sterling, D.; Mathian, A.; Miyara, M.; Mohr, A.; Anna, F.; Claër, L.; Quentric, P.; Fadlallah, J.; Devilliers, H.; Ghillani, P.; et al. IgA dominiert die frühe neutralisierende Antikörperreaktion auf SARS-CoV-2. Wissenschaft. Übers. Med. 2021, 13.
44. Butler, SE; Crowley, AR; Natarajan, H.; Xu, S.; Weiner, JA; Bobak, Kalifornien; Mattox, DE; Lee, J.; Wieland-Alter, W.; Connor, RI; et al. Besondere Merkmale und Funktionen der systemischen und mukosalen humoralen Immunität bei SARS-CoV-2-Rekonvaleszenten. Vorderseite. Immunol. 2021, 11, 618685.
45. Ketas, TJ; Chaturbhuj, D.; Cruz-Portillo, VM; Francomano, E.; Golden, E.; Chandrasekhar, S.; Debnath, G.; Diaz-Tapia, R.; Yasmeen, A.; Leconet, W.; et al. Antikörperreaktionen auf SARS-CoV-2-mRNA-Impfstoffe sind im Speichel nachweisbar. bioRxiv 2021, 11, 434841.
46. Hassan, AO; Kafai, NM; Dmitriev, IP; Fox, JM; Smith, BK; Harvey, IB; Chen, RE; Winkler, ES; Wessel, AW; Fall, JB; et al. Ein intranasaler ChAd-Impfstoff in Einzeldosis schützt die oberen und unteren Atemwege vor SARS-CoV-2. Zelle 2020, 183, 169–184.
47. Sui, Y.; Li, J.; Zhang, R.; Prabhu, SK; Andersen, H.; Venzon, D.; Koch, A.; Brown, R.; Teow, E.; Velasco, J.; et al. Schutz vor einer SARS-CoV-2-Infektion durch einen Schleimhautimpfstoff bei Rhesusaffen. JCI Insight 2021, 6.
48. Pierce, CA; Sy, S.; Galen, B.; Goldstein, DY; Orner, E.; Keller, MJ; Herold, KC; Herold, BC Natürliche Schleimhautbarrieren und COVID-19 bei Kindern. JCI Insight 2021, 6.
49. Quinti, I.; Mortari, EP; Salinas, AF; Milito, C.; Carsetti, R. IgA-Antikörper und IgA-Mangel bei SARS-CoV-2-Infektion. Vorderseite. Zelle. Infizieren. Mikrobiol. 2021, 11, 655896.
50. Çölkesen, F.; Kandemir, B.; Arslan, ¸S.; Çölkesen, F.; Yıldız, E.; Korkmaz, C.; Vatansev, H.; Evcen, R.; Aykan, FS; Kılınç, M.; et al. Zusammenhang zwischen selektivem IgA-Mangel und COVID-19-Prognose. Jpn. J. Infizieren. Dis. 2021.
51. Hellerstein, M. Welche Rolle spielen Antikörper im Vergleich zu einer dauerhaften, hochwertigen T-Zell-Antwort bei der schützenden Immunität gegen SARS-CoV-2? Impfstoff X 2020, 6, 100076.
52. Ewer, KJ; Barrett, JR; Belij-Rammerstorfer, S.; Sharpe, H.; Makinson, R.; Morter, R.; Morter, R.; Flaxman, A.; Wright, D.; Bellamy, D.; et al. T-Zell- und Antikörperreaktionen, die durch eine Einzeldosis des Impfstoffs ChAdOx1 nCoV-19 (AZD1222) in einer klinischen Phase-1/2-Studie induziert werden. Nat. Med. 2021, 27, 270–278.
53. Kared, H.; Redd, AD; Bloch, EM; Bonny, TS; Sumatoh, HR; Kairi, F.; Carbajo, D.; Abel, B.; Newell, EW; Bettinotti, Abgeordneter; et al. SARS-CoV-2–spezifische CD8-plus-T-Zell-Reaktionen bei rekonvaleszenten COVID-19-Personen. J. Clin. Investig. 2021, 131.
54. Zhuang, Z.; Lai, X.; Sun, J.; Chen, Z.; Zhang, Z.; Dai, J.; Liu, D.; Li, Y.; Li, F.; Wang, Y.; et al. Kartierung und Rolle der T-Zell-Antwort bei SARS-CoV-2-infizierten Mäusen. J. Exp. Med. 2021, 218.
Reginald M. Gorczynski1, Robyn A. Lindley2,3, Edward J. Steele4,5und Nalin Chandra Wickramasinghe6,7,8
1. Institut für medizinische Wissenschaft, Abteilung für Immunologie und Chirurgie, Universität Toronto, Toronto, ON M5S 3G3, Kanada