Rolle von FXR in der Nierenphysiologie und Nierenerkrankungen
Aug 28, 2023
Zusammenfassung: DieDer Farnesoid-X-Rezeptor, auch Gallensäurerezeptor genannt, gehört zur Superfamilie der Kernrezeptoren (NR) der ligandenregulierten Transkriptionsfaktoren, die ihre Funktion durch die Regulierung der Transkription von Zielgenen erfüllen. FXR wird stark in der Leber, im Dünndarm und im Dünndarm exprimiert.Niereund Nebenniere, die die Homöostase von Gallensäure, Glukose und Lipiden aufrechterhält, indem sie eine Vielzahl von Zielgenen regulieren. Es ist auch an mehreren pathophysiologischen Prozessen beteiligt, wie zEntzündung, Immunreaktionenund Fibrose. Die Niere ist ein Schlüsselorgan, das die Homöostase von Wasser und gelösten Stoffen im gesamten Körper regelt, und Nierenschäden oder -störungen sind mit einer hohen Morbidität und Mortalität verbunden. In der Niere spielt FXR eine wichtige Rolle bei der renalen Wasserrückresorption und soll bei akuten und chronischen Nierenerkrankungen, insbesondere bei diabetischer Nierenerkrankung, Schutzfunktionen ausüben. In diesem Aufsatz fassen wir die jüngsten Fortschritte im Verständnis der physiologischen undpathophysiologische Funktion von FXR in der Niere.
Schlüsselwörter: Farnesoid-X-Rezeptor; Nierenphysiologie;akute Nierenerkrankung; chronisches Nierenleiden

KLICKEN SIE HIER, UM CISTANCHE ZUR CNI-BEHANDLUNG ZU ERHALTEN
1. Einleitung
Kernrezeptoren sind eine Superfamilie ligandenabhängiger Transkriptionsfaktoren mit typischen Domänenstrukturen und konservierten Sequenzen. Es gibt 48 Mitglieder der menschlichen Kernrezeptor-Superfamilie, die eine entscheidende Rolle in einer Vielzahl von Prozessen der Physiologie und Pathophysiologie spielen, wie zHomöostase, Reproduktion, Entwicklung, Stoffwechsel,Fettleibigkeit, Diabetes, HypertonieUndKrebs. Daher ziehen sie immer die Aufmerksamkeit von Grundlagenwissenschaftlern, Klinikern und der Pharmaindustrie auf sich und machen bisher 3 % aller Humanarzneimittelziele aus [1].
Der nukleare Rezeptor Farnesoid-X-Rezeptor (FXR) wurde erstmals 1995 aus einer Rattenleber-cDNA-Bibliothek isoliert und nach seiner schwachen Aktivierung durch supraphysiologisches Farnesol, ein Zwischenprodukt im Mevalonat-Biosyntheseweg, benannt [2,3]. Anschließend wurden Gallensäuren als endogene FXR-Liganden identifiziert und erhielten einen anderen Namen: Gallensäurerezeptoren. Als Gallensäuresensor ist FXR ein wichtiger Modulator der enterohepatischen Zirkulation von Gallensäuren und steuert die Transkription wichtiger regulatorischer Gene bei der Gallensäuresynthese, der biliären Gallensäuresekretion und dem transintestinalen Gallensäuretransport zur Leber über den Pfortaderblutkreislauf. FXR dient auch als Stoffwechselregulator des Glukose-, Lipid- und Energiestoffwechsels. Aufgrund seiner Hauptfunktionen im Gallensäure- und Lipidstoffwechsel gilt FXR als vielversprechendes Wirkstoffziel für die Therapie gallensäurebedingter Lebererkrankungen. Im Jahr 2016 wurde Obeticholsäure (OCA), ein hochselektiver Agonist von FXR, von der US-amerikanischen Food and Drug Administration zur Behandlung der primären biliären Cholangitis (PBC), einer chronischen cholestatischen Lebererkrankung, zugelassen. Derzeit werden FXR-Agonisten in klinischen Studien zur Behandlung von Stoffwechselstörungen getestetMagen-Darm-Erkrankungen, einschließlichTyp 2 Diabetes(T2DM),Metabolisches SyndromUndNichtalkoholische Stratohepatitis(NASH).
Die Niere ist ein Schlüsselorgan, das die Homöostase von Wasser und gelösten Stoffen für den gesamten Körper reguliert. Nierenschäden oder -störungen sind mit einer hohen Morbidität und Mortalität verbunden. FXR weist eine hohe Expression in der Niere auf, über seine Rolle in der Niere ist jedoch wenig bekannt. Kürzlich haben wir und andere Gruppen berichtet, dass FXR an der renalen Wasserrückresorption beteiligt ist und an Nierenerkrankungen, einschließlich akuter Nierenschädigung und chronischer Nierenerkrankung, beteiligt ist. Dieser Aufsatz fasst die Struktur und Expression von FXR zusammen, wobei ein besonderer Schwerpunkt auf den jüngsten Fortschritten von FXR bei der Regulierung der Nierenphysiologie und Nierenerkrankungen liegt.
2. Die Struktur und der Ausdruck von FXR
Bei Tieren wurden zwei FXR-Proteinfamilien identifiziert. Sie stammen aus den Genen der Kernrezeptor-Unterfamilie 1, Gruppe H, Mitglied (NR1H) 4 und NR1H5 und werden FXR bzw. FXR genannt. Vom Fisch bis zum Menschen ist FXR bei allen Arten evolutionär konserviert. Aufgrund der Aktivierung zweier unterschiedlicher Promotoren und der Verwendung von alternativem Spleißen kodiert das FXR-Gen vier Isoformen (FXR 1–4) [4,5]. Eine aktuelle Studie identifizierte vier neuartige Spleißvarianten (FXR 5–8) in menschlichen Hepatozyten, die aus bisher unentdeckten Exon-Skipping-Ereignissen resultierten. Die mögliche Rolle dieser neuen Isoformen in der menschlichen Leber bedarf weiterer Untersuchungen [6]. Allerdings ist das FXR-kodierende Gen bei Menschen und Primaten ein Pseudogen [7]. FXR wird in Leber, Darm, Niere und Nebenniere stark exprimiert, mit geringer Expression im Fettgewebe und im Herzen. Die Expression von FXR 1-4 in verschiedenen Geweben bleibt unklar. Mithilfe der Southern-Blot-Analyse konnten Zhang et al. fanden heraus, dass Maus-FXR 1-4 die höchste Expression in der Leber aufwies und die Expressionsniveaus jeder Isoform ähnlich sind. Darüber hinaus werden FXR 1 und FXR 2 im Ileum und in der Nebenniere mäßig exprimiert; FXR 3 und FXR 4 werden im Ileum stark und in der Niere mäßig exprimiert [8]. In Zukunft sind weitere Anstrengungen erforderlich, um die Gewebeverteilung verschiedener FXR-Isoformen zu analysieren, um ihre Funktionen aufzuklären (Tabelle 1).
Tabelle 1. FXR-Isoformen

FXR weist eine typische Domänenstruktur eines Kernrezeptors (NR) auf, einschließlich einer N-terminalen Domäne (NTD), einer DNA-Bindungsdomäne (DBD), einer Gelenkregion und einer Ligandenbindungsdomäne (LBD). Die N-terminale Domäne (NTD) enthält eine ligandenunabhängige Transkriptionsaktivierungsdomäne (AF1), die mit anderen Koregulatorproteinen wie dem Peroxisom-Proliferator-aktivierten Rezeptor Gamma (PPAR), dem Koaktivator 1-Alpha (PGC1) und dem E1A-Bindungsprotein p300 interagieren kann (P300) und Kernrezeptor-Co-Repressor 2 (NCOR2/SMRT) [9] sowie viele posttranslationale Modifikationen (PTM), einschließlich Phosphorylierung, SUMOylierung, GlcNAcylierung, Acetylierung und Methylierung, können in dieser Region auftreten [10]. PGC-1 fungiert als Transkriptionskoaktivator von FXR, der direkt mit FXR interagiert und dessen Transaktivierungsaktivität verstärkt [11]. Die Phosphorylierung von FXR durch Proteinkinase C fördert seine Transkriptionsaktivität [12]. Die FXR-O-GlcNAcylierung an S62 führt zu einer erhöhten FXR-Aktivität [13]. Einige Coaktivatoren verfügen über eine intrinsische enzymatische Aktivität und können NRs selbst modifizieren. Die Acetylierung von FXR durch P300 erhöht seine Stabilität, verringert jedoch die FXR-RXR-Heterodimerisierung, was zu einer Verringerung der FXR-Zielgenexpression führt [14]. Die Zinkfinger-DNA-Bindungsdomäne (DBD) ist die am stärksten konservierte Domäne und enthält zwei Zinkfingermotive, die spezifische DNA-Sequenzen erkennen [15]. Die flexible Gelenkregion ist ein Linker zwischen DBD und LBD, an dem auch PTMs wie NTD reguliert werden [10]. Die Ligandenbindungsdomäne (LBD) besteht aus 11 Helices und vier Strängen, die sich in drei parallele Schichten falten, um ein Alpha-Helix-Sandwich zu bilden. Diese Falte bildet eine hydrophobe C-terminale Ligandenbindungstasche (LBP) und AF-2. LBD kann an Liganden binden und AF-2 kann Co-Aktivatoren rekrutieren [16–18]. Wenn Liganden vorhanden sind, bindet FXR an spezifische DNA-Sequenzen im Promotor von Zielgenen in Form eines Monomers oder eines Heterodimers mit dem Retinoid-X-Rezeptor (RXR), dem gemeinsamen Partner für NRs, um die Gentranskription zu regulieren [19].
3. Die Liganden von FXR
Gallensäuren sind wichtige endogene Agonisten von FXR. Cholsäure (CA) und Chenodesoxycholsäure (CDCA) sind zwei primäre Gallensäuren, die in der Leber synthetisiert werden. Aus CA und CDCA entstehen die sekundären Gallensäuren Lithocholsäure (LCA) und Desoxycholsäure (DCA). Die Wirksamkeit von Gallensäuren bei der Aktivierung von FXR wird wie folgt eingestuft: CDCA > DCA > LCA > CA [20]. OCA ist ein halbsynthetisches Derivat von CDCA, auch bekannt als 6-Ethyl-CDCA und INT-747, das der erste FXR-Agonist ist, der in die klinische Forschung aufgenommen wurde [21]. Allerdings hat OCA Nebenwirkungen wie dosisabhängigen Juckreiz, der bei ca. 1–10 % der Patienten zum Abbruch der Behandlung führen kann. EDP-305 ist ein weiterer Steroid-FXR-Agonist, der zur Behandlung von NASH und PBC untersucht wurde [22]. Um Nebenwirkungen zu reduzieren und die therapeutische Wirkung zu verbessern, wurden nach und nach nichtsteroidale FXR-Agonisten synthetisiert. Dazu gehören GW4064 [23], Cilofexor [24], Tropifexor [25], Nidufexor [26] und andere [27–34]. Daher werden FXR-Agonisten in den Kliniken aktiv zur Behandlung einer Vielzahl von Stoffwechselerkrankungen eingesetzt [35] (Tabelle 2).
Tabelle 2. Klinische Studien mit FXR-Agonisten.

Einige Gallensäuren gelten als FXR-Antagonisten. Es wurde berichtet, dass Tauro-Muricholsäure (T-MCA), ein endogener FXR-Antagonist, die Aktivierung von FXR hemmt [36]. Es wird berichtet, dass Glycin-Muricholsäure (Gly-MCA) die FXR-Signalübertragung ausschließlich im Darm hemmte, was zu einer Senkung des Serum- und Darm-Ceramidspiegels und einer Verbesserung der Stoffwechselstörung bei adipösen Mäusen führte [37]. Ursodesoxycholsäure (UDCA) übt FXR-FXR-antagonistische Wirkungen auf den Gallensäure- und Lipidstoffwechsel bei krankhafter Fettleibigkeit aus, obwohl es ein häufig verwendetes Therapeutikum bei cholestatischen Lebererkrankungen ist [38]. In jüngerer Zeit haben Brevini et al. fanden heraus, dass UDCA die Expression des Angiotensin-Converting-Enzyms 2 (ACE2) reduziert, indem es die FXR-Aktivität hemmt, was zu einer verringerten Anfälligkeit für eine SARS-CoV-2-Infektion führt [39]. Daher werden FXR-Antagonisten auch in Kliniken aktiv zur Behandlung mehrerer Erkrankungen eingesetzt (Tabelle 3).
Tabelle 3. Klinische Studien zu FXR-Antagonisten

4. Die allgemeine Funktion von FXR
4.1. FXR und Gallensäurestoffwechsel
FXR spielt eine entscheidende Rolle bei der Gallensäurehomöostase [46]. FXR hemmt die Gallensäuresynthese: In der Leber verringert FXR die Expression von Cytochrom P450 (CYP)7A1 und CYP8A1, die geschwindigkeitsbestimmende Enzyme bei der Gallensäurebiosynthese von Cholesterin sind [47,48]. In den Enterozyten des Darms induziert FXR die Expression des fibrotischen Wachstumsfaktors 15 (FGF15; FGF19, das Ortholog des Menschen von FGF15), der durch die Pfortader zur Leber wandert und dadurch den FGF-Rezeptor 4 (FGFR4)/-Klotho-Komplex aktiviert hemmt die Transkription von CYP7A1 und CYP8A1 [49]. FXR reduziert die Ansammlung von Gallensäure in Hepatozyten und Enterozyten: In der Leber kann FXR die Expression von Na+-Taurocholat-Cotransport-Polypeptid (NTCP) und organischen Anionen-Transportpolypeptiden (OATP) an der Sinusmembran hemmen, um die Reabsorption von Na+-Taurocholat zu reduzieren Gallensäuren in der Pfortader [50]. FXR fördert die Ausscheidung von Gallensäuren in die Galle, indem es Transporter auf der apikalen Membranoberfläche aktiviert, darunter Multidrug-Resistenz-assoziiertes Protein (MRP)2/3 [51], Gallensalz-Exportpumpe (BSEP) [52] und Multidrug-Resistenz (MDR). )2/3 [53]. FXR fördert auch den Gallensäureausfluss in den Blutkreislauf, indem es die Expression von MRP4 und dem Transporter für organische gelöste Stoffe (OST)/OST in der basolateralen Membran induziert [54]. Im Darm hemmt FXR den apikalen natriumabhängigen Gallensäuretransporter (ASBT) an der apikalen Membranoberfläche [55], wodurch die Rückresorption von Gallensäuren im Darmepithel verringert, das ileale Gallensäure-bindende Protein (IBABP) hochreguliert und dessen Wirkung gefördert wird Bewegung von der apikalen Membran zur basolateralen Membran [56]. Darüber hinaus fördert FXR den Transport von Gallensäuren zur Pfortader und deren anschließende Rückkehr zur Leber durch Hochregulierung der Expression von OST und OST auf der basolateralen Membranoberfläche des Enterozyten [57].

4.2. FXR und Glukosestoffwechsel
FXR spielt verschiedene Rollen im Glukosestoffwechsel. Die Aktivierung von FXR erhöht die Glykogensynthese durch Hemmung der Genexpression der Glykogensynthase-Kinase-3-Beta (GSK3), die die Glykogensynthase phosphoryliert und anschließend inaktiviert [58,59], reduziert die Glykolyse durch Unterdrückung der Transkriptionsaktivität von ChREBP [60] und verringert die Expression von mehreren glukoneogenen Genen, einschließlich Phosphoenolpyruvatcarboxykinase (PEPCK) und Glucose-6-phosphatase (G-6-Pase) [58,61], was zu einer Abnahme der Glukoneogenese und des Serumglukosespiegels führt. Mehrere Studien ergaben jedoch, dass FXR-Antagonisten eine positive Wirkung auf den Glukosestoffwechsel bei T2DM-Mäusen hatten, obwohl der genaue Mechanismus unklar bleibt [62]. Darüber hinaus erhöht FXR die glukosestimulierte Insulinsekretion in Inseln [63], indem es die Expression des glukoseregulierten Transkriptionsfaktors Krueppel-like-Faktor 11 (KLF11) [64], der Adenylylcyclase 8 (ADCY8) [65] und des transienten Rezeptorpotentials induziert Ankyrin 1 (TRPA1)-Kanal [66].
4.3. FXR und Lipidstoffwechsel
FXR senkt den Plasmaspiegel des Low-Density-Lipoprotein-Cholesterins (LDL-C) [67], indem es die Internalisierung und den Abbau des LDL-Partikels induziert [68]. Darüber hinaus wurde festgestellt, dass FXR-Knockout-Mäuse aufgrund der verringerten Expression des Reverse-Cholesterin-Transportgens, des Scavenger-Rezeptor-Klasse-B-Mitglieds 1 (SCARB1) und der ATP-Bindungskassette (ABC) einen erhöhten Plasma-High-Density-Lipoprotein-Cholesterinspiegel (HDL-C) aufwiesen ) Transporter G5 (ABCG5) und G8 (ABCG8), die die Entfernung von HDL-C aus dem Blut erleichterten [69,70].
Schließlich kann FXR auch die Ansammlung von Cholesterin in Hepatozyten und Nierenepithelzellen reduzieren. Dies kann erreicht werden, indem die Cholesterinsynthese durch Hemmung der Expression von Sterol-regulatorischem Element-bindendem Protein 2 (SREBP-2) und Hydroxy-Methylglutaryl-CoA (HMG-CoA) verringert wird [71] und der Cholesterinausfluss durch Erhöhung der Expression von gefördert wird ATP-BindungskassettentransporterA1 (ABCA1) [72]. Andererseits senkte FXR die Triglyceridakkumulation in der Leber und der Niere sowie die Triglyceridspiegel im Plasma in Insulinresistenzmodellen wie ob/ob- und KK-Ay-Mäusen [59], indem es die Expression von Fettsäuresynthase (FAS) und Acetyl-CoA-Carboxylase reduzierte (ACC). Dies wurde durch die Hemmung von SREBP-1c und dem Kohlenhydrat-Response-Element-Bindungsprotein (ChREBP) erreicht [73–75] und die Triglycerid-Clearance durch Erhöhung der Fettsäureoxidation über die PPAR/Carnitin-Palmitoyltransferase-I-(CPT1)-Achse [76,77] gefördert Reduzierung der Fettsäureaufnahme durch Reduzierung der Expression von CD36 [78]. In Adipozyten induziert FXR die Aufhellung des braunen Fettgewebes (BAT), was sich in großen intrazellulären Lipidtröpfchen und extrazellulärer Kollagenablagerung als Folge der Aktivierung der Stearoyl-Coenzym-A-Desaturase (SCD)-Expression über die PPAR-Aktivierung äußert [79–82] (Abbildung 1).
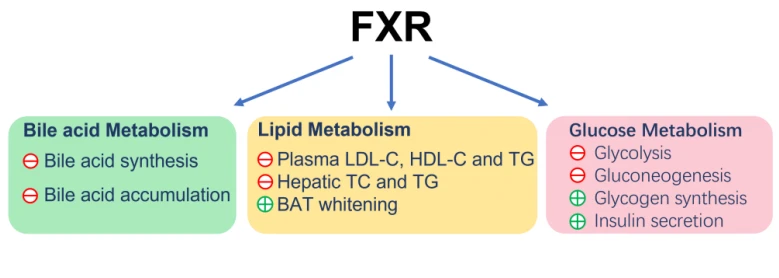
Abbildung 1. Die allgemeine Funktion von FXR. ㊉ zeigt Stimulation an; ㊀ zeigt Hemmung an
Unterstützender Service:
E-Mail:wallence.suen@wecistanche.com
WhatsApp/Tel:+86 15292862950
Geschäft:
https://www.xjcistanche.com/cistanche-shop