Die Analyse der Antikörperreaktionen von mit Gam-COVID-Vac geimpften Probanden legt nahe, dass Epitope außerhalb von RBD an der SARS-CoV-2-Neutralisierung beteiligt sind
Oct 16, 2023
Abstrakt: Millionen von Menschen wurden mit Gam-COVID-Vac geimpft, aber die genauen Spezifitäten der induzierten Antikörper wurden noch nicht vollständig untersucht. Plasma von 12 unbehandelten und 10 von der Coronavirus-Krankheit 2019 (COVID-19) rekonvaleszenten Probanden wurde vor und nach zwei Immunisierungen mit Gam-COVID-Vac gewonnen. Die Antikörperreaktivität in den Plasmaproben (n=44) wurde an einer Reihe von mikroarrayierten rekombinanten gefalteten und ungefalteten Proteinen des schweren akuten respiratorischen Syndroms Coronavirus 2 (SARS-CoV-2) und 46 Peptiden untersucht, die sich über die Spitze erstrecken Protein (S) und durch den enzymgebundenen Immunosorbens-Assay (ELISA) der Unterklasse Immunglobulin G (IgG). Die Fähigkeit von Gam-COVID-Vac-induzierten Antikörpern, die Bindung der Rezeptorbindungsdomäne (RBD) an ihr Rezeptor-Angiotensin-Converting-Enzym 2 (ACE2) zu hemmen, wurde in einem molekularen Interaktionstest (MIA) untersucht. Die virusneutralisierende Kapazität von Antikörpern wurde mit dem pseudotypisierten Virusneutralisationstest (pVNT) für Wuhan-Hu-1 und Omicron untersucht. Wir fanden heraus, dass die Gam-COVID-Vac-Impfung in vergleichbarer Weise bei naiven und genesenen Patienten einen signifikanten Anstieg von IgG1, jedoch nicht anderer IgG-Unterklassen gegen gefaltetes S, Spike-Protein-Untereinheit 1 (S1), Spike-Protein-Untereinheit 2 (S2) und RBD induzierte Fächer. Die Virusneutralisierung korrelierte stark mit durch die Impfung induzierten Antikörpern, die für gefaltetes RBD und ein neues Peptid (dh Peptid 12) spezifisch sind. Peptid 12 befand sich in der Nähe von RBD im N-terminalen Teil von S1 und könnte möglicherweise am Übergang der Prä- zur Postfusionskonformation des Spike-Proteins beteiligt sein. Zusammenfassend lässt sich sagen, dass die Gam-COVID-Vac-Impfung bei naiven und rekonvaleszenten Probanden in vergleichbarer Weise S-spezifische IgG1-Antikörper induzierte. Neben den für RBD spezifischen Antikörpern waren auch die gegen ein Peptid in der Nähe des N-Terminus von RBD induzierten Antikörper mit der Virusneutralisierung verbunden.
Schlüsselwörter: SARS-CoV-2; COVID-19; Gam-COVID-Vac; Epitop; Antikörper; Virusneutralisierung; molekularer Interaktionstest; Omikron

Vorteile von Cistanche-Ergänzungsmitteln – Erhöhung der Immunität
Klicken Sie hier, um die Produkte von Cistanche Enhance Immunity anzusehen
【Fragen Sie nach mehr】 E-Mail:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
1. Einleitung
Nach den ersten Infektionsfällen mit dem Severe Acute Respiratory Syndrome Coronavirus 2 (SARS-CoV-2) Ende 2019 in Wuhan, China, breitete sich die neuartige Coronavirus-Krankheit (COVID-19) schnell überall aus die Welt und entwickelte sich zu einer globalen Pandemie [1–4]. Die schnelle Entwicklung von COVID-19-Impfstoffen und die Einführung globaler Impfprogramme sowie das Auftreten weniger pathogener SARS-CoV-2-Varianten gelten als wesentliche Faktoren für die Reduzierung von COVID-19-assoziierten Todesfällen und die Schwere der Pandemie [1,5]. Die ersten Impfstoffe, die verfügbar wurden, waren genetische Impfstoffe, die auf der Adenovirus-vermittelten Übertragung des Gens basierten, das für das SARS-CoV-2-Oberflächenprotein S kodiert [6–8]. Das SARS-CoV-2 S-Protein besteht aus der S1-Untereinheit, die die Rezeptorbindungsdomäne (RBD) enthält, die an ihren Rezeptor ACE2 auf menschlichen Zellen bindet, und der S2-Untereinheit, die durch proteolytische Spaltung die Virusbindung an die Wirtszellmembran gewährleistet Fusionspeptid (FP) während der Virusinfektion [9]. Das S-Gen, das für den Gentransfer in bestimmten Impfstoffen auf Adenovirus-Basis (z. B. COVID-19 Vaccine Janssen) verwendet wird, kann modifiziert werden, um das Protein zu stabilisieren und seine Spaltung zu beeinflussen, bei den anderen ist dies jedoch nicht der Fall [10]. Menschliche Zellen, die mit Adenoviren infiziert sind, die das S-kodierende Gen enthalten, produzieren eine unterschiedliche Menge des S-Antigens, das freigesetzt und vom Haupthistokompatibilitätskomplex (MHC) der Klasse II den T-Zellen präsentiert wird, was zur Unterstützung der CD4+-T-Zellen führt zur Produktion von S-spezifischen Antikörpern. Von transfizierten Zellen exprimiertes S-Protein wird auch von MHC-Klasse I auf der Oberfläche der infizierten Zelle präsentiert und löst die Aktivierung von S-spezifischen zytotoxischen CD8+-T-Zellen aus, die S-Antigen-produzierende Zellen erkennen und zerstören können. Das Prinzip der Impfung, d. h. die Einführung S-kodierender genetischer Informationen in Wirtszellen und die anschließende Produktion von S-Antigenen durch die infizierten Zellen, ähnelt den Boten-Ribonukleinsäure-Impfstoffen (mRNA), obwohl sich die Technologie des Gentransfers vom Adenovirus unterscheidet -basierte Impfstoffe. Somit ahmen „genetische Impfstoffe“ in gewissem Maße eine natürliche SARS-CoV-2-Infektion nach. Die Identifizierung von Epitopen, die von Antikörpern geimpfter Personen erkannt werden, die an der Virusneutralisierung beteiligt sind, ist nicht nur für das Verständnis des Wirkungsmechanismus bestehender Impfstoffe von entscheidender Bedeutung, sondern auch für die Entwicklung verfeinerter aktiver Impf- und passiver Immunisierungsstrategien gegen COVID-19 [11 ,12]. Die meisten aktuellen Impfstoffe konzentrieren sich auf die Erzielung einer S-spezifischen Antikörperantwort mit besonderem Augenmerk auf die RBD-spezifische Antikörperantwort, da festgestellt wurde, dass RBD-spezifische Antikörper mit einer hohen neutralisierenden Aktivität gegen SARS-CoV korrelieren-2 [ 13–15]. Die Anzahl der Mutationen, die von jeder neuen besorgniserregenden Variante (VOC) erworben werden, zeigt jedoch, wie wichtig es ist, Epitope zu identifizieren, die unter VOCs konserviert sind, auf die neutralisierende Antikörper abzielen und die sich nicht nur in RBD, sondern auch außerhalb von RBD befinden [16]. Tatsächlich gibt es Studien, die auf das Vorhandensein neutralisierender Epitope außerhalb von RBD hinweisen, die von Antikörpern nach der Immunisierung erkannt werden [17–20]. Im Jahr 2020 wurde der vektorbasierte Impfstoff Gam-COVID-Vac, auch Sputnik-V genannt, für den Einsatz in der klinischen Praxis verfügbar und ist derzeit in mehr als 70 Ländern für den Einsatz zugelassen (https://sputnikvaccine.com/about-vaccine). / (abgerufen am 17. Januar 2023)). Laut der Ressource Our World In Data (OWID) haben 79 Millionen Menschen in Russland mindestens eine Impfung erhalten und 72 Millionen sind vollständig geimpft (https://ourworldindata.org/covid-vaccinations?country= RUS (abgerufen am 22. März 2022). Gam-COVID-Vac besteht aus zwei Impfstofftypen, die auf zwei verschiedenen humanen Adenovirus-Vektoren (hAd26 und hAd5) basieren, die die native Form des S-Proteins des Wuhan-Hu-1-Stamms SARS-CoV{{ 73}}. Sputnik-V umfasst zwei Injektionen, eine mit hAd26 und eine zweite mit hAd5 und Sputnik Light, nur mit hAd26. Die beiden unterschiedlichen Adenovirus-Vektoren werden für die erste und zweite Immunisierung verwendet, um die Möglichkeit zu verringern, dass geimpfte Personen eine Immunität gegen die S-Protein-Immunität gegen das Adenovirus entwickeln. Tatsächlich würden Adenovirus-spezifische Antikörper die Wirksamkeit von Auffrischungsimpfungen durch Neutralisierung des Adenovirus-Vektorvehikels einschränken. Daher erfolgt am 21. Tag nach der ersten Dosisverabreichung eines Impfstoffs mit rAd26 eine wiederholte Antigenabgabe mit dem rAd5-Vektor [8,21]. Nur wenige Studien haben S- und RBD-spezifische Antikörperreaktionen und die Virusneutralisierungsaktivität in Seren von Gam-COVID-Vac-Geimpften in nennenswertem Umfang untersucht [10,22,23]. Es wurde über einen Anstieg von RBD-spezifischen IgG-Antikörpern drei Monate nach der Verabreichung von Gam-COVID-Vac berichtet und es wurde gezeigt, dass Antikörper mit besorgniserregenden Alpha-, Beta-, Delta- und Omicron-Varianten kreuzreagieren [24–26]. Gam-COVID-Vac wurde auch mit mehreren anderen zugelassenen Impfstoffen gegen SARS-CoV verglichen, die eine hohe Virusneutralisierung und eine hohe Wirksamkeit gegen die COVID-bedingte Mortalität für Sputnik-V zeigten, wenn auch leichte Unterlegenheit zu einigen mRNA-Impfstoffen hinsichtlich der Virusneutralisierung wurde festgestellt [24]. Schließlich wurde gezeigt, dass die Immunisierung von Patienten, die mit dem humanen Immundefizienzvirus positiv (HIV+) und antiretroviraler Therapie (ART-behandelt) behandelt wurden, mit Gam-COVID-Vac eine epidemiologische Wirksamkeit gegen den ursprünglichen Wildtyp und die Delta-Variante von SARS-CoV zeigt{{ 113}} [27]. Bisher wurde jedoch keine detaillierte Analyse der Epitoperkennung durch Antikörper bei Gam-COVID-Vac-geimpften Personen durchgeführt und es sind Daten erforderlich, um den Immunglobulin-Isotyp und die IgG-Unterklassenreaktionen bei Gam-COVID-Vac-geimpften Personen zu verstehen. Hier untersuchten wir zwei Gruppen von Probanden, die mit Gam-COVID-Vac geimpft worden waren, eine mit einer früheren SARS-CoV-2-Infektion und eine weitere Gruppe von SARS-CoV-2-naiven Probanden. Wir führten eine sorgfältige Analyse der Epitopspezifität induzierter Antikörper unter Verwendung mikroarrayierter, von SARS-CoV-2- abgeleiteter gefalteter und ungefalteter Proteine und Peptide durch, die das gesamte S-Protein, einschließlich RBD, abdecken. Darüber hinaus wurden die Reaktionen der IgG-Subklassen analysiert. Unsere Studie zeigt, dass mit Gam-COVID-Vac geimpfte Personen RBD-spezifische Antikörper bilden, die die RBD-ACE2-Interaktion blockieren können. Interessanterweise fanden wir heraus, dass die Virusneutralisierung auch mit Antikörpern verbunden war, die gegen ein Peptid außerhalb von RBD gerichtet waren, das möglicherweise am Übergang der Prä-zu-Post-Fusions-Konformation des Spike-Proteins beteiligt ist.

Cistanche tubulosa – verbessert das Immunsystem
2. Ergebnisse
2.1. Zu den Gam-COVID-Vac-geimpften Probanden zählen COVID-19-naive und rekonvaleszente Probanden
Rekonvaleszente Personen waren mit dem Wuhan-Hu-1-Stamm infiziert, entsprechend seiner Prävalenz und den Sequenzierungsdaten, die zum Zeitpunkt der Infektion in der Region Moskau erhoben wurden. Naive Probanden hatten zum Zeitpunkt der Rekrutierung keine Symptome von COVID-19 und keine SARS-CoV-2-spezifischen Antikörper. Zu den Studienteilnehmern gehörten 15 Frauen und 7 Männer mit einem Durchschnittsalter von 60 (dh 25–70 Jahren) (Tabelle 1).
Tabelle 1. Demografische, klinische und serologische Merkmale der Probanden.

Von jedem Probanden wurde zum Zeitpunkt 0 (d. h. Basislinie) eine Plasmaprobe entnommen (Abbildung 1A), dann wurde jeder Proband mit einem Abstand von etwa 21 Tagen zwischen dem ersten und dem zweiten Tag mit Sputnik-V geimpft Injektion (Zeitpunkte 1 und 2). Zum Zeitpunkt 3 wurde eine zweite Plasmaprobe entnommen, um die impfstoffinduzierten Antikörperreaktionen zu bestimmen (Abbildung 1A). Die Probanden wurden weitere 120 Tage lang beobachtet. Am Tag 110 nach der letzten Impfung hatte ein Proband (d. h. Proband 22) COVID-19, während die anderen keine Symptome von COVID-19 entwickelt hatten (Tabelle 1).

Abbildung 1. Studiendesign und SARS-CoV-2-spezifische Antikörperreaktionen vor und nach der Impfung mit Sputnik-V. (A) Studiendesign. Plasmaproben wurden von COVID-19-naiven (n=12) und rekonvaleszenten Probanden (n=10) zum Zeitpunkt 0 (Basislinie) entnommen, dann erhielten die Probanden zwei Sputnik-V Impfungen zum Zeitpunkt 1 bzw. 2 und eine Plasmaprobe wurde zum Zeitpunkt 3 (d. h. Tag 80–85 nach der ersten Impfung) entnommen. (B) Nukleokapsid-spezifische IgG-Antikörperspiegel (y-Achse: ISU) bei naiven und rekonvaleszenten Probanden (x-Achse) zu Studienbeginn. Die horizontale Linie zeigt den Grenzwert für Positivität an. (C) IgG-Antikörperspiegel (y-Achsen: ISU), spezifisch für RBD, S, S1 und S2 bei Probanden zum Zeitpunkt 0 und 3 (x-Achsen). (D) Von links nach rechts IgG1-, IgG2-, IgG3- und IgG4-Antikörperspiegel (y-Achsen: OD-Werte der optischen Dichte) bis S (oberer Teil) und RBD (unterer Teil) zu den Zeitpunkten 0 und 3 ( x-Achsen). Signifikante Unterschiede zwischen den Gruppen, bestimmt durch den Wilcoxon-Test, werden angezeigt: ** p < 0.01, *** p < 0,001, **** p < 0,0001, ns – nicht signifikant.
2.2. Die Gam-COVID-Vac-Impfung induziert breite IgG-Reaktionen auf S, einschließlich S1, RBD und S2

Vorteile von Cistanche-Ergänzungsmitteln – Erhöhung der Immunität
Wir führten eine detaillierte Analyse der Antikörperreaktionen gegen eine große Gruppe mikroarrayierter gefalteter und ungefalteter SARS-CoV-2-Proteine und Peptide durch, die das S-Protein in Plasmaproben von SARS-CoV-2--naiven und rekonvaleszenten Probanden umfassen nach einer vollständigen Impfung mit Gam-COVID-Vac (Abbildung 1A,B; Tabelle 1). Beim Vergleich von Plasmaproben vom Zeitpunkt 0 und vom Zeitpunkt 3 nach der Impfung wurde eine signifikante Induktion von IgG-Reaktionen gegen gefaltete, aber nicht entfaltete RBD, S, S1 und S2 festgestellt (Abbildung 1C). Drei Monate nach der Impfung zeigten die Probanden einen {{14}fachen Anstieg der RBD-spezifischen IgG-Antikörper (p < 0.{{20}}001) und einen {{ 18}facher Anstieg der S-spezifischen IgG-Antikörper (d. h. Zeitpunkt 0: Median 0,291, Zeitpunkt 3: Median 5,778) (p < 0,0001). IgG-Antikörper gegen S1 stiegen um das 3,{30}}-fache (p=0,0023) und IgG-Antikörper gegen S2 stiegen um das 2,{35}-fache (p=0,0094) (Abbildung 1C ). Die Impfung mit Gam-COVID-Vac induzierte hauptsächlich IgG-Reaktionen auf gefaltetes S, S1 und RBD, vergleichbar bei naiven und rekonvaleszenten Probanden (Abbildungen 1C, S2 und S3), was darauf hindeutet, dass sie zur Verstärkung von SARS-CoV eingesetzt werden kann-2- spezifische Antikörperreaktionen auch bei Rekonvaleszenten. Bei naiven und rekonvaleszenten Probanden wurden signifikante Anstiege der IgG-Antikörper gegen RBD, S und S1 beobachtet (Abbildung S2), und es gab keine signifikanten Unterschiede hinsichtlich der IgG-Spiegel gegen RBD, S, S1 und S2 bei naiven und rekonvaleszenten Probanden zum Zeitpunkt 3 (Abbildung S3).
2.3. Die Gam-COVID-Vac-Impfung induziert hauptsächlich eine IgG1-Unterklassenreaktion auf S und RBD
Es wurde berichtet, dass die allergenspezifische Immuntherapie (AIT) hauptsächlich allergenspezifische IgG1- und IgG4-Antworten induziert, die sich nicht nur hinsichtlich ihrer Effektorfunktionen unterscheiden (IgG1 kann antikörperabhängige zelluläre Zytotoxizität (ADCC) und Komplementaktivierung vermitteln, während IgG4 diese nicht besitzt). Effektorfunktionen), sondern auch hinsichtlich ihrer Kinetik (IgG1: schneller Beginn und früher Rückgang; IgG4: langsamer Beginn, aber anhaltende Werte) [28–30]. Wir untersuchten daher die Reaktionen der IgG-Unterklasse (dh IgG1–IgG4) auf S und RBD bei Sputnik-V-geimpften Probanden. Abbildung 1D zeigt, dass die Impfung fast ausschließlich eine Reaktion der IgG1-Unterklasse auf S und RBD hervorrief. Nach der Impfung wurde ein signifikanter Anstieg der für S und RBD spezifischen IgG1-Spiegel (p=0.0002 bzw. p=0.0071) festgestellt. Es konnten jedoch keine relevanten IgG2-, IgG3- oder IgG4-Unterklassenreaktionen speziell für S und RBD festgestellt werden (Abbildung 1D).
2.4. Induktion virusneutralisierender Antikörper und Antikörper, die die RBD-ACE2-Interaktion hemmen, durch Gam-COVID-Vac-Impfung
Zum Nachweis virusneutralisierender Antikörper verwendeten wir einen pVNT-Test, bei dem virusähnliche Partikel mit S-Protein aus dem ursprünglichen Wuhan-Hu-1-Stamm und dem kürzlich beschriebenen VOC Omicron pseudotypisiert wurden. Antikörper mit neutralisierender Aktivität für den Stamm Wuhan Hu-1 wurden bei allen bis auf einen (d. h. Proband 22) der 22 Probanden gefunden (Abbildung 2A, Tabelle 2), während die neutralisierenden Antikörpertiter für Omicron deutlich niedriger waren (Abbildung 2B) und nur bei 17 von 20 Probanden gefunden (Abbildung 2A, Tabelle 2). Für die Probanden 6, 7, 10, 11, 15 wurde keine relevante Neutralisierung gefunden (Abbildung 2A, Tabelle 2). Die Virusneutralisierungstiter für Omicron waren 25-mal niedriger als für WT (Median 141,9 bzw. 5,7 für Wuhan-Hu-1 und Omicron) (Abbildung 2B).

Abbildung 2. Virusneutralisierende Aktivität im Plasma 3 Monate nach der Sputnik-V-Impfung und Zusammenhang mit IgG-Antikörperreaktionen auf RBD und S-abgeleitete Peptide. (A) Die Virusneutralisierung (ID50) (y-Achse) gegen den Stamm Wuhan-hu-1 (grün) und Omicron (orange) wurde mit Plasma von naiven (blau) und rekonvaleszenten (rot) erhalten. Themen (x-Achsen). (B) Vergleich der Virusneutralisierung (y-Achse: ID50, erhalten für Plasma der getesteten Probanden, Balken stellen Mediane mit Interquartilbereich (IQR) Wuhan Hu-1 (grün) und Omicron (orange) dar. Die horizontale Linie stellt Ergebnisse dar, die mit Plasma einer gesunden, nicht infizierten Kontrollperson (gesunde Kontrolle, HC) erhalten wurden. Signifikante Unterschiede zwischen den Stämmen wurden durch den Mann-Whitney-Test bestimmt: **** p < 0. {{30}}001. (C) Lokalisierung von RBD und Peptiden korreliert mit der Virusneutralisierung in einem Schema von S (S1, S2). (D) Korrelationen zwischen Virusneutralisierungstitern für Wuhan-Hu{{19 }} (WT) oder Omicron (Y-Achsen) und IgG-Spiegel, die für RBD und die Spike-abgeleiteten Peptide 12, 32 und 46A (X-Achsen: ISU) spezifisch sind. Blaue und rote Symbole kennzeichnen naive bzw. rekonvaleszente Probanden. Sternchen weisen auf signifikante Korrelationen gemäß dem nichtparametrischen Spearman-Test hin, * p < 0,05, ** p < 0,01, *** p < 0,001 **** p < 0,0001, ns=nicht signifikant.
Tabelle 2. Vergleich der für S, S1, S2 und RBD spezifischen IgG-Spiegel, gemessen mittels Mikroarray, mit Hemmungen der RBD-Bindung an ACE2 und Virusneutralisationstitern (Wuhan-Hu-1, Omicron), bestimmt für Plasma aus dem untersuchte Themen. Die Wärmekartierung wurde für jeden Parameter separat mit Excel durchgeführt. Die höchste Stufe galt als dunkelrot und die niedrigste als weiß.

Die Tatsache, dass bei allen außer einem Probanden (d. h. Proband 22) die virusneutralisierenden Antikörper nach der Impfung anstiegen, deutet darauf hin, dass sie durch die Impfung induziert wurden (Tabelle 2). Proband 21 zeigte bereits zu Studienbeginn eine starke Blockierung der RBD-ACE2-Interaktion bei MIA und eine hohe Virusneutralisierung (Tabelle 2). Bemerkenswert ist, dass Plasmaproben von Gam-COVID-Vac-geimpften Rekonvaleszenten mit mittelschwerer Erkrankung (Nr. 1, 2, 17, 18, 21) höhere Virusneutralisationstiter aufwiesen als diejenigen von Rekonvaleszenten mit leichter Erkrankung (Nr. 22) oder ohne Symptome (Nr. 4, 5, 7, 9) (Tabellen 1 und 2). Eine wichtige Erkenntnis war jedoch, dass die Hemmung der RBD-Bindung an ACE2 und die Virusneutralisierung nicht immer miteinander verbunden waren. Eine mehr als 25-prozentige Hemmung der Bindung von RBD Wuhan Hu-1 an ACE2 trat nur bei 6 Probanden auf, die aufgrund der Impfung auch eine Hemmung im Virusneutralisationstest gezeigt hatten (d. h. Probanden 1, 2, 3, 17, 18). und 19) (Tabelle 2). Interessanterweise wurde bei 6 Probanden eine virusneutralisierende Aktivität (50 % Infektionsdosis (ID50) > 100) beobachtet, obwohl sie keine oder nur eine geringe Hemmung der RBD-Bindung an ACE2 zeigten (Tabelle 2: Probanden 6, 10, 12, 13, 16, 20). .
2.5. Die Virusneutralisierung bei Gam-COVID-Vac-geimpften Personen korreliert stark mit IgG-Reaktionen auf RBD und auf das S-abgeleitete Peptid 12
Wie bereits erwähnt, zeigte Plasma von mehreren mit Gam-COVID-Vac geimpften Probanden (z. B. bei den Probanden 6, 10, 12, 13, 16, 20; Tabelle 2) eine virusneutralisierende Aktivität, hemmte jedoch nicht die RBD-ACE2-Interaktion. Wir analysierten daher die Reaktivität von IgG-Antikörpern gegenüber den Peptiden, die das S-Protein umspannen, durch Mikroarray-basierte Chipanalyse [13] (Abbildung S4 und Abbildung 2C) und korrelierten peptidspezifische IgG-Antworten mit der Virusneutralisierung des Wuhan-Hu{{19} } Stamm und Omicron (Abbildung 2D). IgG-Reaktionen auf drei Peptide (d. h. Peptide 12, 32, 46A), wie z. B. IgG-Reaktionen auf gefaltetes RBD, korrelierten signifikant mit der Neutralisierung des Wuhan-Hu-1-Stammes (Abbildung 2C, D). Peptid 12 zeichnete sich dadurch aus, dass die Antikörperreaktionen auf das ungefaltete Peptid 12 (Abbildung S1), nicht jedoch auf die ungefalteten Peptide 32 und 46A, durch Gam-COVID Vac bei naiven Probanden signifikant verstärkt wurden (Abbildung 3A) und auch signifikant mit der Neutralisierung von Omicron korrelierten (Abbildung 2D). ). Bei rekonvaleszenten Probanden wurde keine signifikante Verstärkung der Peptide 12, 32 oder 46A beobachtet (Abbildung 3A). Die Sequenz von Peptid 12 ist unter SARS-CoV-2-Stämmen hoch konserviert (Abbildung 4) und befindet sich in S1 nahe dem N-Terminus von RBD und bezeichnet daher eine Region, die für den Übergang des Prä- zur Postfusionskonformation des S-Proteins (Abbildung 3B).
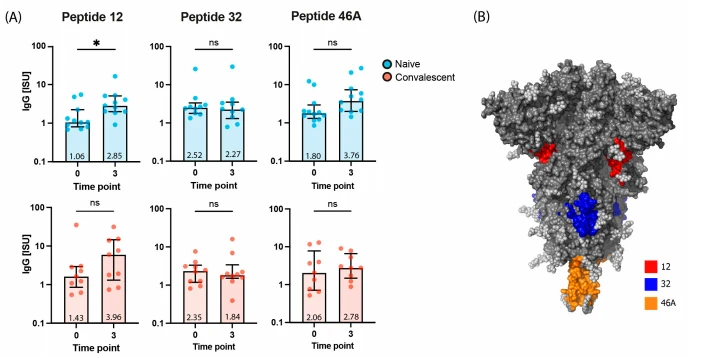
Abbildung 3. Mittlere IgG-Antikörperspiegel (y-Achsen: ISU) gegen S-abgeleitete Peptide (P12, P32, P46A) bei geimpften naiven und rekonvaleszenten Probanden zu den Zeitpunkten 0 und 3 (x-Achsen) (A) . Signifikante Unterschiede zwischen den Gruppen, wie durch den Wilcoxon-Test bestimmt, werden angezeigt: * p < 0.05, ns=nicht signifikant. (F) (B) Abbildung 3. Mittlere IgG-Antikörperspiegel (y-Achsen: ISU) gegen S-abgeleitete Peptide (P12, P32, P46A) bei geimpften naiven und rekonvaleszenten Probanden zu den Zeitpunkten 0 und 3 (x -Achsen) (A). Signifikante Unterschiede zwischen den Gruppen, bestimmt durch den Wilcoxon-Test, sind angegeben: * p < 0,05, ns=nicht signifikant. (B) Visualisierung der Peptide 12, 32 und 46A in der Oberflächendarstellung des mit PyMOL erzeugten SARS-CoV-2-Spike-Protein-Trimers (Seitenansicht, Konformation vor der Fusion). Peptid 12 ist im S-Trimer-Modell rot hervorgehoben, Peptid 32 blau und 46A orange. Kohlenhydrate werden in hellgrau dargestellt.
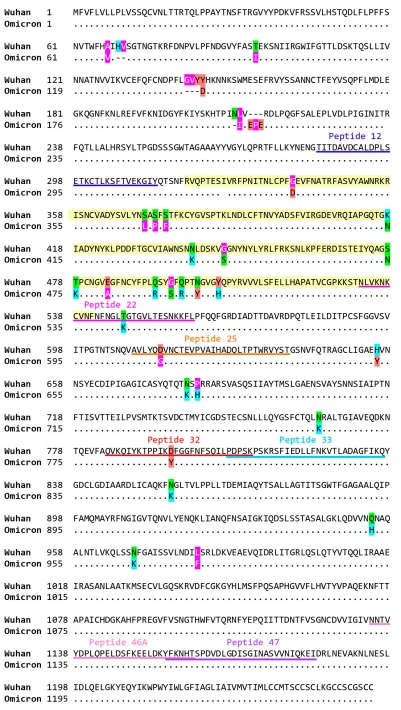
Abbildung 4. Proteinsequenz-Alignment von Wuhan-Hu-1 (oben) und Omicron (unten) des SARS-CoV-2-S-Proteins. RBD ist hellgelb gefärbt und die Peptide 12, 22, 25, 32, 33, 46A und 47 sind unterstrichen. Wuhan-S-Protein-Sequenz entspricht WA1-Isolat (GeneBank-Zugangsnr.: BCN86353.1), Omicron-S-Protein-Sequenz Omicron ist Klade GRA, Abstammungslinie B.1.1.529 BA.1 basierend auf der GISAID-Datenbank ( https://www.gisaid.org/ (abgerufen am 15. März 2022)). Aminosäuresubstitutionen sind entsprechend ihrer Hydropathie- und Ladungseigenschaften farblich gekennzeichnet (rosa=hydrophob, grün=neutral, hellblau=basisch hydrophil und hellrot=sauer hydrophil).
3. Diskussion
Der vektorbasierte Impfstoff Gam-COVID-Vac, auch Sputnik-V genannt, war einer der ersten SARS-CoV-2-Impfstoffe, der für den Einsatz in der klinischen Praxis verfügbar wurde. Es liegen jedoch relativ wenige Informationen über die Feinspezifität der Antikörperreaktionen bei Personen vor, die mit COVID geimpft wurden-19. In dieser Studie führten wir eine detaillierte Analyse der Antikörperreaktionen auf mikroarrayierte gefaltete und ungefaltete SARS-CoV-2-Proteine und Peptide durch, die das S-Protein in Plasmaproben von SARS-CoV-2--naiven und rekonvaleszenten Probanden umfassen eine vollständige Impfung mit Gam COVID-Vac. Gam-COVID-Vac induzierte in vergleichbarer Weise bei naiven und rekonvaleszenten Probanden hauptsächlich IgG1, aber keine anderen IgG-Unterklassenreaktionen auf gefaltetes S, S1, S2 und RBD, was darauf hinweist, dass es zur Verstärkung von SARS-CoV verwendet werden kann-2- spezifische Antikörperreaktionen auch bei Rekonvaleszenten. Wie bei anderen genetischen Impfstoffen lag die durch Gam-COVID-Vac induzierte Antikörperantwort hauptsächlich in der IgG1-Unterklasse, die im Vergleich zu einer nachhaltigeren IgG4-Unterklasse-Reaktion eine kürzere Halbwertszeit aufweist. Beispielsweise sind spezifische Reaktionen der IgG4-Unterklasse mit einem langfristigen Schutz während einer allergenspezifischen Immuntherapie verbunden, wohingegen spezifische IgG1-Reaktionen schnell aufbauen, aber nach einigen Monaten wieder abklingen [28–30]. Dementsprechend sind häufige Auffrischimpfungen von Gam-COVID-Vac und anderen genetischen Impfstoffen erforderlich, um die neutralisierenden Antikörperreaktionen auf einem hohen Niveau zu halten. Die Impfung mit Gam-COVID-Vac induziert eine Antikörperreaktion, die weitgehend derjenigen nach einer natürlichen Infektion mit SARS-CoV ähnelt-2 [13]. Darüber hinaus gehören Antikörperreaktionen nach einer natürlichen Infektion hauptsächlich zur IgG1-Unterklasse und richten sich gegen gefaltetes S, S1, S2 und RBD [13]. Das neue und interessante Ergebnis unserer Studie war, dass Plasma von mehreren mit Gam-COVID-Vac geimpften Probanden (z. B. von den Probanden 6, 10, 12, 13, 16, 20; Tabelle 2) eine virusneutralisierende Aktivität zeigte, die jedoch nicht hemmte RBD-ACE2-Interaktion. Wir analysierten daher die Reaktivität von IgG-Antikörpern gegenüber den Peptiden, die das gesamte S-Protein umspannen, durch Mikroarray-basierte Chipanalyse [13] (Abbildungen 2D und S4) und korrelierten peptidspezifische IgG-Antworten mit der Virusneutralisierung des Wuhan-Hu{{62} } Stamm und Omicron BA.1 (Abbildung 2D). IgG-Reaktionen auf drei Peptide (d. h. Peptide 12, 32, 46A), wie z. B. IgG-Reaktionen auf RBD, korrelierten signifikant mit der Neutralisierung des Wuhan-Hu-1-Stammes (Abbildung 2C, D). Allerdings war Peptid 12 einzigartig, da die Antikörperreaktionen nur auf Peptid 12, nicht aber auf die Peptide 32 und 46A durch die Impfung signifikant verstärkt wurden (Abbildung 3A) und auch signifikant mit der Neutralisierung von Omicron korrelierten (Abbildung 2D). Das Ausmaß der impfstoffinduzierten Verstärkung der IgG-Reaktionen auf Peptid 12 war bescheiden, aber bei naiven Probanden signifikant und durchaus vergleichbar mit der Verstärkung von IgG-Antikörpern gegen S und S1. IgG-Antikörper gegen das isolierte ungefaltete Peptid (Abbildung S1) stellen jedoch möglicherweise nur einen Teil der Antikörper dar, die gegen Peptid 12 im gefalteten Protein gerichtet sind. Darüber hinaus sind nicht nur die Spiegel, sondern auch die Avidität der Antikörper wichtig. Die Sequenz der Peptide 12 ist beim Wuhan-Hu-1-Stamm und BA.1 Omicron VOC (Abbildung 4) hoch konserviert und stammt aus einer Region, die für den Übergang von der Prä- zur Post-Fusion relevant sein könnte Konformation des S-Proteins (Abbildung 3B). Darüber hinaus zeigt der Vergleich neuer mutierter Varianten von Omicron (BA.1, BA.2, BA.4/5, BA.2.12.1, BA.2.75, BQ.1), dass Peptid 12 (284–313 aa. ) bleibt hinsichtlich der Aminosäuresequenz unverändert, im Gegensatz beispielsweise zu Peptid 32 (https://covariants.org/shared-mutations, (abgerufen am 28. November 2022)). Insbesondere wurden monoklonale Antikörper mit virusneutralisierender Fähigkeit beschrieben, die auf die Region der N-terminalen Domäne (NTD) abzielen, zu der Peptid 12 gehört [31], und es wurde berichtet, dass auch andere Impfstoffe eine gegen diese Region gerichtete Antikörperreaktion auslösen können [18–20,32], was darauf hinweist, dass die durch Peptid 12 definierte Region für die Induktion neutralisierender Antikörper wichtig sein könnte. Man kann daher davon ausgehen, dass durch die Gam-COVID-Vac-Impfung induzierte Antikörper SARS-CoV-2 durch zwei Mechanismen neutralisieren können, zum einen durch die einfache Hemmung der RBD-ACE2-Wechselwirkung und zum anderen durch das Angreifen der Region, die Peptid 12 des S- enthält. Protein, das an strukturellen Veränderungen beteiligt sein kann (d. h. Übergang von der Vorfusionskonformation in die Fusionskonformation von S). Unsere Studie weist Einschränkungen auf. Beispielsweise haben wir einen Neutralisationstest auf Basis pseudotypisierter Lentiviren verwendet, aber diese Tests sind weit verbreitet und zuverlässig [33]. Es stellt auch eine Einschränkung unserer Studie dar, dass Peptide auf unserem Mikroarray entfaltet waren und daher möglicherweise nur ein Bruchteil der neutralisierenden Antikörper identifiziert wurde, die die entfalteten Peptide erkannten, während ein noch größerer Anteil der Antikörper möglicherweise an Konformationsepitope in den identifizierten gebunden war Region. Darüber hinaus besteht eine Einschränkung unserer Studie darin, dass wir nur eine kleine Anzahl von Probanden analysiert haben. Unsere Studie zeigt jedoch deutlich, dass Antikörper mit unterschiedlicher Epitopspezifität zur Schutzwirkung der Gam-COVID-Vac-Impfung beitragen können. Darüber hinaus zeigt die Studie eine Reaktion auf ein potenziell konserviertes Peptid, das zur Bildung breit neutralisierender Antikörper verwendet werden kann.

Vorteile von Cistanche-Ergänzungsmitteln – wie man das Immunsystem stärkt
4. Materialien und Methoden
4.1. Erklärung zur Studienpopulation und Ethik
Gesunde Probanden mit (n {{0}}) oder ohne (n=12) früheren SARS-CoV-2-Infektionen wurden im Dezember 2020 am National Research Center Institute of in die Studie aufgenommen Immunologie der Föderalen Medizinischen Biologischen Agentur Russlands (Ethiknummer: #12-1, 29. Dezember 2020). Alle Teilnehmer gaben eine schriftliche Einverständniserklärung ab. Eine frühere SARS-CoV-2-Infektion wurde entweder durch einen früheren positiven PCR-Test und Symptome von COVID-19 oder durch das Vorhandensein von SARS-CoV-2-spezifischen Antikörpern gegen das Nukleokapsid-Antigen und/oder bestätigt RBD- und/oder S-Antigen wie beschrieben [13]. Alle Probanden wurden im Abstand von drei Wochen intramuskulär mit zwei Dosen Sputnik-V (Gam-COVID-Vac, Biocard, Moskau, Russland) immunisiert. Blutproben wurden einen Tag vor der ersten Impfung (T0, Abbildung 1A) und 80 bis 85 Tage nach der ersten Impfung (T3, Abbildung 1A) entnommen.
4.2. Nachweis SARS-CoV-2-spezifischer Antikörperreaktionen
Die Immunglobulinreaktion von unbehandelten und von COVID{{0}} rekonvaleszenten Probanden wurde in Plasmaproben vor und nach der Immunisierung mit Sputnik-V beurteilt (Abbildung 1A). Spezifisches IgG gegen ein umfassendes Panel von SARS-CoV-2-Proteinen und 46 Peptiden (25–30-mere), die das S-Protein umspannen, wurde wie zuvor in 1:50 verdünnten Plasmaproben mittels Microarray-Chip-Technologie gemessen beschrieben [13]. Die Aminosäuresequenzen, die Anzahl der Aminosäuren und das Molekulargewicht für alle synthetischen Peptide auf dem Mikroarray-Chip sind in Tabelle 3 dargestellt. Für die Peptide 12 und 32 und RBD, exprimiert in Escherichia coli (E. coli) (entfaltet) und in Zellen der menschlichen embryonalen Niere 293 (HEK293) (gefaltet) werden Zirkulardichroismus(CD)-Spektren bereitgestellt (Abbildung S1). Die Peptide 12 und 32 zeigten keine spezifische Sekundärstruktur, wie durch Zirkulardichroismus (CD) bestimmt, wie in Abbildung S1 gezeigt. Im Detail wurden Glasobjektträger, die Mikroarrays enthielten, die von einem Epoxidrahmen umgeben waren (Paul Marienfeld GmbH & Co. KG, Lauda-Königshofen, Deutschland), mit einem aminreaktiven komplexen organischen Polymer, MCP-2 (Lucidant Polymers, Sunnyvale, CA), aktiviert , USA), um die Bindung von Proteinen und Peptiden zu erleichtern. SARS-CoV-2-Antigene/Peptide wurden mit einer Konzentration von 0,5–1 mg/ml in (75 mM Na2HPO4, pH=8,4) in dreifacher Ausfertigung mit einem SciFlexArrayer S12 (Scienion AG, Berlin, Deutschland) [13]. Die Expression und Reinigung von Proteinen sowie die Peptidsynthese werden in [13] beschrieben. Die Reaktivität von IgG-Antikörpern gegenüber Mikroarray-Antigenen wurde gemessen, indem die Mikroarrays zunächst 5 Minuten lang mit phosphatgepufferter Kochsalzlösung mit 0,5 % Tween 20 (PBST) gewaschen und dann durch Zentrifugation unter Verwendung einer Sigma 2–7-Zentrifuge und MTP-11113 getrocknet wurden. Rotor (beide Sigma Laborzentrifugen GmbH, Osterode am Harz, Deutschland). Dann wurden 35 µL-Aliquots von 1:50 verdünnten Plasmaproben (Probenverdünner, Thermofisher, Waltham, MA, USA) zugegeben und 2 Stunden lang bei 22 °C inkubiert. Nach einem weiteren Waschschritt wurden 30 µL sekundärer Antikörper (DyLight 550 (Pierce, Rockford, IL, USA) markiertes Anti-Human-IgG (Jackson ImmunoResearch Laboratories, West Grove, PA, USA)) aufgetragen und 30 Minuten bei 22 °C inkubiert C RT. Anschließend wurden die Chips gewaschen, getrocknet und anschließend mit einem konfokalen Laserscanner (Tecan, Männedorf, Schweiz) gescannt. Die Bildanalyse wurde mit der Microarray-Bilderfassungs- und Analysesoftware MAPIX (Innopsys, Carbonne, Frankreich) durchgeführt und die Umrechnung der gemessenen Fluoreszenzeinheiten in ISAC-standardisierte Einheiten (ISU) erfolgte wie beschrieben [13]. Spezifische Antikörperspiegel werden in ISAC-standardisierten Einheiten (ISU) ausgedrückt. S- und RBD-spezifische IgG1–4-Antikörperreaktionen wurden in Plasmaproben (1:50 verdünnt) in Duplikaten durch ELISA gemessen, wie zuvor beschrieben [13] mit einer Variation von<5% for their average values.
Tabelle 3. Synthetische SARS-CoV-2-Spike-Protein-abgeleitete Peptide §.

4.3. Spektren des Fern-UV-Zirkulardichroismus (CD).
Für Peptide, P12 und P32 sowie RBD, die in E. coli- und HEK293-Zellen exprimiert wurden, wurde eine CD-Analyse unter Verwendung eines zuvor beschriebenen Jasco J-180-Spektropolarimeters (Japan Spectroscopic Co., Tokio, Japan) durchgeführt (34). CD-Spektren von Peptiden und Proteinen (Abbildung S1) wurden bei einer Konzentration von 0,1 mg/ml in 10 mM NaH2PO4 (pH 8,0) gemessen, die zum Spotten der Antigene verwendet wurde.
4.4. Pseudovirus-basierter Virusneutralisationstest (PVT)
Die Virusneutralisierungsaktivität in Plasmaproben wurde durch einen Pseudovirus-basierten Virusneutralisierungstest wie zuvor beschrieben bestimmt [35]. Um SARS-CoV-2-Spike-Virus-ähnliche Partikel (VLPs) zu produzieren, wurden HEK293T-Zellen mit drei Plasmiden co-transfiziert: dem lentiviralen Verpackungsplasmid pCMV∆8.2R (Addgene, Teddington, UK), pUCHR-GFP und a pCAGGS-S∆19-Plasmid, das für das Wildtyp-SARS-CoV-2-Spike-Protein kodiert (identisch mit den Referenz-Wuhan-Hu-1- und WA1-Isolaten) oder pCAGGS-S∆19-Om-Plasmid Kodierung des SARS-CoV-2-Omicron-Spike-Proteins (freundliches Geschenk von Andrey Gorchakov, Labor für Immungenetik, Institut für Molekular- und Zellbiologie, Sibirische Zweigstelle der Russischen Akademie der Wissenschaften, Nowosibirsk, Russland). Vor der Verwendung in pVNT wurden VLPs durch Grenzverdünnung titriert und 4 Tage lang mit hACE2-transfizierten HEK293T-Zellen inkubiert. Zur Verwendung im Test wurde eine Dosis viraler Partikel ausgewählt, die 50 % grün fluoreszierendes Protein (GFP)-positive Zellen ergab. Für pVNT wurden alle Plasmaproben vor der Verwendung 30 Minuten lang bei 56 °C hitzeinaktiviert. Am 4. Tag wurden die Zellen nach der Infektion erneut suspendiert und der Prozentsatz der GFP-positiven Zellen wurde mittels Durchflusszytometrie gemessen. Die ID50-Werte wurden mithilfe einer Sigmoidalkurve (Software GraphPad Prism 9.2.0, Sigmoidal, 4PL) berechnet und anhand des Prozentsatzes der Neutralisierung bei den verschiedenen angegebenen Plasmakonzentrationen rekonstruiert.
4.5. Molekularer Interaktionsassay (MIA)
Um die Fähigkeit von Plasmaproben von COVID{{0}} rekonvaleszenten oder naiven Probanden (Tabelle 1) vor und nach der Sputnik-V-Immunisierung zu ermitteln, die Bindung von 50 ng/ml zu hemmen RBD-hu-1 zum ACE2-Rezeptor wurde ein molekularer Interaktionstest (MIA) wie beschrieben durchgeführt [13,36–39]. Mit diesem Assay kann die Hemmung der RBD-ACE2-Wechselwirkung durch Antikörper oder andere Verbindungen gemessen werden, die markiertes RBD gegenüber ELISA-Platten-gebundenem ACE2 hemmt [38]. Kurz gesagt, rekombinantes ACE-2 (GenScript, Piscataway, NJ, USA) wurde über Nacht auf NUNC Maxisorb 96-Well-Platten (Thermofisher) aufgetragen (2 µg/ml). Danach wurden drei Waschzyklen mit Waschpuffer durchgeführt und die Platten anschließend 3 Stunden lang bei RT mit Blockierungspuffer blockiert. Serumproben wurden 1:2 in PBS, 0,05 % Tween 20, 1 % BSA verdünnt und 2 Stunden lang mit 50 ng His-markiertem rekombinanten RBD (GenScript) vorinkubiert. Dann wurden die vorinkubierten Serumproben 3 Stunden lang zu den Platten mit ACE-2 gegeben und die Platten wurden gewaschen und über Nacht mit einem 1:1000 verdünnten monoklonalen Maus-Anti-His-Tag-Antikörper (Dianova, Hamburg, Deutschland) inkubiert. . Nach 3 Waschschritten wurde 1:1000 verdünnter HRP-gebundener Anti-Maus-IgG1-Antikörper (GE Healthcare, Chicago, IL, USA) 2 Stunden lang zugegeben und der Nachweis mit ABTS durchgeführt. Die mittleren Werte der optischen Dichte (OD), die dem gebundenen RBD entsprechen, wurden bei 405 nm und 492 nm (Referenz) in einem TECAN Infinite F5 ELISA-Lesegerät mit der integrierten Software i-control 2.0 (Tecan Group Ltd., Männedorf, Schweiz) gemessen. Die Pufferkontrolle (Overlay ohne RBD) wurde von jedem Ergebnis abgezogen. Die Bestimmungen wurden in Doppelbestimmungen durchgeführt und die Ergebnisse werden als Mittelwerte mit einer Variation von angezeigt<5%.

Vorteile von Cistanche-Ergänzungsmitteln – wie man das Immunsystem stärkt
4.6. Visualisierung von Peptiden in der Spike-Proteinstruktur
Die Oberflächendarstellung des SARS-CoV-2-Spike-Proteins wurde in PyMOL (PyMOL Molecular Graphics System, Version 2.5.0a0, Schrödinger, LLC, New York, NY, USA) erstellt auf dem PDB-Eintrag 6XR8.
4.7. Statistische Analyse
Die statistische Analyse wurde mit GraphPad Prism (Version 9.2.0 GraphPad Software, La Jolla, Kalifornien) durchgeführt. Zum Vergleich zwischen zwei oder mehreren Gruppen wurden der Wilcoxon-Test (Abbildungen 1C, D und 3A), der Mann-Whitney-Test (Abbildungen 2B und S3) und der Friedman-Test (Abbildung S2) verwendet. p < 0.05 wurde als statistisch signifikant angesehen. Die Korrelation zwischen den beiden Gruppen wurde durch den Spearman-Rangtest bestimmt (Abbildung 2D). Eine normalisierte nichtlineare Regression wurde mit der GraphPad Prism-Software (Sigmoidal 4PL) durchgeführt. Die Daten werden als Median ± IQR dargestellt. Sternchen zeigen signifikante Unterschiede zwischen Gruppen an, * p < 0.05, ** p < 0.01, *** p < 0,001, **** p < 0,0001, ns – nicht signifikant.
5. Schlussfolgerungen
Zusammenfassend ist unsere Studie die erste, die die Epitop- und IgG-Subklassenspezifität von durch Gam-COVID-Vac induzierten Antikörpern eingehend untersucht und verschiedene Mechanismen der Gam-COVID-Vac-induzierten Virusneutralisierung durch Antikörper aufdeckt. Insbesondere haben wir Beweise dafür erhalten, dass Antikörper, die gegen ein Peptid (dh Peptid 12) gerichtet sind, das sich in der Nähe, aber außerhalb von RBD im N-terminalen Teil von S1 befindet, mit der Virusneutralisierung verbunden sind. Die potenziell virusneutralisierende Aktivität von Peptid-12-spezifischen Antikörpern könnte auf ihrer Fähigkeit beruhen, den Übergang von der Prä- zur Postfusionskonformation des Spike-Proteins zu stören. Wir schlagen vor, den Einschluss der durch Peptid 12 definierten Region in einer immunogenen Form in Impfstoffe in Betracht zu ziehen, um Antikörper gegen diesen Epitopbereich zu induzieren und um durch solche Impfstoffe induzierte Antikörper auf Virusneutralisierung zu testen. Für den Fall, dass die Virusneutralisierung von Impfstoffen verbessert werden kann, kann der Einschluss eines immunogenen Peptids mit 12 Epitopen die Wirksamkeit von COVID-19-Impfstoffen verbessern. Darüber hinaus könnte man die Entwicklung von Antikörpern gegen das durch das Peptid 12-definierte Epitop für die passive Immunisierung in Betracht ziehen. Da das durch das Peptid 12-definierte Epitop in derzeit bekannten SARS-CoV-2-Varianten konserviert ist, können Impfstoffe und Antikörper, die gegen das Peptid 12 gerichtet sind, einen Kreuzschutz gegen SARS-CoV-2-Varianten bieten. Wir stellen somit neues Wissen bereit, das für die Entwicklung neuartiger aktiver und passiver Impfstrategien gegen COVID hilfreich sein kann-19.
Verweise
1. Rodriguez-Coira, J.; Sokolowska, M. SARS-CoV-2-Impfstoffkandidaten – Zusammensetzung, Wirkmechanismen und Stadien der klinischen Entwicklung. Allergie 2021, 76, 1922–1924. [CrossRef] [PubMed]
2. Sharma, A.; Ahmad, FI; Lal, SK COVID-19: Ein Überblick über die Entwicklung, Übertragung, Erkennung, Kontrolle und Prävention neuartiger Coronavirus-Erkrankungen. Viren 2021, 13, 202. [CrossRef] [PubMed]
3. Arshad, B.; Iqbal, T.; Bhatti, KP Review – Einblicke in Off-Label-Therapiestrategien gegen leichte und schwere COVID-19-Infektionen. Pak. J. Pharm. Wissenschaft. 2021, 34, 1469–1484. [CrossRef] [PubMed]
4. Zaman, W.; Saqib, S.; Ullah, F. COVID-19: Phylogenetische Ansätze können dabei helfen, Ressourcen für eine natürliche Heilung zu finden. Phytother. Res. 2020, 34, 2783–2785. [CrossRef]
5. Rubio-Casillas, A.; Redwan, EM; Uversky, VN SARS-CoV-2 Intermittierende Virulenz als Ergebnis natürlicher Selektion. COVID 2022, 2, 1089–1101. [CrossRef]
6. Logunov, DY; Dolzhikova, IV; Zubkova, OV Sicherheit und Immunogenität eines auf rAd26- und rAd5-Vektoren basierenden heterologen Prime-Boost-COVID-19-Impfstoffs in zwei Formulierungen: Zwei offene, nicht randomisierte Phase-1/2-Studien aus Russland. Lancet 2020, 396, 887–897, Korrektur in Lancet 2021, 397, 98. [CrossRef]
7. Folegatti, PM; Ewer, KJ; Aley, PK Sicherheit und Immunogenität des ChAdOx1 nCoV-19-Impfstoffs gegen SARS-CoV-2: Ein vorläufiger Bericht einer einfach verblindeten, randomisierten, kontrollierten Phase-1/2-Studie. Lancet 2020, 396, 467–478, Korrektur in Lancet 2020, 396, 1884. [CrossRef]
8. Logunov, DY; Dolzhikova, IV; Shcheblyakov, DV Sicherheit und Wirksamkeit eines auf rAd26- und rAd5-Vektoren basierenden heterologen Prime-Boost-COVID-19-Impfstoffs: Eine Zwischenanalyse einer randomisierten kontrollierten Phase-3-Studie in Russland. Lancet 2021, 397, 671–681, Korrektur in Lancet 2021, 397, 670. [CrossRef]
9. Jackson, CB; Farzan, M.; Chen, B.; Choe, H. Mechanismen des Eintritts von SARS-CoV-2 in Zellen. Nat. Rev. Mol. Zellbiol. 2022, 23, 3–20. [CrossRef]
10. Heinz, FX; Stiasny, K. Unterscheidungsmerkmale aktueller COVID-19-Impfstoffe: Bekanntes und Unbekanntes der Antigenpräsentation und Wirkweisen. NPJ Vaccines 2021, 6, 104. [CrossRef]
11. Lim, HX; Masomian, M.; Khalid, K.; Kumar, AU; MacAry, PA; Poh, CL Identifizierung von B-Zell-Epitopen zur Erzeugung neutralisierender Antikörper gegen das SARS-CoV-2-Spike-Protein durch Bioinformatik und monoklonale Antikörper-Targeting. Int. J. Mol. Wissenschaft. 2022, 23, 4341. [CrossRef]
12. Moroy, G.; Tuffery, P. Peptidbasierte Strategien gegen SARS-CoV-2-Angriffe: Eine aktualisierte In-Silico-Perspektive. Vorderseite. Arzneimittel. Entdeckung. 2022, 2, 899477. [CrossRef]
13. Gattinger, P.; Niespodziana, K.; Stiasny, K. Die Neutralisierung von SARS-CoV-2 erfordert Antikörper gegen konformationelle Epitope der Rezeptorbindungsdomäne. Allergie 2022, 77, 230–242. [CrossRef]
14. Niu, L.; Wittrock, KN; Clabaugh, GC Eine strukturelle Landschaft neutralisierender Antikörper gegen die SARS-CoV-2-Rezeptorbindungsdomäne. Vorderseite. Immunol. 2021, 12, 647934. [CrossRef]
15. Shan, S.; Mok, CK; Zhang, S. Ein wirksamer und schützender humanneutralisierender Antikörper gegen SARS-CoV-2-Varianten. Vorderseite. Immunol. 2021, 12, 766821. [CrossRef]
16. Bajpai, P.; Singh, V.; Chandele, A. Breit neutralisierende Antikörper gegen SARS-CoV-2 liefern neue Einblicke in die Neutralisierung von Varianten und anderen menschlichen Coronaviren. Vorderseite. Zelle. Infizieren. Mikrobiol. 2022, 12, 928279. [CrossRef]
17. Vishwakarma, P.; Yadav, N.; Rizvi, ZA, Schweres Akutes Respiratorisches Syndrom Coronavirus 2 Spike-Protein-basierte neuartige Epitope induzieren starke Immunantworten in vivo und hemmen die Virusreplikation in vitro. Vorderseite. Immunol. 2021, 12, 613045. [CrossRef]
18. Garrett, ME; Galloway, JG; Wolf, C. Umfassende Charakterisierung der Antikörperreaktionen auf SARS-CoV-2 Spike-Protein findet zusätzliche impfstoffinduzierte Epitope über diejenigen für eine leichte Infektion hinaus. eLife 2022, 11, e73490. [CrossRef]
19. Peng, M.; Dou, X.; Zhang, Vorderseite. Immunol. 2022, 13, 938378. [CrossRef]
20. Polvere, I.; Parrella, A.; Zerillo, L. Humorale Immunantwortvielfalt auf verschiedene COVID-19-Impfstoffe: Auswirkungen auf die „Green Pass“-Richtlinie. Vorderseite. Immunol. 2022, 13, 833085. [CrossRef]
21. Tukhvatulin, AI; Dolzhikova, IV; Shcheblyakov, DV Eine offene, nicht randomisierte Phase-1/2-Studie zur Sicherheit, Verträglichkeit und Immunogenität des Einzeldosis-Impfstoffs „Sputnik Light“ zur Vorbeugung einer Coronavirus-Infektion bei gesunden Erwachsenen. Lancet Reg. Gesundheit Eur. 2021, 11, 100241. [CrossRef] [PubMed]
22. Gonzalez, S.; Olszevicki, S.; Salazar, M. Wirksamkeit der ersten Komponente von Gam-COVID-Vac (Sputnik V) auf die Reduzierung von SARS-CoV-2 bestätigten Infektionen, Krankenhausaufenthalten und Mortalität bei Patienten im Alter von 60–79 Jahren: Eine retrospektive Kohortenstudie in Argentinien. EClinicalMedicine 2021, 40, 101126. [CrossRef] [PubMed]
23. Gushchin, VA; Dolzhikova, IV; Shchetinin, AM neutralisierende Aktivität von Seren von mit Sputnik V geimpften Personen gegen besorgniserregende Varianten (VOC: B.1.1.7, B.1.351, P.1, B.1.617.2, B.1.617.3) und das in Moskau endemische SARS -CoV-2-Varianten. Impfstoffe 2021, 9, 779. [CrossRef] [PubMed]
24. Voko, Z.; Kiss, Z.; Surjan, G. Landesweite Wirksamkeit von fünf SARS-CoV-2-Impfstoffen in Ungarn – die HUN-VE-Studie. Klin. Mikrobiol. Infizieren. 2022, 28, 398–404. [CrossRef] [PubMed]
25. Jeewandara, C.; Fernando, S.; Pushpakumara, PD Immunantworten nach der ersten Dosis von Sputnik V (Gam-COVID-Vac). Wissenschaft. Rep. 2022, 12, 1727. [CrossRef]
26. Ikegame, S.; Siddiquey, MNA; Hung, CT Neutralisierende Aktivität von Sputnik V-Impfstoffseren gegen SARS-CoV-2-Varianten. Nat. Komm. 2021, 12, 4598. [CrossRef]
27. Gushchin, VA; Tsyganova, EV; Ogarkova, DA Sputnik V-Schutz vor COVID-19 bei Menschen mit HIV unter antiretroviraler Therapie. EClinicalMedicine 2022, 46, 101360. [CrossRef]
28. Shamji, MH; Valenta, R.; Jardetzky, T. Die Rolle von allergenspezifischem IgE, IgG und IgA bei allergischen Erkrankungen. Allergie 2021, 76, 3627–3641. [CrossRef]
29. Eckl-Dorna, J.; Weber, M.; Stanek, V. Eine zweijährige Behandlung mit dem rekombinanten Gräserpollenallergie-Impfstoff BM32 induziert eine kontinuierlich zunehmende allergenspezifische IgG4-Reaktion. EBioMedicine 2019, 50, 421–432. [CrossRef]
30. Shamji, MH; Kappen, JH; Akdis, M. Biomarker zur Überwachung der klinischen Wirksamkeit der Allergenimmuntherapie bei allergischer Rhinokonjunktivitis und allergischem Asthma: Ein Positionspapier der EAACI. Allergy 2017, 72, 1156–1173. [CrossRef]
31. Tortorici, MA; Beltramello, M.; Lempp, FA Ultrapotente menschliche Antikörper schützen über mehrere Mechanismen vor der SARS-CoV-2-Herausforderung. Wissenschaft 2020, 370, 950–957. [CrossRef]
32. Cia, G.; Pucci, F.; Rooman, M. Analyse der neutralisierenden Aktivität von Antikörpern, die auf offene oder geschlossene SARS-CoV-2-Spike-Proteinkonformationen abzielen. Int. J. Mol. Wissenschaft. 2022, 23, 2078. [CrossRef]
33. Meng, B.; Datir, R.; Choi, J. Die N-terminale Spike-Domäne von SARS-CoV-2 moduliert den TMPRSS2-abhängigen Viruseintritt und die Fusogenität. Cell Rep. 2022, 40, 111220. [CrossRef]
34. Resch, Y.; Weghofer, M.; Seiberler, S. Molekulare Charakterisierung von Der p 10: Ein diagnostischer Marker für eine breite Sensibilisierung bei Hausstaubmilbenallergie. Klin. Exp. Allergy 2011, 41, 1468–1477. [CrossRef]
35. Byazrova, M.; Yusubalieva, G.; Spiridonova, A. Muster der zirkulierenden SARS-CoV-2-spezifischen Antikörpersekretion und Gedächtnis-B-Zellen-Generierung bei Patienten mit akutem COVID-19. Klin. Übers. Immunol. 2021, 10, e1245. [CrossRef]
36. Gattinger, P.; Borochova, K.; Dorofeeva, Y. Antikörper im Serum rekonvaleszenter Patienten nach mildem COVID-19 verhindern nicht immer die Virus-Rezeptor-Bindung. Allergie 2021, 76, 878–883. [CrossRef]
37. Gattinger, P.; Tulaeva, I.; Borochova, K. Omicron: Eine SARS-CoV-2-Variante, die wirklich Anlass zur Sorge gibt. Allergie 2022, 77, 1616–1620. [CrossRef]
38. Gattinger, P.; Ohradanova-Repic, A.; Valenta, R. Bedeutung, Anwendungen und Merkmale von Assays zur Messung neutralisierender SARS-CoV-2-Antikörper. Int. J. Mol. Wissenschaft. 2023, 24, 5352. [CrossRef]
39. Gattinger, P.; Kratzer, B.; Tulaeva, I.; Niespodziana, K.; Ohradanova-Repic, A.; Gebetsberger, L.; Borochova, K.; Garner-Spitzer, E.; Trapin, D.; Hofer, G.; et al. Ein Impfstoff, der auf einem gefalteten Rezeptorbindungsdomänen-PreS-Fusionsprotein basiert und das Potenzial hat, eine sterilisierende Immunität gegen SARS-CoV-2-Varianten zu induzieren. Allergie 2022, 77, 2431–2445. [CrossRef]