Der Anteil an Kraftfutter in der Ernährung frühlaktierender Milchkühe hat je nach Parität gegensätzliche Auswirkungen auf die globalen transkriptomischen Profile der zirkulierenden Leukozyten, die Gesundheit und die Fruchtbarkeit
Dec 26, 2023
Abstrakt:Die Funktionalität zirkulierender Leukozyten ist bei Milchkühen nach dem Abkalben beeinträchtigt, wobei eine negative Energiebilanz ein Risikofaktor ist. Die transkriptomischen Leukozytenprofile wurden separat bei 44 multiparen (MP) und 18 erstgebärenden (PP) Holstein-Friesian-Kühen verglichen, die Futter mit unterschiedlichem Kraftfutteranteil erhielten, um zu testen, ob eine Immunschwäche durch geeignete Ernährung gemildert werden kann. Nach dem Kalben wurde den Kühen entweder (1) niedriges Kraftfutter (LC); (2) Futter mit mittlerem Konzentrat (MC) oder (3) Futter mit hohem Konzentrat (HC) mit Anteilen von Konzentrat zu Grassilage von 30 %:70 %, 50 %:50 % bzw. 70 %:30 %. Zu den gesammelten Daten zum Kuhphänotyp gehörten zirkulierende Metaboliten, Milchleistung sowie Gesundheits- und Fruchtbarkeitsdaten. Es wurde eine RNA-Sequenzierung zirkulierender Leukozyten nach 14 Tagen in der Milch durchgeführt. Die HC-Diät verbesserte die Energiebilanz in beiden Altersgruppen. Bei PP-Kühen gab es mehr unterschiedlich exprimierte Gene als bei MP-Kühen (460 vs. 173, HC vs. LC-Vergleich) mit wenigen Überlappungen. Die MP-Kühe auf der LC-Diät zeigten eine Hochregulierung der Komplement- und Gerinnungskaskade sowie der angeborenen Immunabwehrmechanismen gegen Krankheitserreger und zeigten tendenziell mehr Fälle von Mastitis und eine schlechtere Fruchtbarkeit. Im Gegensatz dazu zeigten die PP-Kühe mit der HC-Diät stärkere Immunreaktionen, basierend auf Genexpressions- und phänotypischen Daten sowie einem längeren Zeitraum vom Kalben bis zur Empfängnis. Die Leukozyten von MP- und PP-Kühen reagierten daher je nach Alter, Nährstoffversorgung und Immunität unterschiedlich auf die Ernährung, was sich auf ihre Gesundheit und die anschließende Fruchtbarkeit auswirkte.

Vorteile von Cistanche für Männer: Stärkung des Immunsystems
Klicken Sie hier, um die Produkte von Cistanche Enhance Immunity anzusehen
【Fragen Sie nach mehr】 E-Mail:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Schlüsselwörter:postpartale Immunsuppression; angeborene Immunität; Stoffwechsel; Leukozyten; Stilldiäten; Transkriptom; Reproduktion; Kühe
1. Einleitung
Früh nach der Geburt sind Milchkühe durch eine Immunsuppression gekennzeichnet, die sich auf die angeborene und adaptive Immunität auswirkt, einschließlich sowohl der zellvermittelten als auch der humoralen Immunität. Bei Entzündungen werden zirkulierende Leukozyten in Gewebe wie die Brustdrüse und das Endometrium rekrutiert. Frühere Studien haben jedoch eine Verringerung sowohl der Leukozytenzahl als auch ihrer Funktionsfähigkeit während der Peripartalperiode gezeigt [1,2]. Zu den berichteten Auswirkungen gehören eine beeinträchtigte Phagozytose und oxidative Burst-Aktivität [3–5], eine verminderte Reaktionsfähigkeit zirkulierender T-Zellen auf mitogene Wirkstoffe und eine verringerte Produktion von Immunglobulin durch B-Zellen [6,7]. Die Ursachen sind multifaktoriell, scheinen jedoch mit der Nährstoffverteilung zugunsten der Milchproduktion zu Beginn der Laktation zusammenzuhängen, wodurch die Immunfunktion beeinträchtigt wird [8–10]. Leukozyten benötigen für ihre Aufrechterhaltung und Funktionalität eine ausreichende Versorgung mit Glukose, verschiedenen Fettsäuren und Cholesterin oder Oxysterolen [8,11,12]. Die verfügbare Nährstoffversorgung wird jedoch nach dem Kalben der Milchdrüse vorrangig zugeführt und erfordert etwa 25 % mehr umsetzbare Energie und Proteine, als durch die Futteraufnahme bereitgestellt wird [8,13,14]. Darüber hinaus ist die Geburt durch entzündliche Prozesse gekennzeichnet, die mit Veränderungen in der Sekretion verschiedener Prostaglandine, Steroide und Zytokine sowie möglichen Verletzungen während des Entbindungsvorgangs selbst einhergehen [15–17]. Die Entzündungsreaktionen beim Kalben und die während der Gewebemobilisierung freigesetzten Metaboliten haben starke magersüchtige Wirkungen, wodurch die Aufnahme weiter sinkt und die negative Energiebilanz (NEB) verschlimmert wird [18]. Wenn die Futteraufnahme den steigenden Energiebedarf nicht decken kann, kommt es bei Kühen zu einer NEB-Phase, wobei einige Tiere in ein Stoffwechselungleichgewicht geraten [19–21]. NEB ist mit einer Insulinresistenz, einer verringerten Expression des hepatischen Wachstumshormonrezeptors (GH) und einer geringeren hepatischen IGF-1-Synthese verbunden [22,23]. Die Entkopplung von GH mit Insulin bei postpartalen Kühen ist eine Anpassung, die der Glukoseversorgung von Geweben wie Brustepithelzellen Priorität einräumt, in denen die Aufnahme unabhängig von Insulin erfolgt [8]. In dieser Situation ist der Wettbewerb um die Energieversorgung zwischen der Brustdrüse und dem Immunsystem unvermeidlich, da beide auf die gleichen essentiellen Substrate angewiesen sind und beide große Energieverbraucher sind. Kvidera et al. [24] zeigten, dass die Aktivierung einer vollständigen Immunantwort bei Kühen 2,5 bis 3,1 kg Glukose pro Tag erforderte. Dies entspricht dem geschätzten Bedarf von 2,7 kg/Tag an Glukose, die von Brustepithelzellen für eine Milchproduktion von 40 kg/Tag aufgenommen werden [8].
Die Gewebemobilisierung ist auch mit erhöhten zirkulierenden Konzentrationen von nicht veresterten Fettsäuren (NEFAs), Beta-Hydroxybutyrat (BHB) und verringertem IGF-1 verbunden, die alle zur Immunschwäche beitragen [5,9,10,20 ]. Unsere aktuelle Studie hat beispielsweise gezeigt, dass die Adhäsion von Leukozyten von Zelle zu Zelle gehemmt wurde, wenn die NEFA-Konzentration 750 µM überstieg [25]. Obwohl die Gewebemobilisierung eine normale Anpassung von Säugetieren zur Unterstützung der Laktation ist, haben viele Studien gezeigt, dass eine schwere NEB einen großen Einfluss auf die spätere Fähigkeit der Kuh hat, rechtzeitig schwanger zu werden [26]. Dies kann auf eine Vielzahl von Faktoren zurückzuführen sein, darunter Verzögerungen bei der Wiederherstellung einer geeigneten Uterusumgebung [2]; eine längere Anovulationsperiode [27], eine schlechte intrafollikuläre Umgebung [28] und eine beeinträchtigte Eizellenqualität [29]. Milchfärsen kalben im Allgemeinen mit etwa 90 % ihres ausgewachsenen Körpergewichts [30]. Unsere vorherige Studie zeigte, dass erstgebärende (PP) Kühe höhere Insulin-, IGF-1- und Leptinkonzentrationen in ihrem Kreislauf, niedrigere Konzentrationen von Blutmetaboliten (BHB, NEFAs und Harnstoff) und höhere Glukosekonzentrationen aufwiesen als multigebärende (MP). ) Kühe für mindestens 7 Wochen nach dem Abkalben [31,32]. Dies weist darauf hin, dass es in der frühen Laktation bei PP-Kühen im Vergleich zu MP-Kühen zu einer geringeren Entkopplung der somatotrophen Achse kommt, was mit einer schwächeren Priorisierung der Nährstoffe für die Milchdrüse einhergeht und so ein kontinuierliches Wachstum ermöglicht. Auch die Genexpressionsprofile in zirkulierenden Leukozyten unterscheiden sich zwischen PP- und MP-Kühen während der frühen Laktation [33].

Cistanche tubulosa – verbessert das Immunsystem
Die Optimierung des Ernährungsmanagements während der Trockenperiode kann die Trockenmasseaufnahme (DMI) erhöhen, das Auftreten peripartiver Erkrankungen verringern und die Fruchtbarkeit verbessern [34]. Es gibt allgemeine Richtlinien zur Reduzierung des Krankheitsrisikos im Zusammenhang mit der Fütterung und dem Management [35]. Es liegen jedoch nur wenige Informationen über Futterformulierungen für einzelne Kühe mit einem Stoffwechselungleichgewicht während der Zeit nach der Geburt vor, die die Immunfunktion verbessern, das Auftreten von Krankheiten verringern und die spätere Fortpflanzungsleistung verbessern können. Die Formulierung von Diäten mit einem hohen Nährstoffaufnahmepotenzial ist ein praktischer Ansatz [36]. In der vorliegenden Studie wurde Kühen in der frühen Laktation Futter mit niedrigem (LC), mittlerem (MC) oder hohem Konzentratgehalt (HC) angeboten, basierend auf den Anteilen von Konzentrat zu Grassilage und den Auswirkungen auf die Stoffwechselgesundheit und -krankheit sowie die systemische Immunität ( durch Beurteilung globaler zirkulierender Leukozyten-Genexpressionsprofile) wurden bestimmt. Die Daten von PP- und MP-Kühen wurden getrennt analysiert, um einen durch die Parität verursachten Störeffekt zu vermeiden. Unsere Hypothese war, dass die hochkonzentrierten Diäten die Immunfunktion verbessern und die Fruchtbarkeit fördern würden.

Cistanche tubulosa – verbessert das Immunsystem
2. Ergebnisse
2.1. Einfluss von Diäten auf die Trockenmasseaufnahme, die Milchleistung, die Energiebilanz und die Blutmetaboliten
Milchparameter, Körpergewicht (BW), DMI, Body Condition Score (BCS), Energiebilanz (EBAL) und Blutmetaboliten für MP- und PP-Kühe nach etwa 14 Tagen in der Milch (DIM) sind in Tabelle 1 zusammengefasst. DMI für Die MP-Kühe unterschieden sich signifikant zwischen den drei Futtergruppen in der Reihenfolge HC > MC > LC (p < 0.01–0.0{{11 }}1). Die Milchleistung der MP-Kühe, die die HC-Futter erhielten, war signifikant höher als die der LC-Futter (p < 0.05). Der Unterschied in der energiekorrigierten Milchleistung (ECM) zwischen der LC- und der HC-Gruppe war signifikant (p < 0.05), mit Zwischenwerten in der MC-Gruppe. Die EBAL-Werte in allen drei MP-Gruppen waren negativ, aber die der MC- und HC-Kühe waren signifikant besser (weniger negativ) als die der LC-Kühe (p < 0,01). Die zirkulierenden Konzentrationen von Glukose (p < 0,01) und IGF-1 (p < 0,001) waren bei den HC-Kühen signifikant höher als bei den LC-Kühen. Die MP-Kühe, denen HC-Futter verabreicht wurde, produzierten auch weniger zirkulierenden Harnstoff (p < 0,001), BHB (p < 0,05) und NEFAs als diejenigen, denen LC-Futter mit den Konzentrationen LC > MC > HC verabreicht wurde, obwohl die NEFA-Konzentrationen zwischen den Futtergruppen unterschiedlich waren waren statistisch nicht signifikant.
Tabelle 1. Gesamttrockenmasseaufnahme, Milchparameter, Körpergewicht, Energiebilanz, Körperkonditionswert und Blutmetaboliten etwa 14 Tage nach dem Kalben, analysiert nach Parität und Futter 1,2

Bei den PP-Kühen hatten diejenigen, die die MC- oder HC-Diät erhielten, einen höheren DMI als diejenigen, die die LC-Diät erhielten (p < {{0}}.01). Die Milcherträge unterschieden sich nicht wesentlich. Der EBAL war bei Kühen, denen MC- oder HC-Futter verabreicht wurde, positiv, wohingegen er bei Kühen, denen LC-Futter verabreicht wurde, negativ war. Die Unterschiede im EBAL zwischen HC- und LC-PP-Kühen waren signifikant (p < 0,05). Von den gemessenen Metaboliten unterschieden sich nur die Harnstoffkonzentrationen zwischen den Gruppen und waren bei den HC-Kühen niedriger (LC > MC > HC, p < 0,001 für LC vs. HC oder MC).
2.2. Einfluss von Diäten auf Entzündungsparameter
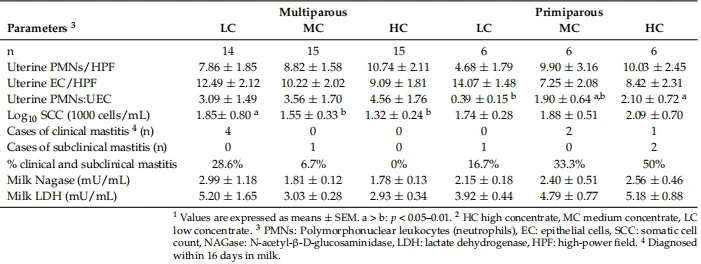
Die Auswirkungen der Ernährung auf die in der Gebärmutter und der Brustdrüse gemessenen Entzündungsparameter sind in Tabelle 2 dargestellt. Bei den PP-Kühen war das Verhältnis von polymorphkernigen Leukozyten zu Uterusepithelzellen (PMNs: UECs), die mit einer Zytobürste aus der Gebärmutter entnommen wurden, signifikant höher die Kühe auf der HC-Diät im Vergleich zur LC-Diät (p < 0.05). Bei den MP-Kühen ging der Trend in die gleiche Richtung, mit LC < MC < HC, erreichte aber keine statistische Signifikanz. In der Milch hatten die MP-Kühe auf der LC-Diät einen signifikant höheren SCC als diejenigen auf der MC- oder HC-Diät (p < 0.05), wohingegen bei den PP-Kühen der nicht signifikante Trend in die entgegengesetzte Richtung verlief . Die Konzentrationen von N-Acetyl- -d-glucosaminidase (NAGase) und Laktatdehydrogenase (LDH) in der Milch, Milchenzyme, die auf Mastitis hinweisen, folgten den gleichen allgemeinen Trends wie die SCC-Werte, es gab jedoch keine signifikanten Unterschiede. Diese Ergebnisse wurden durch die Gesundheitsakten gestützt. Bei den MP-Kühen mit der HC-Diät traten keine Fälle von Mastitis auf (0/15), wohingegen bei 4/14 (28,6 %) der Kühe mit der LC-Diät innerhalb von 16 Tagen nach dem Abkalben eine klinische Mastitis diagnostiziert wurde. Bei den PP-Kühen war der Trend wiederum in die entgegengesetzte Richtung: Eine von sechs Kühen (16,7 %) unter der LC-Diät hatte klinische Mastitis, verglichen mit einem Fall von klinischer und zwei von subklinischer Mastitis unter der HC-Diät (50 %).
Tabelle 2. Entzündungsparameter etwa 14 Tage nach dem Abkalben je nach Parität und Futter 1,2.
2.3. Fruchtbarkeitsdaten
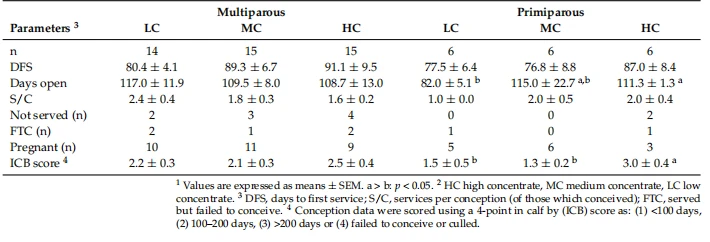
Einzelheiten zu den Fruchtbarkeitsdaten sind in Tabelle 3 aufgeführt. Bei den MP-Kühen dauerte die Empfängnis mit der LC-Diät etwas länger und erforderte mehr Leistungen pro Empfängnis als die HC-Kühe (2,4 ± 0,42 vs. 1,6 ± 0.23), obwohl mehr der HC-Kühe entweder nicht gedeckt wurden (eine Entscheidung des Managements) oder überhaupt nicht trächtig wurden (6{{10}}.0 % vs . 71,4 %). Keiner dieser Unterschiede war jedoch signifikant. Bei den PP-Kühen war das Gegenteil der Fall: Bei den LC-Kühen lag die Zeitspanne bis zur Empfängnis mit 29 Tagen am kürzesten (p < {{20}}.05), wobei fünf der sechs Tiere zum ersten Mal schwanger wurden . Im Gegensatz dazu wurde die Hälfte der HC-Gruppe entweder nicht versorgt (n=2) oder konnte nicht schwanger werden (n=1), wobei die drei, die schwanger wurden, 2,0 ± 0,41 Behandlungen pro Empfängnis benötigten. Dies führte dazu, dass die HC-Gruppe einen signifikant höheren ICB-Score (p < 0,05) aufwies.
Tabelle 3. Fruchtbarkeitsdaten nach Parität und Ernährung 1,2
2.4. Transkriptomische Leukozytenprofile bei Kühen boten unterschiedliche Konzentratanteile
Das Referenz-Rindergenom von ARS-UCD 1.2, bereitgestellt von RefSeq (https://www.ncbi.nlm.nih.gov/assembly, abgerufen am 1. Mai 2022), enthält 35.158 Gene, von denen 19.001 Leukozytengene zum Zeitpunkt der Sequenzierung quantifizierbar waren in den FASTQ-Dateien wurden ihm zugeordnet. Vulkandiagramme, die die Expressionsprofile sowohl der MP- als auch der PP-Kühe zeigen, die die drei verschiedenen Diäten erhielten, sind in Abbildung 1 dargestellt. Bei den MP-Kühen gab es 173 differentiell exprimierte Gene (DEGs) im Vergleich zwischen HC und LC, 126 zwischen MC und LC und 68 für HC vs. MC (Ergänzungsdatei S1A–C). Das Venn-Diagramm zeigte, dass in allen drei Ernährungsvergleichen kein Gen (gemeinsames DEG) signifikant war (Abbildung 2A). Bei den PP-Kühen gab es 460 DEGs im Vergleich von HC vs. LC, 178 zwischen MC vs. LC und 128 zwischen HC vs. MC (Ergänzungsdatei S2A–C). Nur ein gemeinsames Gen (DCN, Fold Change (FC)=−7,3) war in allen drei Ernährungsvergleichen signifikant (Abbildung 2B). Es kodiert für Decorin, ein Protein, das bei der Bildung von Kollagenfibrillen eine Rolle spielt. Insgesamt fiel auf, dass bei den Ernährungsvergleichen der Leukozyten-Genexpression bei den PP-Kühen trotz der kleineren Gruppengröße eine größere Anzahl von DEGs gefunden wurde als bei den MP-Kühen, wobei der Großteil dieser Gene bei der HC-Diät hochreguliert war. Darüber hinaus gab es kaum Überschneidungen bei den identifizierten Genen zwischen den verschiedenen Altersgruppen, wie in den Venn-Diagrammen in Abbildung 3 dargestellt. Dies lässt darauf schließen, dass die Futtermittel unterschiedliche Auswirkungen auf das Leukozyten-Transkriptom bei PP- und MP-Kühen hatten. In beiden Altersgruppen wurden die größten Unterschiede zwischen den Kühen festgestellt, denen LC- und HC-Futter verabreicht wurde, weshalb wir uns in den nachfolgenden Analysen auf diesen Vergleich konzentrierten.

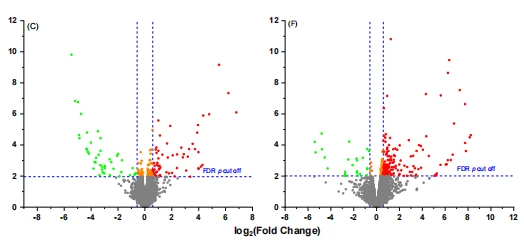
Abbildung 1. Vulkandiagramme zeigen die Expressionsprofile sowohl bei den MP- als auch bei den PP-Kühen, die drei verschiedene Diäten erhielten. (A) MP-Kühe HC vs. LC, (B) MP-Kühe HC vs. MC, (C) MP-Kühe MC vs. LC, (D) PP HC vs. LC, (E) PP HC vs. MC und (F ) PP MC vs. LC. HC: hohes Konzentrat (n=6 bei PP-Kühen und n=14 bei MP-Kühen), MC: mittleres Konzentrat (n=5 bei PP-Kühen und n=15 bei MP-Kühen ) und LC: niedriges Kraftfutter (n=6 bei PP-Kühen und n=14 bei MP-Kühen). Die Fold-Änderungen wurden log2-transformiert. Die grünen Punkte zeigen die herunterregulierten Gene mit p (BH) < 0.05 und Faltungsänderungen kleiner oder gleich –1,5 an und die roten Punkte zeigen hochregulierte Gene mit p (BH) < {{ 16}}.05 und Fold-Änderungen größer oder gleich 1,5. Die orangefarbenen Punkte zeigen die Gene mit p (BH) < 0,05, aber absoluten Fold Changes < 1,5.
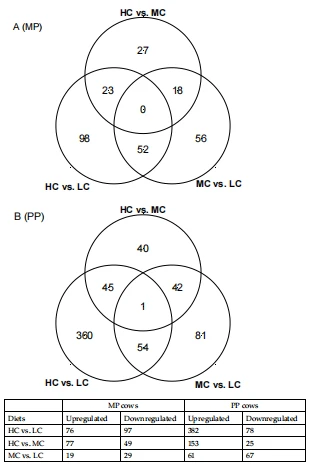
Abbildung 2. Venn-Diagramme, die die unterschiedlich exprimierten Gene durch die zirkulierenden Leukozyten zwischen den drei Ernährungsgruppen bei (A) multiparen (MP) Kühen und (B) primiparen (PP) Kühen zeigen. HC: hohes Konzentrat (n=6 bei PP-Kühen und n=14 bei MP-Kühen), MC: mittleres Konzentrat (n=5 bei PP-Kühen und n=15 bei MP-Kühen ) und LC: niedriges Kraftfutter (n=6 bei PP-Kühen und n=14 bei MP-Kühen).

Abbildung 3. Venn-Diagramme, die die unterschiedlich exprimierten Gene durch zirkulierende Leukozyten zwischen den PP- und MP-Kühen im Vergleich von (A) hohem Konzentrat (HC) mit niedrigem Konzentrat (LC) zeigen; (B) HC mit mittlerem Konzentrat (MC) und (C) MC mit LC. HC: n=6 bei PP-Kühen und n=14 bei MP-Kühen, MC: n=5 bei PP-Kühen und n=15 bei MP-Kühen und LC: n {{5 }} bei PP-Kühen und n=14 bei MP-Kühen
2.5. Vergleich der Leukozyten-Genexpressionsprofile zwischen multiparen Kühen, die Hoch- oder Niedrigkonzentratfutter erhalten
Die 20 am häufigsten hochregulierten und herunterregulierten DEGs, sortiert nach den p-Werten (BH-bereinigt) bei den MP-Kühen, denen eine HC-Diät verabreicht wurde, im Vergleich zu denen, die eine LC-Diät erhielten, sind in der Ergänzungsdatei S1D, E aufgeführt. Von den hochregulierten DEGs waren die meisten an der GO beteiligt Funktionen des Immunsystems, des Stoffwechsels und der Reaktion auf Reize, wobei viele kodierende Proteine mehrere Rollen spielen. Beispielsweise spielt ALAS2 (kodierend für 50 -Aminolävulinatsynthase 2) eine Rolle im Stoffwechselprozess, bei der Reaktion auf Reize und im Entwicklungsprozess. COL1A1 (Kollagen Typ I Alpha-1-Kette) und DAB2 sind am Stoffwechsel, der Reaktion auf Reize, dem mehrzelligen Organismus, der Fortbewegung und der Entwicklung beteiligt. Die 20 am häufigsten herunterregulierten Gene veranschaulichen ein klares Thema der Veränderungen der Immunität mit 14 assoziierten DEGs. Davon kodieren DMTB1, FGA, FGB und TF antimikrobielle Peptide, ALB und TF kodieren negative Akute-Phase-Proteine (APP) und FGA und FGG kodieren positive APPs. Acht Gene spielen eine Rolle im Stoffwechsel und zehn sind an der Reaktion auf Reize beteiligt.

Cistanche-Pflanze stärkt das Immunsystem
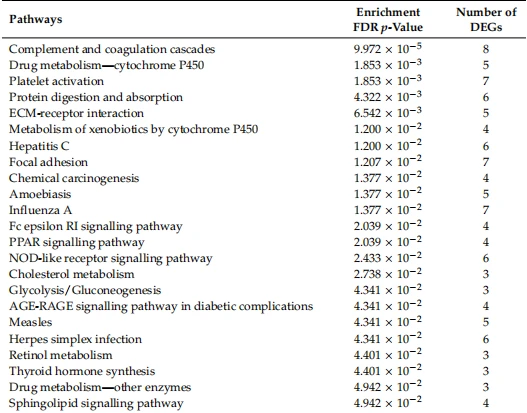
Die aus dem Vergleich der HC- mit der LC-Gruppe abgeleiteten Leukozyten-DEGs wurden als nächstes einer GO-Anreicherungsanalyse unterzogen. Die 76 hochregulierten DEGs wurden deutlich mit 208 Funktionen angereichert, von denen die Top 20 basierend auf den Anreicherungswerten in Abbildung 4A dargestellt sind. Diese waren mit verschiedenen Aspekten der Zellfunktion verbunden, wobei an erster Stelle die Bindung des aus Blutplättchen stammenden Wachstumsfaktors lag. Viele Funktionen standen im Zusammenhang mit dem Protein- und Aminosäurestoffwechsel (in den meisten Fällen APLP1, COL1A1, COL1A2, COL3A1, HTR1B und P2RY12), der Biomineralisierung und der Kollagenverarbeitung (COL1A1, COL1A2, SPP1 und TUFT1) und der Zellkommunikation. Im Gegensatz dazu hatten die Hauptfunktionen der 97 herunterregulierten DEGs ein klares Thema verschiedener Immunabwehrprozesse (Abbildung 4B), die überwiegend mit 20 DEGs assoziiert waren. Davon wurde FGA (ein positives APP) im HC vs. LC-Vergleich um das 85-fache herunterreguliert. Ein GO-Browsertool fasste die biologischen Funktionen sowohl der hoch- als auch der herunterregulierten DEGs in acht signifikanten Kategorien zusammen (Tabelle 4). Mit Ausnahme der Biomineralisierung waren alle anderen biologischen Funktionen, insbesondere diejenigen, die mit der Immunabwehr verbunden sind, überwiegend mit den herunterregulierten DEGs verbunden.

Abbildung 4. Die 20 wichtigsten GO-Funktionen im Zusammenhang mit den DEGs, abgeleitet aus HC- und LC-Vergleichen. (A) MP hochregulierte DEGs, (B) MP herunterregulierte DEGs, (C) PP hochregulierte DEGs und (D) PP herunterregulierte DEGs.
Tabelle 4. Zusammenfassung der Hauptfunktionen der GO-Anreicherung von Leukozyten-DEGs im Vergleich zwischen multiparen Kühen, die in der frühen Laktation Futter mit hohem (n=14) und niedrigem (n=14) Kraftfutter erhielten.

Tabelle 4. Forts.
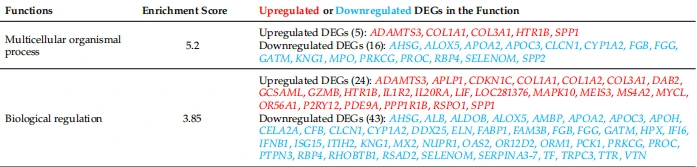
Die kombinierten hoch- und herunterregulierten DEGs (n=173) waren signifikant mit 23 KEGG-Signalwegen angereichert, die hauptsächlich mit verschiedenen Immun- und Stoffwechselprozessen in Zusammenhang standen (Tabelle 5). Komplement- und Koagulationskaskaden befanden sich an der Spitze mit acht herunterregulierten DEGs (CFB, FGA, FGB, FGG, KNG1, PROC, SERPINA1 und VTN). Der Entzündungsweg der NOD-ähnlichen Signalübertragung war mit sechs DEGs (IFNB1, MAPK10, OAS1X, OAS1Y, OAS1Z und OAS2) verbunden, von denen alle außer MAPK10 herunterreguliert waren. Der Weg der Proteinverdauung und -absorption enthielt sechs DEGs, von denen drei (COL1A1, COL1A2 und COL3A1) hochreguliert und drei herunterreguliert waren (CELA2A, COL5A3 und ELN). Fünf herunterregulierte DEGs waren am Signalweg der Peroxisom-Proliferator-aktivierten Rezeptoren (PPARs) beteiligt (APOA2, APOC3, FABP1, HMGCS2 und PCK1). Die Wege der extrazellulären Matrix-Rezeptor-Interaktion, der fokalen Adhäsion und der Sphingolipid-Signalübertragung sind alle an der Aufrechterhaltung der Zell- und Gewebestruktur beteiligt.
Tabelle 5. Signifikante Signalwege, die durch die Anreicherung des KEGG-Signalwegs im Zusammenhang mit unterschiedlich exprimierten Leukozytengenen bei multiparen Kühen identifiziert wurden, denen die hochkonzentrierte Ernährung (n=14) verabreicht wurde, im Vergleich zu denen, denen die niedrigkonzentrierte Ernährung (n=14) verabreicht wurde.
2.6. Vergleich der Leukozyten-Genexpressionsmuster zwischen erstgebärenden Kühen, die Hoch- oder Niedrigkonzentratfutter erhalten
Die 20 wichtigsten zirkulierenden Leukozyten-DEGs in den PP-Kühen, denen die HC im Vergleich zu den LC-Diäten gefüttert wurden, sind in der Ergänzungsdatei S2D, E aufgeführt. Immun- und Stoffwechselprozesse dominierten die biologischen Funktionen der am höchsten regulierten DEGs, die 11 bzw. 12 DEGs enthielten. Unter diesen sind ACSL6, MMP9 und SLC11A1 an der Leukozytenproliferation beteiligt und ACSL6, ADGRG3, COL1A2, DUSP1, HCK, MMP9 und PADI4 am Entwicklungsprozess. SLC40A1 ist ein wichtiger Eisentransporter, der eine Schlüsselrolle beim Ausgleich des zellulären und systemischen Eisenspiegels spielt. Einige dieser DEGs kodieren Proteine mit mehreren Funktionen. Beispielsweise sind MMP9, DUSP1, SLC11A1 und COL1A2 mit den meisten der oben genannten GO-Funktionen verknüpft. Die biologischen Funktionen der von oben herunterregulierten DEGs waren vielfältiger. Acht DEGs waren am Prozess des Immunsystems beteiligt, fünf spielten eine Rolle im Stoffwechsel und zwei waren sowohl mit der Leukozytenproliferation als auch mit dem Entwicklungsprozess verbunden (EPCAM und FCRL3). Auch hier kodieren einige DEGs, zum Beispiel CD96 und FCRL3, für Proteine mit mehreren Rollen.
Bei den PP-Kühen waren 382 hochregulierte DEGs, die aus dem HC- vs. LC-Vergleich abgeleitet wurden, signifikant mit 690 GO-Funktionen assoziiert, wobei die Top 20 in Abbildung 4C dargestellt sind. An allen beteiligten sich 116 DEGs (Supplementary File S2F) mit verschiedenen Immunaktivitäten. Die wichtigste Funktion war der Signalweg des Zelloberflächenrezeptors. Dies war mit 43 DEGs verbunden, zu denen Gene gehörten, die für viele Rezeptoren für Immunliganden kodierten, wie CXCR1, CXCR2, IL17RD und IL1RAP. Diese Funktion hatte sechs wichtige Unterfunktionen, darunter den Lipopolysaccharid (LPS)-vermittelten Signalweg (PTAFR, TLR4 und SCARB1) und den durch die Immunantwort regulierten Zelloberflächenrezeptor-Signalweg. Die wichtigste Unterfunktion innerhalb der Regulierung des mehrzelligen Organismusprozesses war die Regulierung der Zytokinproduktion mit 24 hochregulierten DEGs, wie MARK13, LTF und TLR4. Es gab weniger herunterregulierte DEGs (nur 78), die mit 298 signifikanten GO-Funktionen verbunden waren, mit niedrigeren Anreicherungswerten und vielfältigeren biologischen Prozessen. Abbildung 4D zeigt die 20 wichtigsten Funktionen. Einige davon waren mit Aspekten der Immunität verbunden, wie z. B. der Zelladhäsion, der Regulierung der Produktion des Mediators der Immunantwort, der Reaktion auf LPS und der Reaktion auf Moleküle bakteriellen Ursprungs. Andere standen im Zusammenhang mit der Aufrechterhaltung der Homöostase, wie z. B. Zelloberfläche, Zytolyse, Transmembrantransport und Endopeptidase vom Serin-Typ. Die Zusammenfassung der signifikanten biologischen Funktionen, die sowohl mit hoch- als auch herunterregulierten DEGs verbunden sind, ergab sieben Kategorien (Tabelle 6), wobei der Prozess des Immunsystems an erster Stelle steht und die meisten anderen Funktionen auch mit der Immunabwehr verbunden sind. Beispielsweise wurde die Fortbewegung durch die DEGs mit chemotaktischen und immunologischen Eigenschaften sowie der interspeziesinternen Interaktion zwischen Organismen bereichert, was die Abtötung eingedrungener Krankheitserreger beinhaltet. Sowohl zelluläre Prozesse als auch biologische Regulation waren mit einer großen Anzahl von DEGs verbunden. Der zelluläre Prozess (n=239 DEGs) umfasste viele Unterfunktionen, die mit Zelladhäsion, Zelltötung, Aktivierung von Immunzellen und Zellpopulationsproliferation verbunden sind. Die biologische Regulation (125 DEGs) umfasst auch viele Immunaktivitäten, wie z. B. die Regulierung des Prozesses des Immunsystems, der Fortbewegung und der Reaktion auf Reize. Alle diese Funktionen enthielten überwiegend hochregulierte DEGs in der HC-Diät.
Tabelle 6. Zusammenfassung der Hauptfunktionen der GO-Anreicherung von DEGs im Vergleich zwischen erstgebärenden Kühen, denen in der frühen Laktation Futter mit hohem (n=6) und niedrigem (n=6) Kraftfutter verabreicht wurde.

Tabelle 6. Forts.

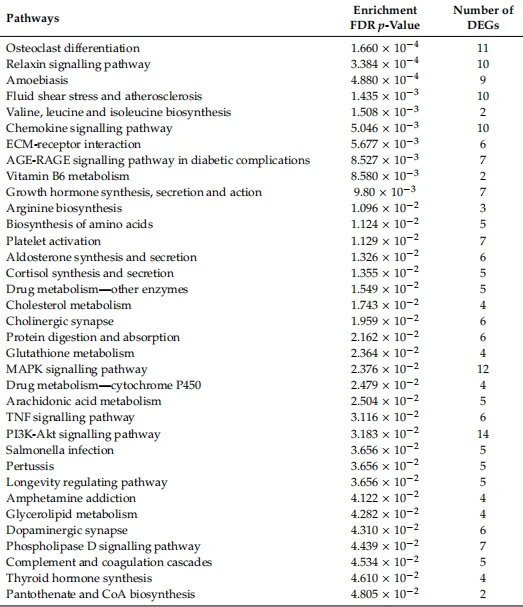
Die kombinierten hoch- und herunterregulierten DEGs (460) in den PP-Kühen wurden mit 35 signifikanten KEGG-Signalwegen angereichert (Tabelle 7). Viele waren mit Stoffwechselprozessen verbunden, an denen Aminosäuren (Valin, Leucin, Isoleucin, Arginin und Glutathion), Proteine, Lipide (Arachidonsäure, Glycerolipid und Cholesterin), Vitamin B6 und einige Hormone (Aldosteron, Cortisol, Schilddrüse und Wachstumshormon) beteiligt waren ). Diese Stoffwechselwege wurden überwiegend mit den durch die HC-Diät hochregulierten DEGs angereichert. Beispielsweise war die Biosynthese von Aminosäuren mit fünf hochregulierten DEGs (ARG2, ASS1, GPT2, SDS und SDSL) verbunden, der Weg der Wachstumshormonsynthese, -sekretion und -wirkung war mit sechs hochregulierten (ADCY6, CREB3L2, CREB5, FOS) angereichert , MAPK13 und SOCS3) und ein herunterreguliertes (BCAR1) DEG, und der Arachidonsäurestoffwechsel enthielt fünf hochregulierte DEG (CYP2J2, GGT5, GPX3, PLB1 und TBXAS1). Mehrere mit dem Immun-/Entzündungsprozess verbundene Wege wurden ebenfalls deutlich angereichert, wiederum hauptsächlich durch hochregulierte DEGs. Dazu gehörten Chemokin-, MAPK- und TNF-Signalwege sowie Komplement- und Gerinnungskaskaden. Beispielsweise enthielt der Chemokin-Signalweg acht hochregulierte (ADCY6, CCL16, CCR1, CXCL13, CXCR1, CXCR2, GNG7 und HCK) und zwei herunterregulierte DEGs (BCAR1 und CCR5), der TNF-Signalweg enthielt sechs hochregulierte DEGs (CREB3L2, CREB5). , FOS, MAPK13, MMP9 und SOCS3) und die MAPK-Signalwege enthielten 12 hochregulierte DEGs, darunter IL1A, MAP3K6 und MAPK13.
Tabelle 7. Signifikante Signalwege, die durch die Anreicherung des Kegg-Signalwegs im Zusammenhang mit unterschiedlich exprimierten Leukozytengenen bei den erstgebärenden Kühen identifiziert wurden, denen die hochkonzentrierte Ernährung (n=6) verabreicht wurde, im Vergleich zu denen, denen die niedrigkonzentrierte Ernährung (n=6) verabreicht wurde.
3. Diskussion
Postpartale Milchkühe verfügen über homöostatische Mechanismen, um die Nährstoffverteilung zwischen Laktation und anderen wichtigen Lebensfunktionen wie Immunität und Wachstum zu steuern [8]. Die Gewebemobilisierung ist eine normale Anpassung von Säugetieren zur Unterstützung der Laktation, bei einigen Kühen kommt es jedoch zu einem Stoffwechselungleichgewicht [35,37]. Bei solchen Tieren kommt es zu einer übermäßigen Mobilisierung des Fettgewebes, einer Insulinresistenz und einer systemischen Entzündung, die zu der zu diesem Zeitpunkt häufig beobachteten Beeinträchtigung der Immunität beitragen [38]. Dies ist mit Entzündungsmediatoren wie TNF und IL6 verbunden [39,40]. Am 14. Tag nach dem Kalben, als die zirkulierenden Leukozytenproben in dieser Studie entnommen wurden, waren die Zellen daher einer Phase entzündlicher Stimulation ausgesetzt. Mithilfe von Next-Generation-Sequenzierung und bioinformatischer Analyse haben wir gezeigt, dass Futter mit unterschiedlichen Kraftfutteranteilen unterschiedliche Auswirkungen auf das zirkulierende Leukozyten-Transkriptom bei PP- und MP-Kühen in der frühen Laktation hatte. Dies war mit Unterschieden in ihrer Gesundheit und Fruchtbarkeit verbunden. Diese Informationen haben unserem vorherigen Bericht über die Auswirkungen der Ernährung auf die Milchproduktion und Immunität neue Erkenntnisse hinzugefügt [32].
3.1. Vergleich der Auswirkungen der hoch- und niedrigkonzentrierten Ernährung bei multiparen Kühen
Die MP-Kühe auf der HC-Diät hatten einen höheren DMI als MC- und LC-Kühe und dies war mit höheren zirkulierenden Konzentrationen von Glukose und IGF verbunden{{0}}. Dies führte dazu, dass die HC-Kühe eine weniger schwere NEB hatten und mehr Milch produzierten. Die HC-Diät wurde so formuliert, dass sie den Energie- und Proteinbedarf sowohl für die Laktation als auch für die Aufrechterhaltung der Körperhomöostase deckt, und die Metabolitenmessungen bestätigten, dass ihr Stoffwechselstatus tatsächlich besser war als bei den LC-Kühen, mit einem geringeren Bedarf an Gewebemobilisierung, um den Energiebedarf zu decken. Dies sollte dazu beitragen, die Auflösung postpartaler Entzündungsprozesse zu beschleunigen, da viele entzündliche Erkrankungen in der frühen Laktation mit Stoffwechselstörungen verbunden sind oder durch diese verursacht werden [38] und wir zuvor gezeigt haben, dass Uterusentzündungen bei Kühen mit einem besseren Energiehaushalt schneller behoben wurden [2]. In der vorliegenden Studie gab es bei den MP-Kühen keinen Unterschied im Verhältnis von PMNs zu Epithelzellen im Uteruslumen je nach Ernährung. Dieser Index wird häufig als Indikator für eine zytologische Endometritis herangezogen [41]. Unterschiede je nach Ernährung wurden jedoch in der Milchdrüse beobachtet, da die LC-Kühe einen höheren SCC hatten und dies damit verbunden war, dass ein größerer Anteil von ihnen während der ersten 16 DIM an klinischer Mastitis litt (28,6 % vs. 0 % bei den LC vs . HC-Gruppen).
Die meisten der in der Analyse des Leukozyten-Transkriptoms identifizierten DEGs waren an Immun- und/oder Stoffwechselprozessen beteiligt, wie in einer Immunzellpopulation zu erwarten war. Der bedeutendste KEGG-Weg war die Komplement- und Gerinnungskaskade, die sechs der am stärksten herunterregulierten Gene bei den HC-Kühen umfasste. Von diesen kodiert CFB den Komplementfaktor B, eine Komponente des alternativen Wegs der Komplementaktivierung. FGA, FGB und FGG kodieren für drei Untereinheiten des Gerinnungsfaktors Fibrinogen, einem Schlüsselbestandteil des Blutgerinnsels, der auch für die Bindung von Bakterien an Blutplättchen wichtig ist [42]. Die von KNG1 kodierte hochmolekulare Form von Kininogen ist auch für die Blutgerinnung essentiell und Kininogen setzt Bradykinin frei, ein Peptid mit verschiedenen Funktionen, einschließlich antibakterieller und antimykotischer Aktivität. Vitronectin, kodiert durch VTN, ist auch an der Regulierung des Gerinnungswegs und der Wundheilung beteiligt, während seine Heparin-bindende Domäne antimikrobielle Eigenschaften bietet. PROC kodiert für ein Plasma-Glykoprotein, dessen aktivierte Form eine Serinproteasedomäne enthält, die am Abbau der aktivierten Formen der Gerinnungsfaktoren V und VIII beteiligt ist, während SERPINA1 für einen Serinproteaseinhibitor kodiert, zu dessen Zielen Plasmin, Thrombin und Plasminogenaktivator gehören. Eine Hochregulierung der Komplement- und Gerinnungskaskade wurde zuvor im Brustgewebe als frühe Wirtsreaktion auf E. coli oder Staphylokokken nachgewiesen. aureus-Infektion [43]. Da dieser Signalweg bei den Kühen, die die LC-Diät erhielten, stärker zum Ausdruck kam, stützt dies den Beweis für ein höheres Auftreten von Mastitis bei diesen Tieren.
Cistanche tubulosa – verbessert das Immunsystem
Eine weitere vom GO-Browser zusammengefasste Hauptfunktion war der Prozess der Abtötung von Krankheitserregern (Interspezies-Interaktion zwischen Organismen), der mit 14 herunterregulierten DEGs bei den HC-Kühen verbunden war (Tabelle 4). Dazu gehörten eine Reihe von Genen, die an der antiviralen Aktivität beteiligt sind (IFI6, IFNB1, ISG15, MX2, OAS1Y, OAS1Z, OAS2 und RSAD2), die in geringeren Mengen exprimiert wurden. Von diesen kodiert IFNB1 für Interferon Beta 1, während die anderen allesamt Interferon-stimulierte Gene sind [44,45]. Sie alle sind auch Teil des NOD-like-Rezeptor (NLR)-Signalwegs. NLRs sind zytosolische Mustererkennungsrezeptoren, die durch verschiedene Nicht-Selbstkomponenten, darunter bakterielles Peptidoglycan, aktiviert werden und möglicherweise die NF-kappa B-/AP-1-abhängige Expression proinflammatorischer Zytokine, die Expression von Typ-I-Interferonen, Autophagie usw. initiieren Entzündung [46]. Unsere aktuelle Studie zeigte, dass dieser Signalweg in Leukozyten von mit E. coli infizierten Kühen hochreguliert war [47]. Ein weiteres identifiziertes Gen war MPO, das für Myeloperoxidase kodiert, ein Enzym, das in azurophilen Granula von PMNs und Makrophagen gespeichert ist. Es wird bei Entzündungsprozessen in die extrazelluläre Flüssigkeit freigesetzt und wurde als Marker für Entzündungen und oxidativen Stress verwendet [48]. IL1R2 kodiert für ein Mitglied der Interleukin-1-Rezeptorfamilie und war eines der am stärksten herunterregulierten DEG, das bei MP-Kühen identifiziert wurde. Dieser kann IL1A, IL1B und den Interleukin-1-Rezeptor Typ I (IL1R1/IL1RA) binden, fungiert jedoch als Lockrezeptor, um die Ligandenaktivität zu hemmen.
Das Gen mit der signifikantesten unterschiedlichen Expression zwischen MP-Kühen auf den verschiedenen Diäten war FCER1A, mit geringerer Expression bei den HC-Kühen. Dies kodiert für eine Untereinheit des IgE-Rezeptors, der allergische Reaktionen auslöst, die sich möglicherweise entwickelt haben, um die Abwehr des Wirts gegen Parasiten durch die Freisetzung von Mediatoren wie Histamin zu fördern [49]. Interessanterweise war FCER1A eines von nur 18 Genen, deren Expressionsniveau nachweislich die Fruchtbarkeit von Rinderfärsen beeinflusst [50]. Seine genaue Rolle bei Rindern bleibt ungeklärt, aber in einem Impfversuch mit Kälbern, die experimentell mit dem wirtschaftlich wichtigen parasitären Nematoden Ostertagia ostertagi infiziert waren, korrelierten seine Expressionsniveaus im Blut positiv mit der Mastzellzahl und negativ mit der Anzahl der Würmer [51]. Drei weitere hochregulierte Gene bei den HC-Kühen mit einer gewissen Immunfunktion waren ALAS2, GZMB und LIF. ALAS2 kodiert für 50 -Aminolävulinatsynthase 2, ein erythroidspezifisches mitochondrial lokalisiertes Enzym, das den ersten und geschwindigkeitsbestimmenden Schritt im Häm-Biosyntheseweg katalysiert. Häm ist ein wesentlicher Cofaktor bei einer Vielzahl von Schlüsselprozessen, einschließlich des Sauerstofftransports, während Mutationen in diesem Gen mit einer Vielzahl menschlicher Krankheiten, einschließlich Anämie, in Verbindung gebracht werden [52]. GZMB kodiert für ein Präproprotein, das von natürlichen Killerzellen und zytotoxischen T-Lymphozyten sezerniert und verarbeitet wird, um eine aktive Protease zu erzeugen, die die Apoptose der Zielzelle induziert und außerdem Zytokine verarbeitet und extrazelluläre Matrixproteine abbaut [53]. Der von LIF kodierte Zytokin-Leukämie-Hemmfaktor wurde ursprünglich durch seine Beteiligung an der Makrophagendifferenzierung identifiziert, es wurde jedoch auch gezeigt, dass er bei einer Vielzahl von Arten, einschließlich Rindern, eine wichtige Rolle bei der Embryonalentwicklung und der Etablierung einer Trächtigkeit spielt [54].
Die aus dem HC- vs. LC-Vergleich bei den MP-Kühen abgeleiteten DEGs waren außerdem mit mehreren wichtigen Signalwegen angereichert, die mit dem Glukose-, Protein- und Fettsäurestoffwechsel verbunden sind. Dazu gehörten vier herunterregulierte DEGs, die an PPAR-Signalwegen beteiligt sind (APOA2, APOC3, FABP1 und PCK1). In dieser Studie wurden drei Haupt-PPAR-Isoformen (A, D, G) in der Leukozytenpopulation nachgewiesen. Obwohl die Expression der PPARs selbst nicht durch die Ernährung beeinflusst wurde, kann dieser Weg die Expression von Genen beeinflussen, die am Glukose- und Lipidstoffwechsel, der Adipozytendifferenzierung und Entzündungsreaktionen beteiligt sind [55,56] und trägt zur metabolischen Anpassung an eine begrenzte Nährstoffversorgung bei induzierende Gene, die an der -Oxidation beteiligt sind [57]. Auch der Retinol-Stoffwechselweg war bei den HC-Kühen herunterreguliert, mit einer geringeren Expression von RBP4 und TTR (kodierend für Retinol-bindendes Protein bzw. Transthyretin), die beide als Retinol-Transporter im Blut fungieren. Die Interaktion von Retinol mit dem PPAR-Signalweg beeinflusst die Transkription vieler anderer nachgeschalteter Gene [58]. APOA2 und APOC3 sind zusammen mit APOH auch Teil des Cholesterinstoffwechselwegs. Cholesterin ist ein Hauptbestandteil der Plasmamembran und beeinflusst sowohl deren Organisation als auch Funktion [59,60]. Jüngste Studien haben eine zunehmende Rolle von Cholesterin als wichtiger Modulator der angeborenen und adaptiven Immunaktivität unterstrichen [61].
Der Weg der Glykolyse/Glukoneogenese war mit drei herunterregulierten DEGs bei den mit HC gefütterten Kühen (ADH1C, ALDOB und PCK1) verbunden. Davon kodiert PCK1 für Phosphoenolpyruvatcarboxykinase 1, die als Hauptkontrollpunkt für die Regulierung der Gluconeogenese fungiert. Dieses Enzym katalysiert zusammen mit GTP die Bildung von Phosphoenolpyruvat aus Oxalacetat unter Freisetzung von Kohlendioxid und GDP. Die Aktivierung von Immun-/Entzündungswegen fördert die Transkription glukoneogener Gene über den Toll-like-Rezeptor 4 (TLR4) [62]. Dies kann dazu führen, dass Immunzellen ihren Glukosestoffwechsel von der oxidativen Phosphorylierung auf die Glykolyse umstellen, um sowohl Energie als auch Nährstoffe zu produzieren, die für die Proliferation und Produktion von Immunmolekülen erforderlich sind [12,63]. Dies führt zu einem erhöhten Bedarf an Glukose, der mit dem Bedarf an Laktatproduktion konkurriert [64].
Zusammenfassend lässt sich sagen, dass die Genexpressionsunterschiede zwischen MP-Kühen auf der HC- und LC-Diät Hinweise auf eine stärker hochregulierte Immunaktivität und Entzündung bei den LC-Kühen liefern. Damit einher ging eine höhere Inzidenz von Mastitis. Im Gegensatz dazu waren bei den HC-Kühen Gene hochreguliert, die für einige Proteine kodierten, die wahrscheinlich der Gesundheit und Fruchtbarkeit zugute kommen, wie etwa ALAS2 und LIF. Dies stützt die gemessenen Stoffwechselindizes, die zeigen, dass es bei den MP-Kühen unter der HC-Diät einen verbesserten EBAL-Status gab, was wahrscheinlich dazu beitrug, sie vor der Entwicklung von Infektions- oder Stoffwechselkrankheiten zu schützen.
3.2. Vergleich der Auswirkungen der hoch- und niedrigkonzentrierten Ernährung bei erstgebärenden Kühen
Ähnlich wie die MP-Kühe hatten auch die PP-Kühe mit der HC-Diät einen höheren DMI von etwa 4 kg/Tag, die Milchleistung stieg jedoch nicht wesentlich an. Es gab keine signifikanten Unterschiede in den zirkulierenden Konzentrationen von Glukose, NEFA, BHB oder IGF-1, wobei nur Harnstoff in der LC-Diät höher war. Im Gegensatz dazu gab es signifikantere Unterschiede in der Leukozyten-Genexpression zwischen den Ernährungsgruppen als bei den MP-Kühen, wobei 460 vs. 173 DEGs in den HC- vs. LC-Vergleichen identifiziert wurden, von denen 83 % bei PP-Kühen unter der HC-Diät hochreguliert waren. Nur ein kleiner Teil der DEGs überlappte zwischen den beiden Altersgruppen (Abbildung 3), was darauf hindeutet, dass die Veränderungen der Leukozytenfunktion bei der Ernährung in der frühen Laktation bei PP-Kühen empfindlicher waren als bei MP-Kühen. Wir hatten erwartet, dass die HC-Diät den PP-Kühen zugute kommen würde, indem sie ihren DMI erhöht und den berechneten Bedarf an nicht abbaubarem und metabolisierbarem Protein in der Nahrung vollständig deckt. EBAL wurde zwar durch die HC-Diät verbessert, die Genexpressionsanalyse zeigte jedoch eine viel stärkere Hochregulierung der an der Immunabwehr beteiligten Gene. Die mit HC gefütterten Kühe hatten auch ein höheres Verhältnis von PMNs zu UEC in ihren Uteri, zusammen mit einem zahlenmäßig höheren Plattenepithelkarzinom und mehr Fällen von Mastitis. Dies deutet darauf hin, dass sie tatsächlich eher eher als weniger anfällig für Krankheiten waren. Wir haben zuvor herausgefunden, dass Neutrophile, die in dieser Studie in den ersten drei Laktationswochen von den PP-Kühen gesammelt wurden, im Vergleich zu den MP-Kühen einen signifikant höheren Phagozytoseindex und einen deutlich höheren oxidativen Burst-Index aufwiesen, aber die 2-Wegeffekte von Ernährung und Parität auf über diese Messungen wurde nicht berichtet [32].
Zu den im HC vs. LC-Vergleich identifizierten Prozessen des Immunsystems gehörten die Hochregulierung von Zelloberflächenrezeptoren und Signalwegen zur Mustererkennung, Chemotaxis, Zytokinproduktion und Leukozytenmigration bei den mit HC gefütterten Kühen. Identifizierte DEGs waren mit einer Vielzahl von Immunabwehrmechanismen verbunden, darunter einer Vielzahl antimikrobieller Peptide (AMP) (CATHL6, CXCL13, DEFB1, LTF, PGLYRP1, PGLYRP4, SA100A8, SA100A9, S100A1 und SLC11A1). Diese können nicht nur die eingedrungenen Organismen direkt abtöten, sondern auch andere Immun- und antimikrobielle Prozesse modulieren [65–67]. Eine Hochregulierung antimikrobieller Peptide in den Leukozyten-Transkriptomprofilen wurde bereits bei Kühen mit klinischer Mastitis [47,68] und Metritis/Endometritis [69,70] nachgewiesen. Die Leukozytenadhäsionsfunktion war bei den mit HC gefütterten Tieren mit 16 hochregulierten und fünf herunterregulierten DEGs verbunden. Die Adhäsion von Leukozyten an die Kapillarwände ist ein wichtiger erster Schritt, damit sie aus dem Blut wandern und zu Stellen mit Gewebeschäden, Infektionen und Entzündungen gelangen können [71]. Sowohl Zell-Zell- als auch Zell-Matrix-Wechselwirkungen beeinflussen den Leukozyten-Phänotyp, und eine Fehlregulation der Adhäsionswege kann zu einer anhaltenden Leukozyten-Aktivierung mit ungelöster Entzündung führen [72]. Von den identifizierten hochregulierten DEG sind ADAM8, ANGPTL3, CD24, ICAM3 und THY1 alle an der Extravasation beteiligt [73,74], während FN1, NRP1, TNFAIP6 und VCAN möglicherweise eine Rolle beim Leukozytenzellhandel und der Funktion in entzündeten Geweben spielen [72, 75]. Die Gene, die für die Chemokinrezeptoren CXCR1 und CXCR2 kodieren, waren bei den mit HC gefütterten Kühen ebenfalls hochreguliert; Diese sind sowohl wichtig für die Stimulierung der Chemotaxis von PMN zu Infektionsherden als auch für die Aktivierung biochemischer Prozesse, die eindringende Bakterien abtöten [76].
Von den herunterregulierten Genen, die mit der Adhäsion bei mit HC gefütterten Kühen verbunden sind, kodiert BCAR1 für ein multifunktionales Protein namens cas, das an Zellmotilität, Apoptose und Zellzykluskontrolle beteiligt ist (77). Polymorphismen in BCAR1 wurden zuvor mit Plattenepithelkarzinomen und Mastitisresistenz in Verbindung gebracht [78]. ADGRG1 (auch bekannt als GPR56) kodiert für einen G-Protein-gekoppelten Rezeptor, der Kollagen 3 und Transglutaminase 2 bindet, beides Bestandteile des Gewebestromas. Es wurde gezeigt, dass ADGRG1 eine Rolle in menschlichen natürlichen Killerzellen (NK) spielt, in denen es deren Zytotoxizität hemmt [79]. Seine eigene Expression wird nach einer Zytokin-induzierten Aktivierung herunterreguliert, was mit den hier gezeigten Ergebnissen übereinstimmen würde. Das CD96-Protein fungiert auch als inhibitorischer Checkpoint-Rezeptor auf NK-Zellen [80]. Frühere Studien zu Veränderungen im Leukozyten-Transkriptom während der Übergangsperiode haben ebenfalls Veränderungen in der Genexpression im Zusammenhang mit der transendothelialen Migration festgestellt, allerdings mit unterschiedlichen Schlussfolgerungen, die entweder eine Aktivierung nach dem Kalben [81] oder eine Hemmung [82] berichten. Unsere Analyse identifizierte auch eine Reihe von Unterschieden in den Signalwegen des Aminosäurestoffwechsels bei PP-Kühen auf der HC-Diät im Vergleich zu denen auf der LC-Diät, die mit Enzymen zusammenhängen, die von fünf hochregulierten DEGs (ARG2, ASS1, GPT2, SDS und SDSL) kodiert werden. . Davon kodiert ASS1 für die Arginin-Succinat-Synthase 1, die den vorletzten Schritt des Arginin-Biosynthesewegs katalysiert, während ARG2 für Arginase kodiert, die die Hydrolyse von Arginin zu Ornithin und Harnstoff katalysiert. L-Arginin kann auch in Stickstoffmonoxid umgewandelt werden, ein Signalmolekül, das eine Schlüsselrolle bei der Pathogenese von Entzündungen spielt [83]. Glutamat-Pyruvat-Transaminase 2 (GPT2) ist ein mitochondriales Enzym, das die reversible Transaminierung zwischen Alanin und 2-Oxoglutarat katalysiert, um Pyruvat und Glutamat zu erzeugen. Dieses Gen wird unter metabolischen Stressbedingungen hochreguliert und spielt eine Rolle bei der Förderung der Gluconeogenese aus dem Aminosäurestoffwechsel [84]. Serin-Dehydratase (SDS) kodiert für ein Enzym, das L-Serin in Pyruvat und Ammoniak umwandelt, während Serin-Dehydratase (SDSL) voraussichtlich am Weg der Isoleucin-Biosynthese aus Threonin beteiligt ist.
Der Weg des Cholesterinstoffwechsels war mit vier hochregulierten DEGs in der HC-Diät verbunden (ANGPTL3, LRP1, SCARB1 und SORT1). Dies könnte zur Anreicherung von Cholesterin in den Leukozyten der mit HC gefütterten Kühe führen und Entzündungen fördern, einschließlich einer Verstärkung des TLR-Signals, der Aktivierung von Inflammasomen und einer stärkeren Produktion von Monozyten und Neutrophilen im Knochenmark und in der Milz [85]. Der Weg des Arachidonsäurestoffwechsels mit fünf hochregulierten DEGs (wie zuvor aufgeführt) führt zur Produktion von Kaskaden entzündungsfördernder und entzündungshemmender Produkte wie Prostaglandine und Leukotriene [86]. Der Glycerolipid-Stoffwechselweg war mit vier hochregulierten DEGs (DGAT2, DGKG, GK und GPAT3) verbunden, die für lipogene Gene kodieren, die an der Synthese von Triacylglycerin beteiligt sind. Seine Anreicherung kann die Aktivierung und Entzündung von Leukozyten auslösen [87,88]. Alle diese Ergebnisse stützen die Schlussfolgerung, dass die HC-Diät die Leukozyten-Stoffwechselwege bei den PP-Kühen in einer Weise hochregulierte, die ihre Immun-/Entzündungsreaktionen verstärkte. Frühere Arbeiten an Kühen konzentrierten sich hauptsächlich auf die Trockenstehperiode und haben gezeigt, dass Überfütterung und ein hoher BCS zu diesem Zeitpunkt die nachfolgende Lipidmobilisierung und eine verstärkte Entzündungsreaktion während der Peripartumperiode fördern [34]. In der vorliegenden Studie stützen das Uterus-PMN:UEC-Verhältnis und der Trend zu einem höheren SCC die Vermutung, dass es bei den PP-Kühen, die die HC-Diät erhielten, zu einer erhöhten Leukozytenmigration zur Gebärmutter und zur Brustdrüse kam. Obwohl dies ein wesentlicher Bestandteil der Immunabwehr ist, kann eine Überaktivierung zu einer Hyperentzündung führen. Weitere Studien mit einer größeren Stichprobe sind erforderlich, um diese Ergebnisse zu bestätigen.
3.3. Ähnlichkeiten in der Reaktion auf die Ernährung multiparer und erstgebärender Kühe
In terms of metabolic changes, both the MP and PP cows had higher circulating concentrations of urea when on the LC diet. Blood urea in both late pregnancy and early lactation may rise following mobilization of amino acids stored in skeletal muscle [89] or when dietary protein supply exceeds energy availability or protein needed [90], so these situations could have applied here. Elevated levels of urea have been associated with reduced fertility, but only at >4,5 mmol/L, höher als die Konzentrationen, die in der vorliegenden Studie bei den mit LC gefütterten Tieren erreicht wurden [91]. Bezüglich der Leukozyten-Gentranskriptionsdaten ist es interessant festzustellen, dass die aus dem HC- vs. LC-Vergleich in beiden Altersgruppen abgeleiteten DEGs mit dem Weg der Proteinverdauung und -absorption angereichert waren, bei dem die Gene, die für verschiedene Isoformen von Kollagen kodieren, eine wichtige Rolle spielen . Darunter befanden sich sowohl bei MP- als auch bei PP-Kühen drei hochregulierte Kollagengene (COL1A1, COL1A2 und COL3A1) und bei den MP-Kühen ein herunterreguliertes (COL5A3) Kollagengen. Ihre Expressionswerte in den Proben waren gering, aber die Unterschiede waren signifikant. Ein Teil dieser RNA könnte von Fibrozyten stammen, einer Zellpopulation, die nur 0,1–0,5 % der nichterythrozytischen Zellen im peripheren Blut ausmacht [92,93]. Kollagen ist ein seit langem etablierter Immunverstärker, der an vielen Immun-/Entzündungsprozessen beteiligt ist [93,94]. Seine hochregulierte Produktion im zirkulierenden Blut durch die HC-Diät kann daher die Leukozytenfunktion beeinträchtigen.
3.4. Auswirkungen auf die Fruchtbarkeit
Viele frühere Studien haben berichtet, dass der miteinander verbundene Stoffwechsel- und Immunstatus sowie das Krankheitsaufkommen von Kühen in der frühen Laktation einen großen Einfluss auf ihre spätere Fruchtbarkeit haben (z. B. [38,95]). Unsere eigene Arbeit zeigte, dass MP-Kühe mit einer niedrigen IGF-1-Konzentration bei 14 DIM weniger wahrscheinlich überhaupt schwanger wurden [37]. Kürzlich haben wir berichtet, dass 63 % der Kühe mit niedrigem IGF-1 zu diesem Zeitpunkt während ihrer ersten 35 DIM mehr als ein Gesundheitsproblem hatten, im Vergleich zu nur 26 % der Kühe mit hohem IGF-1. Darunter waren mehr Tiere mit Uterusinfektionen und klinischer Mastitis [10]. Foley et al. [69] unterschied zwischen gesunden Kühen, die innerhalb von 3 Wochen nach dem Abkalben die Homöostase wiederherstellen konnten, und anderen, bei denen es zu einer schwereren und länger andauernden Entzündungsreaktion kam, die dann zu einer klinischen Endometritis führte. Ein Zusammenhang mit peripherem Blut wurde von Galvão et al. nachgewiesen. [96], die zeigten, dass Neutrophile von Kühen mit schlechterer EBAL bei sieben DIM einen niedrigeren Glykogengehalt aufwiesen und diese Tiere häufiger an Gebärmuttererkrankungen litten, was möglicherweise mit der verringerten Verfügbarkeit oxidativer Brennstoffe für Immunreaktionen verbunden war. Klinische Mastitis in der frühen Laktation ist auch mit einer erhöhten Rate an Embryonenverlusten vor der Einnistung verbunden, wobei es Hinweise darauf gibt, dass ein niedriger BCS das Risiko weiter erhöht [97]. Es wurde eine Reihe von Mechanismen im Zusammenhang mit der Zytokin- und Prostaglandinproduktion sowie anderen Entzündungsmediatoren vorgeschlagen, die sich auf den Eierstock auswirken und/oder ein ungünstiges Uterusmilieu verursachen könnten [98,99]. Die Fruchtbarkeitsdaten der Kühe in unserer Studie stützten die Erkenntnisse zu ihrem Immunstatus und ihrer Gesundheit in der frühen Laktation. Die MP-Kühe auf der LC-Diät benötigten zahlenmäßig mehr S/C, entsprechend ihrer schlechteren EBAL, zusammen mit Belegen aus der Analyse des Leukozyten-Transkriptoms für eine aktivere Immunabwehr im Gange, was durch ihre höhere Inzidenz von Mastitis gestützt wird. Im Gegensatz dazu dauerte die Empfängnis der PP-Kühe mit der HC-Diät deutlich länger und es wurden im Vergleich zu den LC-gefütterten Kühen weniger trächtig. Sie hatten in der Frühschwangerschaft mehr Hinweise auf eine Entzündung, obwohl ihr berechneter EBAL besser war. Derzeit sind die zugrunde liegenden Mechanismen, die ihren schlechten Gesundheitszustand und ihre Fruchtbarkeit verursachen, ungewiss, obwohl wir auf der Grundlage der globalen Genexpression auch Hinweise auf eine erhöhte Leberentzündung und Fibrose gefunden haben (Cheng, Little, Ferris, Takeda, Ingvartsen, Crowe und Wathes, unveröffentlichte Beobachtungen). .
3.5. Grenzen der Studie
Es standen weniger PP-Kühe pro Gruppe zur Verfügung, was die statistische Aussagekraft der Analysen bezüglich der Phänotypen verringerte. Daher sind weitere Studien mit einer größeren Stichprobe erforderlich, um die Auswirkungen der Ernährung auf Fortpflanzung und Krankheiten zu bestätigen. In der vorliegenden Studie haben wir mithilfe von Tempus-Röhrchen und seinem Isolationssystem die gesamte RNA aus peripherem Vollblut extrahiert. Dies ermöglicht eine einfache Sammlung für eine groß angelegte landwirtschaftliche Studie, trennt jedoch nicht die Zelltypen, zu denen T- und B-Lymphozyten, natürliche Killerzellen, Blutplättchen, Monozyten, Granulozyten (Neutrophile, Eosinophile und Basophile) und Fibrozyten gehören. Die präsentierten Genexpressionsdaten wurden daher zusätzlich zu ihren individuellen Transkriptionsänderungen durch mögliche Behandlungseffekte auf die relativen Anteile bestimmter Zelltypen beeinflusst. Diese Ergebnisse basieren auch auf Gentranskriptionsniveaus und enthalten keine Informationen über deren posttranslationale Verarbeitung, die auch Einfluss darauf hat, wie viel funktionelles Protein produziert wird.
4. Materialien und Methoden
4.1. Tiere und Ernährung
Alle Verfahren wurden gemäß dem Animals (Scientific Procedures) Act 1986 durchgeführt und sind durch die Home Office Project-Lizenznummer PPL2754 und eine Zertifizierungsbescheinigung für die Einrichtung abgedeckt. Die Arbeit wurde auch vom Ethik- und Wohlfahrtsausschuss des Agri-Food and Biosciences Institute (AFBI, Belfast, Nordirland, Vereinigtes Königreich) genehmigt. Aus der AFBI-Herde wurden 62 Holstein-Friesian-Milchkühe rekrutiert. Davon waren 18 PP (Laktation 1) und 44 MP mit den Laktationsnummern 2–7 (3,5 ± 1,28) und alle Kühe waren laut Untersuchung durch den Tierarzt gesund. Das Kalbegewicht betrug 680 ± 62 (Mittelwert ± STD) kg für MP-Kühe und 550 ± 39 kg für PP-Kühe. Nach dem Kalben wurden die PP- und MP-Kühe getrennt in drei Futtergruppen eingeteilt, wobei die Zuteilung in jeder Altersgruppe im Hinblick auf die vorhergesagte Vererbungsfähigkeit für Fett plus Protein (kg), das Körpergewicht vor dem Kalben und den BCS ausgewogen war. Die MP-Kühe waren auch hinsichtlich der Parität und der Milchleistung der vorherigen Laktation 305-Tage ausgeglichen. Den Kühen wurde entweder (1) niedriges Kraftfutter (LC, 30 % Kraftfutter plus 70 % Grassilage, n=6 für PP und n=14 für MP) angeboten; (2) mittleres Konzentrat (MC, 50 % Konzentrat plus 50 % Grassilage, n=6 für PP und n=15 für MP) oder (3) hohes Konzentrat (HC, 70 % Konzentrat plus 30 % Grassilage, n=6 für PP und n=15 für MP) Futter (Prozentangaben auf Trockenmassebasis). Das Konzentrat für jede Behandlung wurde so formuliert, dass eine gemeinsame Gesamtkonzentration an Rohprotein (CP) für LC, MC und HC (jeweils 152, 152 und 154 g/kg TS) erreicht wurde, während die berechnete gesamte metabolisierbare Energie der Nahrung ( Die ME-Gehalte betrugen 12,0, 12,4 und 12,8 MJ/kg TM. Es wurde geschätzt, dass die Futtermittel 1556, 1997 und 2420 g/Tag effektives, im Pansen abbaubares Protein liefern; 559, 733 und 888 g/Tag nicht abbaubares Nahrungsprotein und 1346, 1817 und 2275 g/Tag metabolisierbares Protein für LC, MC und HC. Der Zugang zu den Behandlungsrationen wurde durch ein Calan-Broadbent-Fütterungssystem (American Calan Inc., Northwood, NH, USA) kontrolliert, das mit einem elektronischen Identifikationssystem verbunden war, das die tägliche Aufzeichnung der einzelnen Kuhaufnahmen ermöglichte. Die Diäten für jede Behandlung wurden mit 107 % der Einnahme der Vortage angeboten, um eine Ad-libitum-Verzehr sicherzustellen. Darüber hinaus wurde allen Kühen bei jedem Melken über ein Fütterungssystem im Melkstand zusätzlich 0,5 kg Kraftfutter angeboten, um einen effizienten Kuhfluss aufrechtzuerhalten. Die vorliegende Studie war Teil eines umfassenderen Projekts und ausführliche Informationen zu den angebotenen Diäten, dem Fütterungsmanagement und der Futterzusammensetzung wurden bereits zuvor beschrieben [32].
4.2. Datenerfassung zum Kuhphänotyp
Das Körpergewicht wurde zweimal wöchentlich mithilfe einer Waage erfasst. BCS wurde auf etwa 14 DIM geschätzt [100]. Alle Kühe wurden zweimal täglich gemolken und ihre Tagesleistungen wurden aufgezeichnet. Milchproben wurden zweimal wöchentlich mittels Mittelinfrarotanalyse auf Protein-, Fett- und Laktosekonzentrationen analysiert und die somatischen Zellen der Milch wurden gezählt. Zusätzliche Morgenmilchproben (2 × 8 ml) wurden zweimal wöchentlich gesammelt und bei –18 °C für die Analyse von LDH (EC. 1.1.1.27) und NAGase (EC 3.2.1.30) mithilfe fluorometrischer Tests gelagert [101]. Die energiekorrigierte Milchleistung (ECM; kg/Tag) wurde nach den in unserer Gruppe verwendeten Methoden berechnet [32]. Der EBAL jeder Kuh wurde mit der zuvor beschriebenen Methode geschätzt [102].
Die klinische Mastitis wurde mithilfe von Standardmethoden diagnostiziert, die auf täglichen Beobachtungen abnormaler Veränderungen im Aussehen der Milch (z. B. Flocken, Blutgerinnsel), in der Qualität, in der Milchleistung und in entzündlichen Reaktionen der Brust (Rötung, Schwellung, Hitze oder Schmerzen) basierten. Die Milch-SCC-Werte wurden zusammen mit den klinischen Diagnosen verwendet, um die Kühe in drei Gruppen einzuteilen. Von gesunden Kühen wurde ein SCC von < 100 000 Zellen/ml Milch und keine klinischen Symptome definiert. Subklinisch mastitische Kühe wurden als Kühe mit einem SCC zwischen 100,000 und 400,000 Zellen/ml Milch und ohne offensichtliche klinische Symptome definiert. Kühe, bei denen eine klinische Mastitis diagnostiziert wurde, hatten einen SCC von > 400 000 Zellen/ml Milch und zeigten einige der oben genannten klinischen Symptome. Die Kühe wurden beim beobachteten Brunst unter Verwendung normaler Herdenpraktiken besamt und die Fruchtbarkeitsdaten für die Dauer der anschließenden Laktation oder bis zur Keulung des Tieres wurden aus den Herdenaufzeichnungen abgerufen. Die gemeldeten Daten umfassten die Tage bis zur ersten Trächtigkeit (DFS), die Tage bis zur Trächtigkeit (offene Tage), die Leistungen pro Trächtigkeit und den Anteil der Kühe, die schwanger wurden. Darüber hinaus wurden die Empfängnisdaten anhand eines ICB-Scores (4-Punkt im Kalb nach (1)) bewertet.<100 days, (2) 100–200 days, (3) >200 Tage oder (4) keine Empfängnis oder Ausscheidung.
4.3. Uteruszytologische Analyse
Bei etwa 14 DIM wurde jeder Kuh eine Uteruszytobürstenprobe (Minitube, Minitüb GmbH, Tiefenbach, Deutschland) entnommen, um die Endometriumzytologie zu bewerten, wie zuvor beschrieben [103]. Eine doppelt geschützte Zytobürste wurde manuell durch den Gebärmutterhals in die Gebärmutter geführt, der innere Schutz wurde aus dem äußeren herausgezogen und die Bürste wurde sanft gegen die Endometriumwand gedreht. Anschließend wurde die Bürste in den Innenschutz zurückgezogen und entfernt. Objektträger für die zytologische Untersuchung wurden vorbereitet, indem die Zytobürste auf einen sauberen Objektträger aus Glas gerollt und die Probe mit Fisherbrand™ CytoPrep™ Cytology Fixative (Fishers Scientific, Blanchardstown, Irland) fixiert wurde. Fixierte Objektträger wurden zur Verarbeitung an die UCD School of Veterinary Medicine des University College Dublin, Irland geschickt und mit modifizierter Giemsa-Färbung gefärbt. Die zytologische Beurteilung wurde durchgeführt, indem PMNs UECs bei 400-facher Vergrößerung (Leitz Labourlux-S, Wetzlar, Deutschland) gezählt und ihr Verhältnis bestimmt wurden, wobei der Durchschnitt aus 10 Hochleistungsfeldern pro Objektträger bestand.
4.4. Analyse zirkulierender Metaboliten und IGF-1
14 ± 2 (Mittelwert ± STD) Tage nach dem Kalben wurden 10 ml Blutproben aus der Halsschlagader aller Kühe in Na-Heparin-Röhrchen für Plasma und einfache Röhrchen für Serum entnommen. Nach der Trennung von Plasma oder Serum durch Zentrifugation wurden sie bis zur Analyse bei –20 °C gelagert. Die Konzentrationen von Plasmaglukose, Harnstoff, BHB, NEFA und Cholesterin wurden mit den zuvor beschriebenen Methoden gemessen [20,25]. Kurz gesagt, die NEFA-Konzentration im Serum wurde mit der ACS-ACOD-Methode unter Verwendung von NEFA C Kits (Wako, Neuss, Deutschland) bestimmt. Die Plasmaglukose wurde mit einer enzymatischen Methode (ADVIA 1800 Clinical Chemistry System, Siemens Healthcare Diagnostics, Ballerup, Dänemark) quantifiziert. Serum-BHB wurde durch Messung der Absorption bei 340 nm aufgrund der Produktion von NADH bei alkalischem pH-Wert in Gegenwart von BHB-Dehydrogenase bestimmt. Serumharnstoff wurde spektrophotometrisch analysiert. Die Intra- und Inter-Assay-Variationskoeffizienten (CV) lagen in allen Fällen unter drei bzw. vier Prozent, sowohl für Proben mit niedriger als auch hoher Kontrolle. Die Konzentrationen von Serum-IGF-1 wurden mit einem Radioimmunoassay nach Säure-Ethanol-Extraktion quantifiziert [104]. Der Intra-Assay-VK betrug 12,4, 7,5 und 9,9 % für Proben mit niedriger, mittlerer und hoher Kontrolle.
4.5. Blut-RNA-Extraktion
Blutproben für die RNA-Extraktion wurden durch Halsvenenpunktion von allen Kühen bei 14 ± 2 DIM in Tempus-Blut-RNA-Röhrchen (Thermo-Fisher Scientific, Loughborough, UK) entnommen. Die Röhrchen wurden unmittelbar nach der Entnahme 15–2 0 Sekunden lang kräftig geschüttelt, dann eingefroren und zur RNA-Extraktion bei –8 0 ◦C gelagert. Die Vollblut-RNA wurde mit Tempus Spin RNA-Isolierungskits (Thermo-Fisher) gemäß den Anweisungen des Herstellers wie zuvor beschrieben extrahiert [20]. Zur Beurteilung der RNA-Menge und -Integrität wurde ein Agilent BioAnalyzer 2000 (Agilent Technologies UK Ltd., Cheadle, UK) mit Agilent RNA 6000 Nano Kit (Agilent Technologies UK Ltd., Cheadle, UK) verwendet. Zusätzlich wurden Menge und Reinheit mit einem NanoDrop 1000 (Thermo Fischer) validiert. Qualitätsdaten sind in der Ergänzungsdatei S3 zusammengefasst. Dies zeigte, dass alle RNA-Proben eine angemessene Integrität (RIN-Nummer > 8,7, 9,3 ± 0,3) und Reinheit (260/280 zwischen 2,01 und 2,15, Mittelwert ± STD 2,10 ± 0,03) aufwiesen, sodass keine Tiere aus der Analyse entfernt wurden. Die RNA wurde für die anschließende RNA-Sequenzierung bei –80 °C gelagert.
4.6. RNA-Sequenzierung, Kartierung und Quantifizierung
Die extrahierte Leukozyten-RNA wurde auf der Illumina NextSeq 500-Plattform wie zuvor beschrieben sequenziert (68). Kurz gesagt, unter Verwendung der epMotion Liquid Handling Workstation (Eppendorf, Hamburg, Deutschland) wurden 750 ng Gesamt-RNA mit dem Illumina TruSeq Stranded Total RNA Library Prep Ribo-Zero Gold Kit (Illumina, San Diego, CA, USA) in cDNA-Sequenzierungsbibliotheken revers transkribiert ). Die gepoolten cDNA-Bibliotheken wurden auf einem Illumina NextSeq 500-Sequenziergerät mit Single-End-Reads mit einer Länge von 75 Nukleotiden sequenziert, um einen Durchschnitt von 33,5 Millionen Reads pro Probe zu erreichen. Die rohen FASTQ-Dateien wurden im Europäischen Nukleotidarchiv (E-MTAB-9347 und E-MTAB-9431) hinterlegt. Alle Sequenzierungsanalysen wurden mit CLC Genomic Workbench v21 (Qiagen, Manchester, UK) durchgeführt. Jede Probe enthielt die Lesevorgänge von vier Spuren und sie wurden in einer Fastq-Datei zusammengeführt. Die Qualität sowohl der rohen als auch der gekürzten Fastq-Dateien wurde nach einer Illumina Pipeline 1.8 bewertet und alle fehlgeschlagenen Lesevorgänge wurden entfernt. Die Lesevorgänge wurden dann auf eine Referenzgenom-Bos-Taurus-Assembly (ARS-UCD1.2, bereitgestellt von RefSeq unter https://www. ncbi.nlm.nih.gov/assembly, abgerufen am 1. Januar 2021) abgebildet und als Lesevorgänge pro Gen quantifiziert. Lesevorgänge pro Kilobase Million (RPKM) und Transkripte pro Kilobase Million (TPM). Diese wurden als Genexpressionsdateien (GE) in der CLC Genomics Workbench gespeichert, um für die folgende Analyse der differentiellen Genexpression verwendet zu werden.
4.7. Analyse der unterschiedlichen Genexpression zwischen den Ernährungsgruppen
Vor der differenziellen Ausdrucksanalyse für die Ernährungswirkung verwendeten wir eine Hauptkomponentenanalyse (PCA) mit den RPKM-Werten, um die Ausreißer zu identifizieren. Dabei zeigte sich, dass zwei Kühe (Blood020009, MP und Blood020103, PP) Ausreißer in der Population waren und wurden daher von der weiteren Analyse ausgeschlossen (Supplementary File S4A). Die Hauptkomponentenanalyse zeigte auch, dass es nur eine begrenzte Überlappung im gesamten Genexpressionsmuster zwischen den PP- und MP-Kühen gab (Ergänzungsdatei S2B). Dies unterstützte das ursprüngliche Studiendesign, jede Altersgruppe separat zu analysieren. Die aus allen Einzelproben abgeleiteten GE-Dateien wurden daher nach Altersgruppen getrennt (PP, n=5–6 pro Gruppe und MP, n=14–15 pro Gruppe). Die DEGs zwischen den Futtergruppen bei PP- oder MP-Kühen wurden mit CLC Genomics Workbench V21 über ein einseitiges ANOVA-ähnliches Verfahren identifiziert. Die Falscherkennungsraten (FDR) für mehrere Tests wurden mit Benjamini-Hochberg (BH) angepasst und die Signifikanz wurde bei p < 0,05 berücksichtigt. Die Fold Changes (FCs) wurden als Genexpressionsverhältnis der Gruppe mit höherem Konzentrat zur Gruppe mit niedrigerem Konzentrat berechnet (z. B. HC vs. LC, MC vs. LC oder HC vs. MC), wenn der Wert der Gruppe mit höherem Konzentrat war war größer als die der Gruppe mit niedrigerem Konzentrat (positive Faltveränderung, Hochregulierung). Wenn der Wert der Gruppe mit niedrigerem Konzentrat größer war als der der Gruppe mit höherem Konzentrat, wurde das Verhältnis der Gruppe mit niedrigerem Konzentrat zur Gruppe mit höherem Konzentrat verwendet (z. B. LC vs. HC, MC vs. HC und LC vs. MC). ) (negative Faltungsänderung, Herunterregulierung). Die DEGs, die zwischen den Ernährungsgruppen mit einer absoluten Faltungsänderung von größer oder gleich 1,5 hoch- und herunterreguliert wurden, wurden für die weitere Analyse ausgewählt.
4.8. Anreicherungsanalyse der Genontologie (GO).
Die aus Paarvergleichen zwischen den Ernährungsgruppen abgeleiteten DEGs wurden zur GO-Anreicherungsanalyse in die Partek Genomics Suite V7.1 (Partek Incorporation, Chesterfield, MO, USA) eingegeben, um die biologischen Funktionen und Wechselwirkungen zwischen den DEGs und der zugehörigen Kyoto-Enzyklopädie zu untersuchen Gene und Genome (KEGG)-Pfade mit einem Genom von Bos taurus ARS-UCD1.2. Es wurde der exakte Fisher-Test mit BH-Anpassung verwendet und die statistische Signifikanz bei p < 0.05 berücksichtigt.
4.9. Statistische Analyse von Phänotypdaten
Die von allen Kühen ermittelten Daten wurden entsprechend dem Studiendesign zunächst nach Altersgruppen (PP- und MP-Kühe) aufgeteilt. Die Werte von DMI, BW, Milchparametern, EBAL, BCS, zirkulierenden Metaboliten (Glukose, Harnstoff, BHB, NEFAs, Cholesterin und IGF{{0}}), SCC (logarithmisch transformiert) und Uteruszellzahlen und ihre Verhältnisse wurden als Mittelwert ± Standardfehler des Mittelwerts (SE) zusammengefasst. Mithilfe einer statistischen Analyse wurden die Unterschiede zwischen den Ernährungsgruppen mithilfe einer einfaktoriellen ANOVA verglichen, die in das Softwarepaket SPSS V28 (Chicago, IL, USA) integriert ist. Die Homogenität der Varianz für jede Variable wurde vor der ANOVA mit der Levene-Statistik getestet. Die Ergebnisse zeigten, dass bei den PP-Kühen keine Homogenität zwischen den Gruppen für ECM, EBAL, Glucose, Harnstoff, BHB und IGF-1 erreicht wurde, weshalb für diese Variablen eine logarithmische Transformation angewendet wurde. Wo ANOVA eine Signifikanz zeigte, wurden mehrere Vergleiche mit der LSD-Methode von Fisher durchgeführt, um die Ursache der Unterschiede zu identifizieren. Da nach der logarithmischen Transformation keine Homogenität der Varianz für die Daten des Milch-SCC und der Uteruszytologie erreicht werden konnte, wurden diese Variablen mithilfe einer einfaktoriellen Kruskal-Wallis-ANOVA mit Mehrfachvergleichen von Dunn getestet. Die Fruchtbarkeitsdaten wurden mit der Wilcoxon-Methode getestet. In allen Fällen wurde die Signifikanz bei p < 0,05 angenommen.
5. Schlussfolgerungen
Diese Studie unterstützt frühere Arbeiten zum Nachweis klarer Zusammenhänge zwischen dem Stoffwechselstatus von Kühen in der frühen Laktation und ihrer Immunfunktion. Die meisten früheren Untersuchungen zur Verbesserung der postpartalen Gesundheit durch bessere Ernährung konzentrierten sich auf die präpartale Phase und zeigten, dass Überfütterung und ein hoher BCS zu diesem Zeitpunkt die nachfolgende Lipidmobilisierung und eine verstärkte Entzündungsreaktion während der peripartalen Phase fördern [34]. Wir haben stattdessen untersucht, ob es möglich ist, die Immunfunktion nach dem Abkalben durch eine Änderung der Laktationsdiät zu verändern. Wir fanden heraus, dass die Reaktion auf die zusätzliche Aufnahme von Kraftfutter, das eine auf den Energie- und Proteinbedarf des Tieres zugeschnittene Diät lieferte, unterschiedliche Auswirkungen auf das Leukozyten-Transkriptom bei MP- und PP-Kühen hatte. Bei den MP-Kühen war die HC-Diät eindeutig vorteilhaft, da die Leukozyten der LC-Kuh die Komplement- und Gerinnungskaskade sowie die angeborenen Immunabwehrmechanismen gegen Krankheitserreger hochregulierten. Im Gegensatz dazu zeigten die Leukozyten der PP-Kühe mit der HC-Diät stärkere Immun-/Entzündungsreaktionen und hatten ein höheres PMN:UEC-Verhältnis, was auf eine erhöhte Leukozytenmigration in die Gebärmutter hindeutet. Diese Kühe hatten in der Folge eine längere Zeitspanne vom Abkalben bis zur Empfängnis, was auf eine schlechtere Fruchtbarkeit hindeutet. Weitere Arbeiten mit einer größeren Anzahl von Kühen sind erforderlich, um die Feststellung eines Einflusses der Ernährung auf die Fruchtbarkeit zu bestätigen und besser zu verstehen, wie sich die Stoffwechselreaktionen der postpartalen Ernährung bei jüngeren Tieren unterscheiden.
Verweise
1. Mallard, BA; Dekkers, JC; Irland, MJ; Leslie, KE; Sharif, S.; Vankampen, CL; Wagter, L.; Wilkie, BN Veränderung der Immunreaktion während der Peripartalperiode und ihre Auswirkungen auf die Gesundheit von Milchkühen und Kälbern. J. Dairy Sci. 1998, 81, 585–595. [CrossRef] [PubMed]
2. Wathes, DC; Cheng, Z.; Chowdhury, W.; Fenwick, MA; Fitzpatrick, R.; Morris, DG; Patton, J.; Murphy, JJ Eine negative Energiebilanz verändert die globale Genexpression und Immunantworten in der Gebärmutter postpartaler Milchkühe. Physiol. Genom. 2009, 39, 1–13. [CrossRef]
3. Ingvartsen, KL; Moyes, K. Ernährung, Immunfunktion und Gesundheit von Milchvieh. Animal 2013, 7 (Suppl. 1), 112–122. [CrossRef] [PubMed]
4. Kehrli, ME, Jr.; Nonnecke, BJ; Roth, JA Veränderungen in der Funktion boviner Neutrophilen während der peripartalen Phase. Bin. J. Tierarzt. Res. 1989, 50, 207–214. [PubMed]
5. Ster, C.; Loiselle, MC; Lacasse, P. Einfluss der Konzentration nicht veresterter Fettsäuren im Serum nach dem Kalben auf die Funktionalität boviner Immunzellen. J. Dairy Sci. 2012, 95, 708–717. [CrossRef] [PubMed]
6. Lacetera, N.; Scalia, D.; Bernabucci, U.; Ronchi, B.; Pirazzi, D.; Nardone, A. Lymphozytenfunktion bei überkonditionierten Kühen rund um die Geburt. J. Dairy Sci. 2005, 88, 2010–2016. [CrossRef] [PubMed]
7. Nonnecke, BJ; Kimura, K.; Goff, JP; Kehrli, ME, Jr. Auswirkungen der Milchdrüse auf die funktionellen Kapazitäten mononukleärer Blutleukozytenpopulationen von Kühen in der Geburtsphase. J. Dairy Sci. 2003, 86, 2359–2368. [CrossRef]
8. Habel, J.; Sundrum, A. Missverhältnis der Glukoseverteilung zwischen verschiedenen Lebensfunktionen in der Übergangszeit von Milchkühen. Tiere 2020, 10, 1028. [CrossRef]
9. Horst, EA; Kvidera, SK; Baumgard, LH Eingeladene Rezension: Der Einfluss der Immunaktivierung auf die Gesundheit und Leistung von Übergangskühen – Eine kritische Bewertung traditioneller Dogmen. J. Dairy Sci. 2021, 104, 8380–8410. [CrossRef]
10. Wathes, DC; Becker, F.; Buggiotti, L.; Crowe, MA; Ferris, C.; Foldager, L.; Grelet, C.; Hostens, M.; Ingvartsen, KL; Marchitelli, C.; et al. Zusammenhänge zwischen zirkulierenden IGF-1-Konzentrationen, Krankheitsstatus und dem Leukozyten-Transkriptom bei Milchkühen in der frühen Laktation. Wiederkäuer 2021, 1, 147–177. [CrossRef]
11. Dimeloe, S.; Burgener, AV; Grahlert, J.; Hess, C. T-Zell-Metabolismus, der die Aktivierung, Proliferation und Differenzierung steuert; eine modulare Sichtweise. Immunologie 2017, 150, 35–44. [CrossRef] [PubMed]
12. Loftus, RM; Finlay, DK Immunmetabolismus: Der Zellstoffwechsel wird zum Immunregulator. J. Biol. Chem. 2016, 291, 1–10. [CrossRef] [PubMed]
13. Bauman, DE; Currie, WB Verteilung von Nährstoffen während der Schwangerschaft und Stillzeit: Ein Überblick über die Mechanismen der Homöostase und Homöorthese. J. Dairy Sci. 1980, 63, 1514–1529. [CrossRef] [PubMed]
14. Drackley, JK ADSA Foundation Scholar Award. Biologie der Milchkühe in der Übergangszeit: Die letzte Grenze? J. Dairy Sci. 1999, 82, 2259–2273. [CrossRef] [PubMed]
15. Jabbour, HN; Vertrieb, KJ; Catalano, RD; Norman, JE Entzündungswege in der reproduktiven Gesundheit und Krankheit von Frauen. Reproduktion 2009, 138, 903–919. [CrossRef]
16. Pascottini, OB; LeBlanc, SJ Modulation der Immunfunktion im peripartalen Rinderuterus. Theriogenology 2020, 150, 193–200. [CrossRef]
17. Sheldon, IM; Lewis, GS; LeBlanc, S.; Gilbert, RO Definition der postpartalen Uteruserkrankung bei Rindern. Theriogenology 2006, 65, 1516–1530. [CrossRef]
18. Kuhla, B. Rezension: Proinflammatorische Zytokine und hypothalamische Entzündung: Auswirkungen auf unzureichende Futteraufnahme von Übergangsmilchkühen. Tier 2020, 14, S65–S77. [CrossRef]
19. Ingvartsen, KL; Moyes, KM Faktoren, die zur Immunsuppression bei Milchkühen während der peripartalen Phase beitragen. Jpn. J. Tierarzt. Res. 2015, 63 (Ergänzung 1), S15–S24.
20. Wathes, DC; Cheng, Z.; Salavati, M.; Buggiotti, L.; Takeda, H.; Tang, L.; Becker, F.; Ingvartsen, KI; Ferris, C.; Hostens, M.; et al. Beziehungen zwischen Stoffwechselprofilen und Genexpression in Leber und Leukozyten von Milchkühen in der frühen Laktation. J. Dairy Sci. 2021, 104, 3596–3616. [CrossRef]
21. Pinedo, P.; Melendez, P. Lebererkrankungen im Zusammenhang mit Stoffwechselstörungen bei Milchkühen. Tierarzt. Klin. N. Bin. Essensanimation. Üben. 2022, 38, 433–446. [CrossRef] [PubMed]
22. Fenwick, MA; Fitzpatrick, R.; Kenny, DA; Diskin, MG; Patton, J.; Murphy, JJ; Wathes, DC Zusammenhänge zwischen negativer Energiebilanz (NEB) und IGF-Regulation in der Leber laktierender Milchkühe. Inland. Anim. Endokrinol. 2008, 34, 31–44. [CrossRef] [PubMed]
23. Kobayashi, Y.; Boyd, CK; Bracken, CJ; Lamberson, WR; Keisler, DH; Lucy, MC Eine verminderte Boten-Ribonukleinsäure des Wachstumshormonrezeptors (GHR) in der Leber peripartiver Rinder wird durch eine spezifische Herunterregulierung von GHR 1A verursacht, die mit einem verminderten insulinähnlichen Wachstumsfaktor I verbunden ist. Endocrinology 1999, 140, 3947–3954. [CrossRef]
24. Kvidera, SK; Horst, EA; Abuajamieh, M.; Mayorga, EJ; Fernandez, MV; Baumgard, LH Glukosebedarf eines aktivierten Immunsystems bei laktierenden Holsteinkühen. J. Dairy Sci. 2017, 100, 2360–2374. [CrossRef] [PubMed]
25. Cheng, Z.; Wylie, A.; Ferris, C.; Ingvartsen, KL; Wathes, D.C.; Gplus, EC Einfluss der Ernährung und des Gehalts an nicht veresterten Fettsäuren auf globale transkriptomische Profile in zirkulierenden mononukleären Zellen des peripheren Blutes bei Milchkühen in der frühen Laktation. J. Dairy Sci. 2021, 104, 10059–10075. [CrossRef]
26. Wathes, DC; Fenwick, M.; Cheng, Z.; Bourne, N.; Llewellyn, S.; Morris, DG; Kenny, D.; Murphy, J.; Fitzpatrick, R. Einfluss der negativen Energiebilanz auf Zyklizität und Fruchtbarkeit bei hochproduzierenden Milchkühen. Theriogenology 2007, 68 (Suppl. 1), S232–S241. [CrossRef]
27. Santos, JE; Bisinotto, RS; Ribeiro, ES Mechanismen, die einer verminderten Fruchtbarkeit bei anovularen Milchkühen zugrunde liegen. Theriogenology 2016, 86, 254–262. [CrossRef]
28. Pascottini, OB; Leroy, J.; Opsomer, G. Fehlanpassung an die Übergangszeit und Folgen für die Fruchtbarkeit von Milchkühen. Reproduktion. Dom. Anim. 2022, 57 (Suppl. 4), 21–32. [CrossRef]
29. Leroy, JL; Valckx, SD; Jordaens, L.; De Bie, J.; Desmet, KL; Van Hoeck, V.; Britt, JH; Marei, WF; Bols, PE Ernährung und mütterliche Stoffwechselgesundheit in Bezug auf die Qualität von Eizellen und Embryonen: Kritische Ansichten zu dem, was wir aus dem Milchkuhmodell gelernt haben. Reproduktion. Fruchtbar. Entwickler 2015, 27, 693–703. [CrossRef]
30. Coffey, MP; Hickey, J.; Brotherstone, S. Genetische Aspekte des Wachstums von Holstein-Friesian-Milchkühen von der Geburt bis zur Reife. J. Dairy Sci. 2006, 89, 322–329. [CrossRef]
31. Wathes, DC; Cheng, Z.; Bourne, N.; Taylor, VJ; Coffey, Abgeordneter; Brotherstone, S. Unterschiede zwischen primiparen und multiparen Milchkühen in den Wechselbeziehungen zwischen Stoffwechselmerkmalen, Milchleistung und Körperzustandsbewertung in der peripartalen Phase. Inland. Anim. Endokrinol. 2007, 33, 203–225. [CrossRef] [PubMed]
32. Wenig, MW; Wylie, ARG; O'Connell, NE; Walisisch, MD; Grelet, C.; Bell, MJ; Gordon, A.; Ferris, CP Immunologische Auswirkungen einer Änderung des Konzentrateinschlussniveaus in einer Grassilage-basierten Ernährung für Holstein-Friesian-Kühe in der frühen Laktation. Tier 2019, 13, 799–809. [CrossRef] [PubMed]
33. Buggiotti, L.; Cheng, Z.; Salavati, M.; Wathes, CD; Genotyp plus Umwelt, C. Der Vergleich des Transkriptoms in zirkulierenden Leukozyten in der frühen Laktation zwischen primiparen und multiparen Kühen liefert Hinweise auf altersbedingte Veränderungen. BMC-Genom. 2021, 22, 693. [CrossRef] [PubMed]
34. Cardoso, FC; Kalscheur, KF; Rückblick auf das Symposium von Drackley, JK: Ernährungsstrategien für eine verbesserte Gesundheit, Produktion und Fruchtbarkeit während der Übergangszeit. J. Dairy Sci. 2020, 103, 5684–5693. [CrossRef] [PubMed]
35. Ingvartsen, KL Fütterungs- und managementbedingte Erkrankungen bei Übergangskühen. Anim. Feed Sci. Technol. 2006, 126, 175–213. [CrossRef]
36. Ferris, CP; Gordon, FJ; Patterson, D.C.; Mayne, CS; McCoy, MA Ein kurzfristiger Vergleich der Leistung von vier graslandbasierten Milchproduktionssystemen für im Herbst kalbende Milchkühe. Grasfutterwissenschaft. 2003, 58, 8. [CrossRef]
37. Taylor, VJ; Cheng, Z.; Pushpakumara, PG; Beever, DE; Wathes, DC Beziehungen zwischen den Plasmakonzentrationen des insulinähnlichen Wachstumsfaktors I bei Milchkühen und ihrer Fruchtbarkeit und Milchleistung. Tierarzt. Empf. 2004, 155, 583–588. [CrossRef]
38. LeBlanc, SJ Wechselwirkungen von Stoffwechsel, Entzündung und Gesundheit des Fortpflanzungstrakts in der Zeit nach der Geburt bei Milchkühen. Reproduktion. Domc. Anim. 2012, 47 (Suppl. 5), 18–30. [CrossRef]
39. Vailati-Riboni, M.; Kanwal, M.; Bulgari, O.; Meier, S.; Priester, NV; Burke, CR; Kay, JK; McDougall, S.; Mitchell, MD; Walker, CG; et al. Der Körperzustandswert und die Ernährungsebene vor der Geburt beeinflussen die Fettgewebe-Transkriptomregulatoren des Stoffwechsels und der Entzündung bei grasenden Milchkühen während der Übergangszeit. J. Dairy Sci. 2016, 99, 758–770. [CrossRef]
40. Trevisi, E.; Minuti, A. Beurteilung der angeborenen Immunantwort bei der peripartalen Kuh. Res. Tierarzt. Wissenschaft. 2018, 116, 47–54. [CrossRef]
41. Druker, SA; Sicsic, R.; van Straten, M.; Goshen, T.; Kedmi, M.; Raz, T. Zytologische Endometritis-Diagnose bei primiparen versus multiparen Milchkühen. J. Dairy Sci. 2022, 105, 665–683. [CrossRef] [PubMed]
42. Hamzeh-Cognasse, H.; Laradi, S.; Osselaer, JC; Cognasse, F.; Garraud, O. Die Reduktion von Amotosalen-HCl-UVA-Pathogenen verändert den Metabolismus von löslichem CD40-Ligand, Ox40-Ligand und Interkeukin-27 nach der Lagerung nicht, den Zytokinen, die im Allgemeinen mit schwerwiegenden unerwünschten Ereignissen verbunden sind. Vox sang. 2015, 108, 205–207. [CrossRef] [PubMed]
43. de Greeff, A.; Zadoks, R.; Ruuls, L.; Toussaint, M.; Nguyen, TK; Downing, A.; Rebel, J.; Stockhofe-Zurwieden, N.; Smith, H. Frühe Wirtsreaktion in der Milchdrüse nach experimenteller Streptococcus uberis-Exposition bei Färsen. J. Dairy Sci. 2013, 96, 3723–3736. [CrossRef] [PubMed]
44. Cheng, Z.; Chauhan, L.; Barry, AT; Abudureyimu, A.; Oguejiofor, CF; Chen, X.; Wathes, DC Eine akute bovine Virusdiarrhoe-Virusinfektion hemmt die Expression von Interferon-Tau-stimulierten Genen im bovinen Endometrium. Biol. Reproduktion. 2017, 96, 1142–1153. [CrossRef]
45. Schoggins, JW Interferon-stimulierte Gene: Was machen sie alle? Annu. Rev. Virol. 2019, 6, 567–584. [CrossRef] [PubMed]
46. Ohto, U. Aktivierungs- und Regulationsmechanismen von NOD-ähnlichen Rezeptoren basierend auf Strukturbiologie. Vorderseite. Immunol. 2022, 13, 953530. [CrossRef]
47. Cheng, Z.; Palma-Vera, S.; Buggiotti, L.; Salavati, M.; Becker, F.; Werling, D.; Wathes, D.C.; Gplus, EC Transkriptomische Analyse zirkulierender Leukozyten, die während der Genesung von einer durch Escherichia coli verursachten klinischen Mastitis bei Holstein-Milchkühen gewonnen wurden. Tiere 2022, 12, 2146. [CrossRef]
48. Loria, V.; Dato, I.; Graziani, F.; Biasucci, LM Myeloperoxidase: Ein neuer Biomarker für Entzündungen bei ischämischen Herzerkrankungen und akuten Koronarsyndromen. Mediat. Entzündung. 2008, 2008, 135625. [CrossRef]
49. Olivera, A.; Beaven, MA; Metcalfe, DD Mastzellen signalisieren ihre Bedeutung für Gesundheit und Krankheit. J. Allergieklinik. Immunol. 2018, 142, 381–393. [CrossRef]
50. Dickinson, SE; Griffin, BA; Elmore, MF; Kriese-Anderson, L.; Elmore, JB; Dyce, PW; Rodning, SP; Biase, FH Transkriptomprofile in peripheren weißen Blutkörperchen zum Zeitpunkt der künstlichen Befruchtung unterscheiden Rinderfärsen mit unterschiedlichem Fruchtbarkeitspotenzial. BMC-Genom. 2018, 19, 129. [CrossRef]
51. Van Meulder, F.; Van Coppernolle, S.; Borloo, J.; Rinaldi, M.; Li, RW; Chiers, K.; Van den Broeck, W.; Vercruysse, J.; Claerebout, E.; Geldhof, P. Granulat-Exozytose von Granulysin und Granzym B als potenzieller Schlüsselmechanismus der impfstoffinduzierten Immunität bei Rindern gegen den Nematoden Ostertagia ostertagi. Infizieren. Immun. 2013, 81, 1798–1809. [CrossRef] [PubMed]
52. Taylor, JL; Brown, BL Strukturelle Grundlage für die Fehlregulation der Aminolävulinsäuresynthase bei Erkrankungen des Menschen. J. Biol. Chem. 2022, 298, 101643. [CrossRef] [PubMed]
53. Trapani, JA; Sutton, VR Granzyme B: Proapoptotische, antivirale und Antitumorfunktionen. Curr. Meinung. Immunol. 2003, 15, 533–543. [CrossRef] [PubMed]
54. Campanile, G.; Baruselli, PS; Limone, A.; D'Occhio, MJ Lokale Wirkung von Zytokinen und Immunzellen bei der Kommunikation zwischen Konzeptus und Uterus während der kritischen Phase der frühen Embryonalentwicklung, Anheftung und Implantation – Auswirkungen auf das Embryonenüberleben bei Rindern: Eine Übersicht. Theriogenology 2021, 167, 1–12. [CrossRef] [PubMed]
55. Bougarne, N.; Weyers, B.; Desmet, SJ; Deckers, J.; Ray, DW; Staels, B.; De Bosscher, K. Molekulare Wirkungen von PPARalpha im Lipidstoffwechsel und bei Entzündungen. Endokr. Rev. 2018, 39, 760–802. [CrossRef]
56. Sobolev, VV; Tchepourina, E.; Korsunskaya, IM; Geppe, NA; Chebysheva, SN; Soboleva, AG; Mezentsev, A. Die Rolle des Transkriptionsfaktors PPAR-gamma bei der Pathogenese von Psoriasis, Hautzellen und Immunzellen. Int. J. Mol. Wissenschaft. 2022, 23, 9708. [CrossRef]
57. Lied, S.; Attia, RR; Connaughton, S.; Niesen, MI; Ness, GC; Elam, MB; Hori, RT; Cook, GA; Park, EA Peroxisome Proliferator-Activated Receptor Alpha (PPARalpha) und PPAR Gamma Coactivator (PGC-1Alpha) induzieren Carnitin-Palmitoyltransferase IA (CPT-1A) über unabhängige Genelemente. Mol. Zelle. Endokrinol. 2010, 325, 54–63. [CrossRef]
58. Ziouzenkova, O.; Plutzky, J. Retinoidstoffwechsel und Kernrezeptorreaktionen: Neue Erkenntnisse zur koordinierten Regulation des PPAR-RXR-Komplexes. FEBS Lett. 2008, 582, 32–38. [CrossRef]
59. Espenshade, PJ; Hughes, AL Regulierung der Sterolsynthese in Eukaryoten. Annu. Rev. Genet. 2007, 41, 401–427. [CrossRef]
60. Van Meer, G.; Völker, DR; Feigenson, GW Membranlipide: Wo sie sind und wie sie sich verhalten. Nat. Rev. Mol. Zelle. Biol. 2008, 9, 112–124. [CrossRef]
61. Aguilar-Ballester, M.; Herrero-Cervera, A.; Vinue, A.; Martinez-Hervas, S.; Gonzalez-Navarro, H. Einfluss des Cholesterinstoffwechsels auf die Immunzellfunktion und Arteriosklerose. Nährstoffe 2020, 12, 2021. [CrossRef] [PubMed]
62. Mamedova, LK; Yuan, K.; Laudick, AN; Fleming, SD; Mashek, DG; Bradford, BJ Die Signalübertragung des Toll-like-Rezeptors 4 ist für die Induktion der glukoneogenen Genexpression durch Palmitat in menschlichen Leberkarzinomzellen erforderlich. J. Nutr. Biochem. 2013, 24, 1499–1507. [CrossRef] [PubMed]
63. Soto-Heredero, G.; Gomez de Las Heras, MM; Gabande-Rodriguez, E.; Oller, J.; Mittelbrunn, M. Glykolyse – Ein wichtiger Akteur bei der Entzündungsreaktion. FEBS J. 2020, 287, 3350–3369. [CrossRef] [PubMed]
64. Kominsky, DJ; Campbell, EL; Colgan, SP Stoffwechselverschiebungen in der Immunität und Entzündung. J. Immunol. 2010, 184, 4062–4068. [CrossRef]
65. Afacan, NJ; Yeung, AT; Pena, OM; Hancock, RE Therapeutisches Potenzial von Wirtsabwehrpeptiden bei antibiotikaresistenten Infektionen. Curr. Pharm. Des. 2012, 18, 807–819. [CrossRef]
66. Auvynet, C.; Rosenstein, Y. Multifunktionale Wirtsabwehrpeptide: Antimikrobielle Peptide, die kleinen, aber großen Akteure der angeborenen und adaptiven Immunität. FEBS J. 2009, 276, 6497–6508. [CrossRef]
67. Hilchie, AL; Würth, K.; Hancock, RE Immunmodulation durch vielfältige kationische (antimikrobielle) Wirtsabwehrpeptide. Nat. Chem. Biol. 2013, 9, 761–768. [CrossRef]
68. Cheng, Z.; Buggiotti, L.; Salavati, M.; Marchitelli, C.; Palma-Vera, S.; Wylie, A.; Takeda, H.; Tang, L.; Crowe, MA; Wathes, D.C.; et al. Globale transkriptomische Profile zirkulierender Leukozyten bei Kühen in der frühen Laktation mit klinischer oder subklinischer Mastitis. Mol. Biol. Rep. 2021, 48, 4611–4623. [CrossRef]
69. Foley, C.; Chapwanya, A.; Callanan, JJ; Whiston, R.; Miranda-CasoLuengo, R.; Lu, J.; Meijer, WG; Lynn, DJ; O'Farrelly, C.; Meade, KG Integrierte Analyse der lokalen und systemischen Veränderungen, die der Entwicklung einer postpartalen zytologischen Endometritis vorausgehen. BMC-Genom. 2015, 16, 811. [CrossRef]
70. Machado, VS; Silva, TH Adaptive Immunität im postpartalen Uterus: Möglicher Einsatz von Impfstoffen zur Kontrolle von Metritis. Theriogenology 2020, 150, 201–209. [CrossRef]
71. Ley, K.; Hoffmann, HM; Kubes, P.; Cassatella, MA; Zychlinsky, A.; Hedrick, CC; Catz, SD Neutrophils: Neue Erkenntnisse und offene Fragen. Wissenschaft. Immunol. 2018, 3, eaat4579. [CrossRef] [PubMed]
72. Wahl, SM; Feldman, GM; McCarthy, JB Regulierung der Leukozytenadhäsion und -signalisierung bei Entzündungen und Krankheiten. J. Leukoc. Biol. 1996, 59, 789–796. [CrossRef] [PubMed]
73. Schubert, K.; Polte, T.; Bonisch, U.; Schader, S.; Holtappels, R.; Hildebrandt, G.; Lehmann, J.; Simon, JC; Anderegg, U.; Saalbach, A. Thy-1 (CD90) reguliert die Extravasation von Leukozyten während einer Entzündung. EUR. J. Immunol. 2011, 41, 645–656. [CrossRef] [PubMed]
74. Dreymüller, D.; Prüssmeyer, J.; Schumacher, J.; Fellendorf, S.; Hess, FM; Seifert, A.; Babenreyer, A.; Bartsch, JW; Ludwig, A. Die Metalloproteinase ADAM8 fördert die Leukozytenrekrutierung in vitro und bei akuter Lungenentzündung. Bin. J. Physiol. Lungenzelle. Mol. Physiol. 2017, 313, L602–L614. [CrossRef]
75. Kostelnik, KB; Barker, A.; Schultz, C.; Mitchell, TP; Rajeeve, V.; Weiß, IJ; Aurrand-Lions, M.; Nourshargh, S.; Cutillas, P.; Nightingale, TD Der dynamische Transport und Umsatz von JAM-C ist für die Endothelzellmigration von wesentlicher Bedeutung. PLoS Biol. 2019, 17, e3000554. [CrossRef] [PubMed]
76. Stillie, R.; Farooq, SM; Gordon, JR; Stadnyk, AW Die funktionelle Bedeutung der Expression zweier IL-8-Rezeptortypen auf PMN. J. Leukoc. Biol. 2009, 86, 529–543. [CrossRef]
77. Bouton, AH; Riggins, RB; Bruce-Staskal, PJ Funktionen des Adapterproteins Cas: Signalkonvergenz und Bestimmung zellulärer Antworten. Oncogene 2001, 20, 6448–6458. [CrossRef]
78. Chen, X.; Cheng, Z.; Zhang, S.; Werling, D.; Wathes, DC Durch die Kombination genomweiter Assoziationsstudien und differenzieller Genexpressionsdatenanalysen werden Kandidatengene identifiziert, die die durch zwei verschiedene Krankheitserreger verursachte Mastitis bei der Milchkuh beeinflussen. Öffnen Sie J. Anim. Wissenschaft. 2015, 5, 358–393. [CrossRef]
79. Chang, GW; Hsiao, CC; Peng, YM; Vieira Braga, FA; Kragten, NA; Remmerswaal, EB; van de Garde, MD; Straußberg, R.; König, GM; Kostenis, E.; et al. Der Adhäsions-G-Protein-gekoppelte Rezeptor GPR56/ADGRG1 ist ein inhibitorischer Rezeptor in menschlichen NK-Zellen. Zelle. Rep. 2016, 15, 1757–1770. [CrossRef]
80. Bi, J.; Tian, Z. NK-Zell-Dysfunktion und Checkpoint-Immuntherapie. Vorderseite. Immunol. 2019, 10, 1999. [CrossRef]
81. Minuti, A.; Gallo, A.; Lopreiato, V.; Bruschi, S.; Piccioli-Cappelli, F.; Uboldi, O.; Trevisi, E. Einfluss der Wurfgröße auf das präpartale Stoffwechsel- und Aminosäureprofil bei Kaninchen. Tier 2020, 14, 2109–2115. [CrossRef] [PubMed]
82. Crookenden, MA; Moyes, KM; Kuhn-Sherlock, B.; Lehnert, K.; Walker, CG; Loor, JJ; Mitchell, MD; Murray, A.; Dukkipati, VSR; Vailati-Riboni, M.; et al. Transkriptomanalyse zirkulierender Neutrophiler bei metabolisch gestressten peripartal grasenden Milchkühen. J. Dairy Sci. 2019, 102, 7408–7420. [CrossRef] [PubMed]
83. Sharma, JN; Al-Omran, A.; Parvathy, SS Rolle von Stickstoffmonoxid bei entzündlichen Erkrankungen. Inflammopharmacology 2007, 15, 252–259. [CrossRef] [PubMed]
84. Martino, MR; Gutierrez-Aguilar, M.; Yiew, NKH; Lutkewitte, AJ; Sänger, JM; McCommis, KS; Ferguson, D.; Liss, KHH; Yoshino, J.; Renkemeyer, MK; et al. Durch die Stummschaltung der Alanintransaminase 2 in der Leber von Diabetikern wird die Hyperglykämie abgeschwächt, indem die Gluconeogenese aus Aminosäuren reduziert wird. Cell Rep. 2022, 39, 110733. [CrossRef] [PubMed]
85. Groß, AR; Yvan-Charvet, L. Cholesterin, Entzündung und angeborene Immunität. Nat. Rev. Immunol. 2015, 15, 104–116. [CrossRef]
86. Wathes, D.; Cheng, Z.; Mareiy, W.; Fouladi-Nasht, A. Mehrfach ungesättigte Fettsäuren und Fruchtbarkeit bei weiblichen Säugetieren: Ein Update. CABI Rev. 2013, 8, 1–14. [CrossRef]
87. Alipour, A.; van Oostrom, AJ; Izraeljan, A.; Verseyden, C.; Collins, JM; Frayn, KN; Plokker, TW; Elte, JW; Castro Cabezas, M. Leukozytenaktivierung durch triglyceridreiche Lipoproteine. Arteriosklerose. Thromb. Vasc. Biol. 2008, 28, 792–797. [CrossRef]
88. Castoldi, A.; Monteiro, LB; van Teijlingen Bakker, N.; Sanin, DE; Rana, N.; Corrado, M.; Cameron, AM; Hassler, F.; Matsushita, M.; Caputa, G.; et al. Die Triacylglycerinsynthese verstärkt die Entzündungsfunktion von Makrophagen. Nat. Komm. 2020, 11, 4107. [CrossRef]
89. Bell, AW Regulierung des organischen Nährstoffstoffwechsels während des Übergangs von der späten Schwangerschaft zur frühen Laktation. J. Anim. Wissenschaft. 1995, 73, 2804–2819. [CrossRef]
90. Moore, DAPSU; Varga, G. BUN und MUN: Harnstoffstickstofftests bei Milchvieh. Kompendium 1996, 18, 712–720.
91. Wathes, DC; Bourne, N.; Cheng, Z.; Mann, GE; Taylor, VJ; Coffey, MP Multiple Korrelationsanalysen von metabolischen und endokrinen Profilen mit der Fruchtbarkeit bei primiparen und multiparen Kühen. J. Dairy Sci. 2007, 90, 1310–1325. [CrossRef] [PubMed]
92. Abe, R.; Donnelly, SC; Peng, T.; Bucala, R.; Metz, CN Periphere Blutfibrozyten: Differenzierungsweg und Migration zu Wundstellen. J. Immunol. 2001, 166, 7556–7562. [CrossRef] [PubMed]
93. Schreier, S.; Triampo, W. Die im Blut zirkulierende seltene Zellpopulation. Was ist das und wofür ist es gut? Zellen 2020, 9, 790. [CrossRef] [PubMed]
94. Lynn, AK; Yannas, IV; Bonfield, W. Antigenität und Immunogenität von Kollagen. J. Biomed. Mater. Res. 2004, 71, 343–354. [CrossRef]
95. Roche, JR; Burke, CR; Crookenden, MA; Heiser, A.; Loor, JL; Meier, S.; Mitchell, MD; Phyn, CVC; Turner, SA Fruchtbarkeit und die Übergangsmilchkuh. Reproduktion. Fruchtbar. Entwickler 2017, 30, 85–100. [CrossRef]
96. Galvao, KN; Flaminio, MJ; Brittin, SB; Sper, R.; Fraga, M.; Caixeta, L.; Ricci, A.; Wache, CL; Butler, WR; Gilbert, RO Zusammenhang zwischen Uteruserkrankungen und Indikatoren des Neutrophilen- und systemischen Energiestatus bei laktierenden Holstein-Kühen. J. Dairy Sci. 2010, 93, 2926–2937. [CrossRef]
97. Dahl, MO; Maunsell, FP; De Vries, A.; Galvao, KN; Risco, Kalifornien; Hernandez, JA Hinweise darauf, dass Mastitis bei Milchkühen zum Verlust der Trächtigkeit führen kann: Eine systematische Überprüfung von Beobachtungsstudien. J. Dairy Sci. 2017, 100, 8322–8329. [CrossRef]
98. Hansen, PJ; Soto, P.; Natzke, RP Mastitis und Fruchtbarkeit bei Rindern – mögliche Beteiligung von Entzündungen oder Immunaktivierung an der Embryonalsterblichkeit. Bin. J. Reproduktion. Immunol. 2004, 51, 294–301. [CrossRef]
99. Malinowski, E.; Gajewski, Z. Mastitis und Fruchtbarkeitsstörungen bei Kühen. Pol. J. Tierarzt. Wissenschaft. 2010, 13, 555–560.
100. Edmonson, AJ; Lean, IJ; Weaver, LD; Farver, T.; Webster, GA Eine Tabelle zur Bewertung der Körperkondition von Holstein-Milchkühen. J. Dairy Sci. 1989, 72, 11. [CrossRef]
101. Larsen, T.; Rontved, CM; Ingvartsen, KL; Vels, L.; Bjerring, M. Enzymaktivität und Akute-Phase-Proteine in Milch als Indikatoren für akute klinische E. coli-LPS-induzierte Mastitis. Tier 2010, 4, 1672–1679. [CrossRef] [PubMed]
102. Krogh, MA; Hostens, M.; Salavati, M.; Grelet, C.; Sorensen, MT; Wathes, D.C.; Ferris, CP; Marchitelli, C.; Signorelli, F.; Napolitano, F.; et al. Unterschiede zwischen und innerhalb der Herde bei Blut- und Milchbiomarkern bei Holstein-Kühen in der frühen Laktation. Tier 2020, 14, 1067–1075. [CrossRef] [PubMed]
103. Buggiotti, L.; Cheng, Z.; Wathes, D.C.; Gplus, EC Die Analyse der nicht kartierten Reads in Rinder-RNA-Seq-Daten zeigt die Prävalenz des Rinderherpesvirus-6 bei europäischen Milchkühen und die damit verbundenen Veränderungen in ihrem Phänotyp und Leukozyten-Transkriptom. Viren 2020, 12, 1451. [CrossRef] [PubMed]
104. Beltman, ME; Forde, N.; Furney, P.; Carter, F.; Roche, JF; Lonergan, P.; Crowe, MA Charakterisierung der endometrialen Genexpression und Stoffwechselparameter bei Rinderfärsen, die am Tag 7 nach der Befruchtung lebensfähige oder nicht lebensfähige Embryonen hervorbringen. Reproduktion. Fruchtbar. Entwickler 2010, 22, 987–999. [CrossRef] [PubMed]