Spike und Nsp6 sind Schlüsselfaktoren für die Abschwächung von SARS-CoV-2 Omicron BA.1
Dec 18, 2023
Die SARS-CoV-2-Omicron-Variante ist immunevasiver und weniger virulent als andere große Virusvarianten, die bisher erkannt wurden1–12. Als Haupttreiber dieser Phänotypen gilt das Omicron-Spike (S)-Protein, das ungewöhnlich viele Mutationen aufweist. Hier haben wir chimäres rekombinantes SARS-CoV-2 erzeugt, das für das S-Gen von Omicron (BA.1-Linie) im Rückgrat eines angestammten SARS-CoV-2-Isolats kodiert, und dieses Virus mit dem natürlich zirkulierenden Omicron verglichen Variante. Das Omicron S-tragende Virus entkam der impfstoffinduzierten humoralen Immunität robust, hauptsächlich aufgrund von Mutationen im Rezeptorbindungsmotiv; Im Gegensatz zu natürlich vorkommendem Omicron replizierte es sich jedoch effizient in Zelllinien und primärähnlichen distalen Lungenzellen. Auch bei K18-hACE2-Mäusen verursachte das virustragende Omicron S zwar weniger schwere Erkrankungen als das Vorfahrenvirus, seine Virulenz war jedoch nicht auf das Niveau von Omicron abgeschwächt. Weitere Untersuchungen zeigten, dass die Mutation des Nichtstrukturproteins 6 (nsp6) zusätzlich zum S-Protein ausreichte, um den abgeschwächten Phänotyp von Omicron wiederherzustellen. Dies weist darauf hin, dass die Pathogenität von Omicron durch Mutationen sowohl innerhalb als auch außerhalb des S-Proteins bestimmt wird, obwohl die Impfstoffflucht von Omicron durch Mutationen im S-Protein verursacht wird.

Cistanche tubulosa – verbessert das Immunsystem
Seit Dezember 2022 wurden die aufeinanderfolgenden Wellen der COVID-19-Pandemie von fünf großen SARS-CoV-2-Varianten, den sogenannten Varianten of Concern (VOC), angetrieben: Alpha (B.1.1.7) , Beta (B.1.351), Gamma (P.1), Delta (B.1.617.2- und AY-Linien) und Omicron (BA-Linien)13. Omicron ist die zuletzt anerkannte VOC und wurde erstmals im November 2021 in Südafrika, Botswana und von einem Reisenden aus Südafrika in Hongkong dokumentiert (GISAID-ID: EPI_ISL_7605742)14. 15. Es verbreitete sich schnell über die Welt, verdrängte innerhalb weniger Wochen die zuvor vorherrschende Delta-Variante und war bis Januar 2022 für die meisten neuen SARS-CoV-2-Infektionen verantwortlich (Ref. 16–18). Bisher wurden mindestens fünf Abstammungslinien von Omicron identifiziert: BA.1, BA.2, BA.3, BA.4 und BA.5. BA.1 (im Folgenden als Omicron bezeichnet) zeigt eine bemerkenswerte Flucht vor der durch Infektionen und Impfstoffe verursachten humoralen Immunität3,19. Darüber hinaus ist es beim Menschen und in In-vivo-Infektionsmodellen weniger virulent als andere VOCs4,5,7,11,12,20. Omicron unterscheidet sich vom Prototyp des SARS-CoV-2-Isolats, Wuhan-Hu-1, durch 59 Aminosäuren; 37 dieser Veränderungen betreffen das S-Protein, was die Möglichkeit nahelegt, dass S das Herzstück des pathogenen und antigenen Verhaltens von Omicron ist.

Cistanche tubulosa – verbessert das Immunsystem
S-Mutationen beeinflussen die Omicron-Replikation in der Zellkultur
Das Omicron S-Protein enthält 30 Aminosäuresubstitutionen, 6 Deletionen und eine Insertion mit einer Länge von 3 Aminosäuren im Vergleich zu Wuhan-Hu-1 (Extended Data Abb. 1). Fünfundzwanzig dieser Veränderungen treten im Vergleich zu anderen VOCs nur bei Omicron auf, obwohl einige davon im Abwasser und bei kleineren SARS-CoV-2-Varianten gemeldet wurden21,22. Um die Rolle des S-Proteins im Omicron-Phänotyp zu testen, haben wir ein chimäres rekombinantes Virus erzeugt, das das S-Gen von Omicron (USA-lh01/2021) und alle anderen Gene eines angestammten SARS-CoV-2 (GISAID EPI{ {16}}ISL_2732373)23 (Erweiterte Daten Abb. 2a). Dieses chimäre Virus mit der Bezeichnung Omi-S wurde unter Verwendung einer modifizierten Form der zirkulären Polymerase-Verlängerungsreaktion (CPER)24 (Extended Data Abb. 2b) hergestellt, die hochkonzentrierte Virusbestände mit 0,5 × 10⁶ –5 × 10⁶ Plaque-bildenden Substanzen ergab Einheiten (PFU) pro ml aus transfizierten Zellen innerhalb von zwei Tagen nach der Transfektion (Extended Data Abb. 2c,d), wodurch die Notwendigkeit einer weiteren Virusamplifikation entfällt.
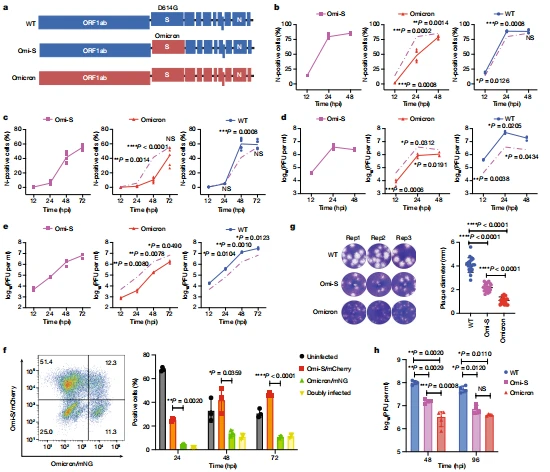
Abb. 1|Einfluss von S auf die In-vitro-Wachstumskinetik von Omicron. ein Schema von Viren. S, Spitze; N, Nukleokapsid. b–e, ACE2/TMPRSS2/Caco-2-Zellen (b,d) und Vero E6-Zellen (c,e) wurden mit einer MOI von 0.01 infiziert, und die Der Prozentsatz N-positiver Zellen (n=6 Replikate) (b, c) und die Freisetzung infektiöser Partikel (n=3 Replikate) (d, e) wurden durch Durchflusszytometrie und Plaque-Assay bestimmt. jeweils. f, ACE2/TMPRSS2/Caco-2-Zellen wurden mit Virusmischungen im Verhältnis 1:1 infiziert, um die endgültige MOI von 0.005 für jedes Virus zu erhalten . Die Zellen wurden zu den angegebenen Zeiten fixiert und einer Durchflusszytometrie unterzogen. Links, repräsentatives Punktdiagramm; rechts, Prozentsatz nicht infizierter, Omi-S/mCherry-infizierter, Omicron/mNeoGreen (Omicron/mNG)-infizierter und doppelt infizierter Zellen. Zur Kompensation wurden einzeln infizierte Zellen verwendet. Fehlerbalken, Mittelwert ± Standardabweichung (n {{20}} Replikate). g, Plaquegrößen. Links, repräsentative Bilder von Plaques auf ACE2/TMPRSS2/Caco-2-Zellen. Rechts ist der Durchmesser der Plaques als Mittelwert ± Standardabweichung von 20 Plaques pro Virus aufgetragen. h, Humane iAT2-Epithelzellen wurden 48 oder 96 Stunden lang mit einer MOI von 2,5 infiziert. Die apikale Seite der Zellen wurde mit 1× phosphatgepufferter Kochsalzlösung (PBS) gewaschen und die Konzentrationen infektiöser Viruspartikel wurden durch Plaque-Assay gemessen. Fehlerbalken, Mittelwert ± Standardabweichung (n=4 Replikate). Die Experimente wurden zweimal wiederholt, wobei jede experimentelle Wiederholung 3 (b–g) oder 4 (h) Replikate enthielt. Die P-Werte wurden durch einen zweiseitigen, ungepaarten t-Test mit Welch-Korrektur berechnet. *P < 0,05, **P < 0,01, ***P < 0,001 und ****P < 0,0001; NS, nicht signifikant. Die Gating-Strategie für die Durchflusszytometrie ist in der ergänzenden Abbildung 1 dargestellt.
Wir verglichen zunächst die Infektionseffizienz von Omi-S mit einem angestammten D614G-haltigen Virus (GISAID EPI_ISL_2732373; erzeugt von CPER; im Folgenden als Wildtyp (WT) bezeichnet) und einem Omicron-Isolat (USA-lh01/2021) in Zellkultur (Abb. 1a). Zu diesem Zweck infizierten wir ACE2-- und TMPRSS2-exprimierende Caco-2-Zellen (im Folgenden ACE2/TMPRSS2/Caco-2) und Vero E6-Zellen mit Omi-S, WT und Omicron bei einer Infektionsmultiplizität (MOI) von 0,01 untersucht und die Virusvermehrung mittels Durchflusszytometrie und Plaquebildungsassay überwacht. Das WT-Virus und Omi-S breiten sich schnell in ACE2/TMPRSS2/Caco-2-Zellen aus und ergaben 24 Stunden nach der Infektion (HPI) 89 % bzw. 80 % infizierte Zellen (Abb. 1b). Im Gegensatz dazu replizierte Omicron langsamer, was bei 24 hpi zu 48 % infizierten Zellen führte. Ein ähnliches Muster wurde bei Vero E6-Zellen beobachtet, bei denen 60 % bzw. 41 % der Zellen bei 48 hpi positiv für WT bzw. Omi-S waren, im Gegensatz zu 10 % für Omicron (Abb. 1c). Der Plaque-Assay zeigte, dass sowohl Omi-S als auch Omicron im Vergleich zu WT geringere Mengen an infektiösen Viruspartikeln produzierten, der Virustiter von Omi-S jedoch deutlich höher war als der von Omicron. In ACE2/TMPRSS2/Caco-2-Zellen produzierte Omi-S das 5.1-fache (P=0.0006) und das 5.5-fache (P {{49}) }.0312) mehr infektiöse Partikel als Omicron mit 12 hpi bzw. 24 hpi (Abb. 1d). In ähnlicher Weise waren in Vero-E6-Zellen die infektiösen Virustiter von Omi-S um das 17-fache (P=0,0080) bzw. das 11-fache (P=0,0078) höher als die von Omicron mit 24 PSi bzw. 48 PSi (Abb. 1e). Der Unterschied zwischen den Viren wurde zu späteren Zeitpunkten aufgrund der höheren Zytotoxizität von Omi-S im Vergleich zu Omicron weniger deutlich (Erweiterte Daten, Abb. 3a). Die erhöhte Replikationseffizienz von Omi-S im Vergleich zu Omicron blieb beim Testen bei unterschiedlichen MOIs erhalten (Erweiterte Daten, Abb. 3b). Wir haben den Fitnessvorteil von Omi-S gegenüber Omicron außerdem durch einen direkten Konkurrenztest bestätigt. Zu diesem Zweck haben wir zunächst rekombinantes Omicron (Mikron) erzeugt, das in unseren Zellkulturtests die Replikationskinetik des natürlichen Omicron nachahmte (Extended Data Abb. 4). Als nächstes erstellten wir mCherry-haltiges Omi-S und mNeonGreen-haltiges Omicron und inokulierten ACE2/TMPRSS2/Caco-2-Zellen mit diesen Viren, gemischt im Verhältnis 1:1. Die durchflusszytometrische Analyse infizierter Zellen zu verschiedenen Zeitpunkten der Infektion zeigte, dass Omi-S/mCherry Omicron/mNeonGreen hinsichtlich der Replikation deutlich überlegen war (Abb. 1f). Schließlich spiegelte sich die höhere Infektionseffizienz von Omi-S auch in der Plaquegröße wider; Obwohl das WT-Virus die größten Plaques produzierte (ca. 4,1 mm), war die Größe der Omi-S-Plaques (ca. 2,2 mm) doppelt so groß (P < 0,0001) wie die der Omicron-Plaques (ca. 1,1 mm) (Abb. 1g). Diese Ergebnisse deuten darauf hin, dass Mutationen im S-Protein zwar die Infektionseffizienz von Omicron beeinflussen, den Omicron-Phänotyp jedoch nicht vollständig erklären.
Mehrere Hinweise deuten darauf hin, dass sich das in Omi-S eingebaute S-Protein genauso verhält wie in natürlichem Omicron. Beispielsweise wurde Omicron S, wie zuvor beschrieben20,25, im Vergleich zu WT S schlecht gespalten; Während 71 % des S in WT-Virionen in gespaltener Form vorlag, waren in Omi-S und Omicron nur 45 % bzw. 47 % gespalten (Extended Data Abb. 5a). Das gleiche Muster der S-Spaltung war in virusinfizierten Zellen erkennbar (WT, 63 % gespalten; Omi-S, 33 % gespalten; Omicron, 42 % gespalten) (Extended Data Abb. 5b). Diese Experimente zeigten auch, dass Omicron S im Vergleich zu WT S ineffizient in Viruspartikel eingebaut wurde (Verhältnis von S zu Nukleokapsid (N): 3,40 für WT-Virus, 1,91 für Omi-S und 2,04 für Omicron) (Extended Data Abb. 5a). In ähnlicher Weise produzierten sowohl Omi-S als auch Omicron im Vergleich zum WT-Virus kleinere Synzytien, eine Beobachtung, die bereits zuvor für Omicron berichtet wurde20,26 (Extended Data Abb. 5c). Schließlich zeigten Omi-S und Omicron im Einklang mit der veröffentlichten Literatur25 eine Präferenz für den kathepsinvermittelten Eintritt, was sich in ihrer höheren Empfindlichkeit gegenüber dem Cathepsin-Inhibitor E64d widerspiegelte (Extended Data Abb. 6). Als nächstes verglichen wir die Replikationskinetik von WT, Omi-S und Omicron in Lungenepithelzellen, die eine wichtige Virusreplikationsstelle bei Patienten mit COVID-19 bilden (Ref. 27,28). Dementsprechend verwendeten wir aus humanen induzierten pluripotenten Stammzellen (iPS) gewonnene Lungenalveolar-Typ-2-Epithelzellen (iAT2). AT2-Zellen stellen eine wesentliche Zellpopulation in der distalen Lunge dar und sind eines der Hauptziele einer SARS-CoV-2-Infektion28,29. Wir infizierten iAT2-Zellen, die als Luft-Flüssigkeits-Schnittstellenkultur (ALI) gezüchtet wurden, mit einer MOI von 2,5 und überwachten die Sekretion viraler Nachkommen auf der apikalen Seite der Zellen bei 48 hpi und 96 hpi. In Übereinstimmung mit den Ergebnissen aus Zelllinien produzierte das WT-Virus die höchsten Mengen an infektiösen Viruspartikeln (Abb. 1h). Unter Omi-S und Omicron ergab ersteres einen etwa fünffach (P=0.0008) höheren Titer infektiöser Viren bei 48 PS. Die Virustiter für WT und Omi-S sanken bei 96 dpi im Vergleich zu 48 hp aufgrund des zytopathischen Effekts (CPE) der Infektion. Bei Omicron wurde jedoch kein CPE beobachtet, was zu einer anhaltenden Produktion infektiöser Virionen führte. Insgesamt bestätigen diese Ergebnisse die Schlussfolgerung, dass Mutationen in S nicht vollständig für die abgeschwächte Replikationskapazität von Omicron in Zellkulturen verantwortlich sind.
Vorteile von Cistanche für Männer: Stärkung des Immunsystems
Klicken Sie hier, um die Produkte von Cistanche Enhance Immunity anzusehen
【Fragen Sie nach mehr】 E-Mail:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Minimale Rolle von S bei der Omicron-Pathogenität bei Mäusen
Um zu untersuchen, ob Omi-S im Vergleich zu Omicron eine höhere In-vivo-Fitness aufweist, untersuchten wir das Infektionsergebnis von Omi-S im Vergleich zu WT SARS-CoV-2 und Omicron bei K18-hACE2-Mäusen. In Übereinstimmung mit der veröffentlichten Literatur4,5 verursachte die intranasale Inokulation von Mäusen (im Alter von 12–20 Wochen) mit Omicron (104 PFU pro Maus) keinen signifikanten Gewichtsverlust, wohingegen die Inokulation mit dem WT-Virus bei allen Mäusen eine schnelle Abnahme des Körpergewichts auslöste 8 Tage nach der Infektion verloren sie über 20 % ihres ursprünglichen Körpergewichts (dpi) (Abb. 2a). Bemerkenswerterweise verloren 80 % der mit Omi-S infizierten Mäuse auch über 20 % ihres Körpergewichts um 9 dpi (Abb. 2a und erweiterte Daten Abb. 7a). Die Auswertung klinischer Scores (ein kumulatives Maß für Gewichtsverlust, abnormale Atmung, abweichendes Aussehen, verminderte Reaktionsfähigkeit und verändertes Verhalten) ergab ebenfalls ein ähnliches Muster; Während Omicron-infizierte Mäuse nur wenige bis gar keine Anzeichen einer klinischen Erkrankung zeigten, verschlechterte sich der Gesundheitszustand der mit WT und Omi-S infizierten Mäuse rasch, wobei das WT-Virus eine schwerere Erkrankung verursachte (P=0.0102) (Abb. 2b und erweiterte Daten Abb. 7b). Da SARS-CoV-2 bei K18-hACE2-Mäusen4 eine tödliche Infektion verursacht, haben wir das Überleben von Mäusen nach einer Virusinfektion verglichen. In Übereinstimmung mit den Ergebnissen des Körpergewichtsverlusts und des klinischen Scores verursachten WT und Omi-S Sterblichkeitsraten von 100 % (6/6) bzw. 80 % (8/10). Im Gegensatz dazu überlebten alle mit Omicron infizierten Mäuse (Abb. 2c). Diese Ergebnisse, die mit einer aktuellen Veröffentlichung30 übereinstimmen, weisen darauf hin, dass das S-Protein nicht der ausschließliche Faktor für die Pathogenität von Omicron in K18-hACE2-Mäusen ist.
Als nächstes verglichen wir die Ausbreitung von Omi-S mit Omicron und WT SARS-CoV-2 in den Lungen und Nasenmuscheln von K18-hACE2-Mäusen. Die Mäuse (12–20 Wochen alt) wurden intranasal mit 104 PFU (sieben Mäuse pro Virus) belastet und die Virustiter in der Lunge der Mäuse wurden bei 2 und 4 dpi gemessen. In Übereinstimmung mit den In-vitro-Befunden war der infektiöse Virustiter in der Lunge von WT-infizierten Mäusen höher als der bei Mäusen, die mit den beiden anderen Viren infiziert waren (Abb. 2d). Bemerkenswert ist jedoch, dass Omi-S-infizierte Mäuse bei 2 dpi 30-fach (P=0.0286) mehr infektiöse Viruspartikel produzierten als Omicron-infizierte Mäuse. Der Titer nahm bei WT- und Omi-S-infizierten Mäusen bei 4 dpi ab, zeigte jedoch einen zunehmenden Trend bei Omicron-infizierten Mäusen, was auf die Möglichkeit einer leichten, aber anhaltenden Infektion durch Omicron bei K18-hACE2-Mäusen hinweist. Alle drei aus den Lungen von Mäusen gewonnenen Varianten behielten den gleichen Plaquegrößen-Phänotyp wie das ursprüngliche Inokulum bei, was darauf hindeutet, dass die Replikation bei Mäusen keinen erkennbaren Einfluss auf die Genotypen dieser Viren hatte (Daten nicht gezeigt).
Um die virale Pathogenität in Lungen und Nasenmuscheln von K18-hACE2-Mäusen zu bewerten, führten wir eine histopathologische Analyse dieser Gewebe bei 2 dpi durch. Wie bereits berichtet4,31 wurde eine ausgedehnte nahezu diffuse Immunreaktivität des SARS-CoV-2 N-Proteins in Lungenalveolen von Mäusen nachgewiesen, die mit dem WT-Virus infiziert waren (Abb. 2e). Im Gegensatz dazu führten Omi-S- und Omicron-Infektionen zu lokalisierten alveolären Verfärbungsherden, wobei es bei Omicron im Vergleich zu Omi-S weniger Herde gab. Der ausgeprägteste Phänotyp wurde im bronchiolären Epithel beobachtet, bei dem Omi-S eine ausgeprägte, routinemäßig umlaufende Infektion verursachte, wobei etwa 10–15 % der Bronchiolen bei 2 dpi positiv für virales N-Protein waren, während nur 3–5 % der Bronchiolen N waren -positiv für Omicron (Abb. 2f). Das WT-Virus infizierte etwa 1 % der Bronchiolen und umfasste in allen Fällen nur eine einzige isolierte Epithelzelle pro Bronchiole. Darüber hinaus war eine bronchioläre Infektion mit epithelialer Nekrose bei Omi-S-infizierten Mäusen verbunden, wie durch serielle Hämatoxylin- und Eosin-Schnittanalyse (H&E) bestimmt wurde, wohingegen bei Omicron- oder WT-infizierten Mäusen kein histologischer Hinweis auf eine Atemwegsverletzung beobachtet wurde (Erweiterte Daten). Abb. 8a,b). Die Nasenmuscheln von Mäusen, die mit WT- und Omi-S-Viren geimpft wurden, enthielten beide reichlich SARS-CoV-2--positive Zellen, die mit offensichtlichen zytopathischen Wirkungen verbunden waren, wohingegen Omicron seltene, sporadisch positive Zellen ohne offensichtliche Anzeichen von Epithelbildung produzierte Verletzung (Extended Data Abb. 8c). Insgesamt deuten diese Ergebnisse darauf hin, dass die Replikation von Omicron im Atemtrakt von Mäusen im Vergleich zu Omi-S erheblich abgeschwächt ist, was unsere Schlussfolgerung stützt, dass Mutationen in S nur teilweise für die abgeschwächte Pathogenität von Omicron verantwortlich sind.
Mutationen in S und nsp6 definieren die Omicron-Abschwächung
Zusätzlich zum S-Protein weist Omicron im Vergleich zum WT-Virus Aminosäureveränderungen in den Nichtstrukturproteinen 3 (nsp3), nsp4, nsp5, nsp6, nsp14, den Hüllproteinen (E), der Membran (M) und den N-Proteinen auf (Erweiterte Daten Abb. 9a). Um Nicht-Spike-Proteine zu identifizieren, die an der Omicron-Abschwächung beteiligt sind, haben wir eine große Gruppe fluoreszenzmarkierter chimärer Viren erstellt, die jeweils Omicron S in Kombination mit einem Nicht-Spike-Protein von Omicron enthalten, wobei die übrigen Proteine vom WT-Virus stammen (Extended Data). Abb. 9b). Als wir Omicron S mit Omicron nsp6 (Omi-S/nsp6) kombinierten, beobachteten wir einen starken Rückgang der Virusreplikation, wobei die Infektionskinetik denen von Omicron in Zellkultur nachahmte (Abb. 3a–d); Bei anderen chimären Viren wurde kein solcher Rückgang beobachtet. Die schlechte Replikationseffizienz von Omi-S/nsp6 wurde auch durch unsere Feststellung bestätigt, dass die Wiederherstellung von Omi-S/nsp6 und Omicron durch CPER fast fünf bis sechs Tage dauerte, während alle anderen Varianten innerhalb von zwei Tagen wiederhergestellt wurden (Daten nicht gezeigt). Schließlich wurde Omi-S/nsp6 wie Omicron in einem direkten Konkurrenztest deutlich von Omi-S übertroffen (Abb. 3e).

Abb. 2|Rolle von S bei der Pathogenität von Omicron. a–c: Männliche und weibliche K18-hACE2-Mäuse (Alter 12–20 Wochen) wurden intranasal mit 1 × 10⁴ PFU WT (n=6 Mäuse), Omi-S (n=10 Mäuse) oder Omicron (n {{1{{40}}}} Mäuse) Virus. In diesem Experiment wurden zwei unabhängig voneinander erzeugte Virusbestände verwendet. Körpergewicht (a), klinischer Score (b) und Überleben (c) wurden 14 Tage lang täglich überwacht. Mäuse, die 20 % ihres ursprünglichen Körpergewichts verloren hatten, wurden eingeschläfert. d,e, K18-hACE2-Mäuse wurden intranasal mit 1 × 10⁴ PFU WT (n=14-Mäusen), Omi-S (n=14-Mäusen) und Omicron (n {{ 20}} Mäuse). Lungenproben der infizierten Mäuse wurden mit 2 oder 4 dpi gesammelt, um den Virustiter (n=4 Mäuse) (d) oder für den immunhistochemischen (IHC) Nachweis des N-Proteins (n = 3 Mäuse) zu bestimmen. (e). In e werden repräsentative IHC-Bilder präsentiert, die SARS-CoV-2 N (braune Farbe) in Alveolen (Pfeile) und Bronchiolen (Pfeilspitzen) in der Lunge von Mäusen bei 2 dpi zeigen. Maßstabsbalken, 100 µm. f, Prozentsatz der N-positiven Bronchiolen in der Lunge infizierter Mäuse (n=3 Mäuse) bei 2 dpi. Jeder Punkt repräsentiert eine infizierte Maus. Die statistische Signifikanz wurde mithilfe eines zweiseitigen, ungepaarten t-Tests mit Welch-Korrektur (a,b,d,f) und Log-Rank-Test (Mantel-Cox) (c) bestimmt. *P < 0,05, **P < 0,01, ***P < 0,001 und ****P < 0,0001; NS, nicht signifikant.
Während Omi-S in der Lunge von K18-hACE2-Mäusen ausgedehnte bronchioläre Infektionen und Verletzungen verursachte, zeigten sowohl Omicron als auch Omi-S/nsp6 eine verminderte Infektion ohne Anzeichen einer Epithelschädigung (Abb. 3f). In Übereinstimmung mit diesen Erkenntnissen erzeugten die Lungen von Omi-S/nsp6-infizierten Mäusen Virustiter, die denen entsprachen, die für rOmicron und Omicron-Isolat beobachtet wurden (Abb. 3g). Schließlich überlebten 71 % der mit Omi-S/nsp6 infizierten Mäuse (Abb. 3h) – im Gegensatz zu den Überlebensraten von nur 20 %, die bei mit Omi-S infizierten Mäusen beobachtet wurden (Abb. 2c). Insgesamt deuten diese Ergebnisse darauf hin, dass Mutationen in S und nsp6 ausreichen, um die abgeschwächte Virulenz von Omicron zu definieren. Diese Beobachtungen stützen und erweitern die Ergebnisse einer früheren Studie, die zeigt, dass Mutationen in der 5′-UTR-nsp12-Region, in der sich nsp6 befindet, zur Abschwächung von Omicron in K18-hACE2-Mäusen beitragen30.

Abb. 3|Mutationen in S und nsp6 steuern die Pathogenität von Omicron.a–d, Replikationskinetik der angegebenen mNeonGreen-Reporterviren in ACE2/TMPRSS2/Caco-2-Zellen (MOI=0.01), bestimmt durch Fluss Zytometrie (n=3 Replikate) (a,c) und Plaque-Assay (n=3 Replikate) (b,d). Die Experimente wurden zweimal wiederholt. e, ACE2/TMPRSS2/Caco-2-Zellen wurden mit Virusmischungen im Verhältnis 1:1 infiziert, um die endgültige MOI von 0.005 für jedes Virus zu erhalten . Die Zellen wurden zu den angegebenen Zeiten fixiert und mittels Durchflusszytometrie analysiert. Der Prozentsatz nicht infizierter, einfach infizierter und doppelt infizierter Zellen wird angezeigt. Zur Kompensation wurden einzeln infizierte Zellen verwendet. Einzelne Datenpunkte werden zusammen mit dem Mittelwert ± Standardabweichung (n=3 Replikate) dargestellt. Der Versuch wurde zweimal wiederholt. f–h, K18-hACE2-Mäuse wurden intranasal mit 1 × 10⁴ PFU Viren geimpft. Lungenproben infizierter Mäuse wurden mit 2 dpi zum IHC-Nachweis des N-Proteins (n = 3 Mäuse) (f) oder zur Bestimmung der Virustiter (n=4 Mäuse) (g) gesammelt. In f sind repräsentative Bilder der H&E-Färbung von N-positiven Bronchiolen in Einschüben dargestellt. Bronchioläre Epithelnekrose ist durch Pfeile gekennzeichnet. In den Bronchiolen von Mäusen, die mit Omicron oder Omi-S/nsp6 infiziert waren, wurden keine Anzeichen einer Nekrose beobachtet. Maßstabsbalken, 100 µm. Die rechte Grafik in f zeigt den Prozentsatz N-positiver Bronchiolen in der Lunge infizierter Mäuse. Jeder Punkt repräsentiert eine infizierte Maus. h, Überleben infizierter Mäuse, täglich 14 Tage lang überwacht. Mäuse, die 20 % ihres ursprünglichen Körpergewichts verloren hatten, wurden eingeschläfert. Die statistische Signifikanz wurde mithilfe eines zweiseitigen, ungepaarten t-Tests mit Welch-Korrektur (a–g) und Log-Rank-Test (Mantel-Cox) (h) bestimmt. *P < 0,05, **P < 0,01, ***P < 0,001 und ****P < 0,0001; NS, nicht signifikant.
Das S-Protein RBM treibt Omicrons Impfstoffflucht voran
Eine umfangreiche Literatur hat Beweise dafür geliefert, dass Omicron der impfstoffinduzierten humoralen Immunität weitgehend entkommen ist14,19. Um S-Regionen zu definieren, die mit dem Immunescape-Phänotyp von Omicron assoziiert sind, verglichen wir zunächst die In-vitro-Neutralisationsaktivität von Seren geimpfter Personen gegen WT SARS-CoV-2 (USA-WA1/20 20), Omi-S und Omicron. Seren, die innerhalb von zwei Monaten nach der zweiten Dosis des mRNA-Impfstoffs -1273 (Moderna mRNA-Impfstoff; n=12) oder des BNT162b2-Impfstoffs (Pfizer-BioNTech mRNA-Impfstoff; n=12) gesammelt wurden, waren enthalten (Erweiterte Daten). Tabelle 1). Wir führten einen Multizyklus-Neutralisationstest in einer Umgebung durch, in der das Virus und neutralisierende Seren jederzeit vorhanden waren, und ahmten die Situation bei einer seropositiven Person nach. Alle Seren neutralisierten Omicron schlecht, mit einer 11,1-fachen (Bereich: 4,4-fachen bis 81,2-fachen; P < 0,0001) unteren halbmaximalen neutralisierenden Verdünnung (ND50) für Omicron im Vergleich zu WA1 (Abb. 4a, b). Tatsächlich neutralisierten rund 80 % der Proben Omicron bei der höchsten getesteten Konzentration nicht vollständig (Erweiterte Daten, Abb. 10). Bemerkenswerterweise zeigte Omi-S identische ND50-Werte wie Omicron (11,5-fach niedriger als die von WA1; P <0,0001) (Abb. 4a, b), was darauf hindeutet, dass das Omicron S-Protein bei Einbau in einen WT Virus, verhält sich genauso wie in Omicron.

Abb. 4|Rolle von S bei der Immunresistenz von Omicron. ND50-Werte für WA1, Omi-S und Omicron in Seren von Personen, die zwei Impfungen mit dem Impfstoff Moderna (Spender 1–12) oder Pfizer (Spender 13–24) erhalten haben (weitere Einzelheiten zu den Seren finden Sie im Abschnitt „Erweitert“) Datentabelle 1; einzelne Kurven sind in der erweiterten Datenabbildung 10) dargestellt. b, Trajektorien der ND50-Werte gegen WA1, Omi-S und Omicron (die Daten aus a sind dargestellt). Die fache Änderung der ND50-Werte ist angegeben (n=24 Serumproben). c–f, Schematische Darstellung der chimären (links; c,d) und mutierten (links; e,f) Viren. Die Aminosäurenummerierung für WA1-Mutanten in e basiert auf der WA1-S-Sequenz, während die Nummerierung für Omicron-Mutanten in f auf der Omicron-S-Sequenz basiert. Sechs der 24 Seren (3 von Moderna und 3 von Pfizer) wurden getestet. Jede Serumprobe wird durch einen Punkt einer bestimmten Farbe dargestellt. Die Daten werden als Faltungsänderung des Elternvirus dargestellt. Die statistische Signifikanz wurde mithilfe eines zweiseitigen, ungepaarten t-Tests mit Welch-Korrektur ermittelt. *P < 0,05, **P < 0,01, ***P < 0,001 und ****P < 0,0001; NS, nicht signifikant.
Das SARS-CoV-2 S-Protein besteht aus zwei Domänen: der S1-Domäne, die mit dem ACE2-Rezeptor interagiert, und der S2-Domäne, die für die Membranfusion verantwortlich ist32. Innerhalb der S1-Domäne liegen eine N-terminale Domäne (NTD) und eine Rezeptorbindungsdomäne (RBD), die das Rezeptorbindungsmotiv (RBM) enthält, das direkten Kontakt mit dem ACE2-Rezeptor herstellt33. Die NTD von Omicron S weist 11 Aminosäureveränderungen auf, darunter 6 Deletionen und eine 3-aminosäurelange Insertion, während die RBD 15 Mutationen enthält, von denen 10 im RBM konzentriert sind (Extended). Daten Abb. 1). Sowohl der NTD als auch der RBD beherbergen neutralisierende Epitope34–37, aber der RBD ist immundominant und stellt das primäre Ziel der neutralisierenden Aktivität dar, die in SARS-CoV-2-Immunseren vorhanden ist37,38. Um festzustellen, ob der Neutralisationsresistenz-Phänotyp von Omicron durch Mutationen in einer bestimmten Domäne des S-Proteins verursacht wird, haben wir zwei Gruppen chimärer Viren generiert. Die erste Gruppe bestand aus dem WA1-Virus, das die NTD, RBD oder RBM von Omicron trug (Abb. 4c), und die zweite Gruppe bestand aus dem Omi-S-Virus, das die NTD, RBD oder RBM von WA1 trug (Abb. 4d). Der Neutralisationstest zeigte, dass Mutationen im RBM die Hauptursache für Omicrons Resistenz gegen die impfstoffinduzierte humorale Immunität waren: Der Ersatz des RBM von WA1 durch den von Omicron verringerte den ND50 um das 5,4--Fache (P < 0,0001). und umgekehrt erhöhte der Ersatz des RBM von Omi-S durch den von WA1 den ND50 um das 5,6-fache (P=0,0003) (Abb. 4c, d). Die Tatsache, dass keines der RBM-Swap-Viren den etwa {{47}fachen Unterschied zwischen WA1 und Omi-S erreichte, legt nahe, dass Mutationen in anderen Teilen von S ebenfalls zur Impfstoffresistenz beitragen.
Um zu untersuchen, ob spezifische Mutationen in Omicron RBM das Entweichen von Impfstoffen vorantreiben, haben wir zwei zusätzliche Panels rekombinanter Viren erstellt, eines mit WA1 S, das Omicron RBM-Mutationen trägt, entweder einzeln oder in Kombination (Abb. 4e), und das andere mit Omicron S, dem diese Mutationen fehlen Reihe von Mutationen (Abb. 4f). Zwei WA1-Mutanten – Mutante 3 (mit einer E484A-Substitution) und Mutante 4 (mit einem Cluster aus fünf Substitutionen Q493R, G496S, Q498R, N501Y und Y505H) – zeigten einen moderaten, aber statistisch signifikanten Rückgang um das 1,4-fache ( P=0.0002) bzw. das 1.8-fache (P=0.0003) der ND50-Werte im Vergleich zu WA1 (Abb. 4e). Das Gegenteil wurde beobachtet, als diese Mutationen aus Omicron S entfernt wurden; Die Omicron-Mutante 3 (ohne die E484A-Substitution) und die Mutante 4 (ohne Q493R, G496S, Q498R, N501Y und Y505H) hatten das 1,9-fache (P=0,0082) und das 3,{{38}fache (P=0,0082). }}fach (P=0.0025) höhere ND50-Werte im Vergleich zu Omicron (Abb. 4f). Da keiner der Mutanten den Gesamtphänotyp von Omicron erfasste, gehen wir davon aus, dass das Entkommen des Impfstoffs ein kumulativer Effekt von Mutationen ist, die über die Länge des S-Proteins verteilt sind. Es ist möglich, dass Mutationen die Konformation von Omicron S so verändern, dass die meisten immundominanten neutralisierenden Epitope zerstört werden und für die Neutralisierung nicht mehr verfügbar sind.

Cistanche tubulosa – verbessert das Immunsystem
Diskussion
Diese Studie liefert wichtige Erkenntnisse über virale Proteine, die zur Pathogenität von SARS-CoV-2 beitragen. Wir zeigen, dass S, das am stärksten mutierte Protein in Omicron, eine unvollständige Rolle bei der Omicron-Abschwächung spielt. In zellbasierten Infektionstests weist das Omi-S-Virus eine mittlere Replikationseffizienz zwischen dem Vorfahrenvirus und Omicron auf. In ähnlicher Weise steht Omi-S bei K18-hACE2-Mäusen im Gegensatz zu nicht-tödlichem Omicron und führt zu einer Mortalität von 80 %; Das angestammte Virus verursacht bei diesen Mäusen eine 100-prozentige Sterblichkeit. Als wir S-Mutationen mit Mutationen in nsp6 kombinierten, zeigte das Virus insbesondere einen abgeschwächten Phänotyp, der weitgehend dem von Omicron ähnelte, was darauf hindeutet, dass diese beiden Proteine die Hauptdeterminanten der Omicron-Pathogenität sind. Zukünftige Studien werden die Mechanismen entschlüsseln, durch die nsp6-Mutationen die Virusreplikation beeinflussen.
Eine mögliche Einschränkung unserer Studie ist die Verwendung von K18-hACE2-Mäusen für Pathogenesestudien anstelle von Primatenmodellen, die mehr Ähnlichkeiten mit Menschen aufweisen39. Es sollte jedoch beachtet werden, dass K18-hACE2-Mäuse ein gut etabliertes Modell zur Untersuchung des tödlichen Phänotyps von SARS-CoV-24 sind,31. Obwohl diese Mäuse nach einer SARS-CoV-2-Infektion eine Lungenpathologie entwickeln, wurde die Mortalität mit der Beteiligung des Zentralnervensystems aufgrund der viralen Neuroinvasion und -verbreitung in Verbindung gebracht31,40. Die Tatsache, dass eine Infektion von K18-hACE2-Mäusen mit Omi-S, aber nicht mit Omicron, neurologische Symptome hervorruft (z. B. gebeugte Haltung und mangelnde Reaktionsfähigkeit), legt nahe, dass die Neuroinvasionseigenschaft bei Omi-S erhalten bleibt. wahrscheinlich aufgrund seiner höheren Replikationseffizienz und dass die Determinanten dieser Eigenschaft außerhalb des S-Proteins liegen. Diese Ergebnisse stehen im Einklang mit einer früheren Studie, die zeigte, dass mit Omi-S infizierte Hamster deutlich mehr Viren ausschieden und mehr Gewicht verloren als mit Omicron infizierte Hamster, was darauf hindeutet, dass Mutationen außerhalb von S zur abgeschwächten Pathogenität von Omicron41 beitragen.
Wir fanden heraus, dass, obwohl sich das angestammte Virus hauptsächlich in Lungenalveolen repliziert und bei K18-hACE2-Mäusen nur selten eine Infektion der Bronchiolen verursacht, sowohl Omi-S als auch Omicron eine erhöhte Neigung zur Replikation im Bronchiolenepithel aufweisen, was darauf hindeutet, dass das S Protein ist für den veränderten Tropismus verantwortlich. Der Mechanismus hinter diesem Wechsel ist unbekannt, aber es ist möglich, dass Omicron S bei der Verwendung von Cathepsin B oder Cathepsin L effizienter ist als WT S (Ref. 25, 42, 43), die einen aktiven Viruseintrittsweg in Bronchiolen und anderen Atemwegen bilden Zellen41. Im Gegensatz dazu wird der Eintritt von SARS-CoV-2 in Alveolarepithelzellen hauptsächlich durch TMPRSS2 vorangetrieben (Ref. 28,44), das Omicron S nicht ausreichend nutzen kann25,45, was zu einer schlechten Infektion dieser Zellen führt4,5 ,25,43. Diese Ergebnisse könnten die durch Omicron verursachte abgeschwächte Lungenpathologie erklären.

Vorteile von Cistanche: Stärkung des Immunsystems
Omicron nsp6 weist im Vergleich zum Prototyp des SARS-CoV-2-Wuhan-Hu-1-Isolats zwei veränderte Stellen auf: eine drei Aminosäuren umfassende Deletion (LSG, Positionen 105–107) und eine I189V-Substitution (Extended Data Abb . 9). Mehrere Funktionen von nsp6 bei der Coronavirus-Replikation wurden beschrieben; Die wichtigste davon ist die Biogenese von Doppelmembranvesikeln (DMVs), die den Ort der viralen RNA-Synthese darstellen46–50. Eine frühere Studie zeigte, dass SARS-CoV-2 DMVs hauptsächlich durch die konzertierte Wirkung von drei viralen Proteinen erzeugt werden: nsp3, nsp4 und nsp6; Obwohl nsp3 und nsp4 für die Bildung von DMVs ausreichen, verbindet nsp6 diese DMVs mit dem endoplasmatischen Retikulum und kanalisiert die wesentliche Kommunikation zwischen diesen Strukturen46. Ob die Mutationskonstellation in Omicron nsp6 die Bildung oder Funktionen von DMV beeinflusst, bedarf weiterer Untersuchungen. Nsp6 aktiviert auch die NLR3-abhängige Zytokinproduktion und Pyroptose in der Lunge von Patienten mit COVID-19 und dient als wichtiger Virulenzfaktor47. Bemerkenswert ist, dass eine nsp6-Variante, die mit asymptomatischem COVID-19 assoziiert ist, eine verringerte Fähigkeit zur Auslösung von Pyroptose aufwies47, was zu Spekulationen führte, dass Mutationen in Omicron nsp6 auch Pyroptose beeinflussen könnten. Detaillierte mechanistische Studien sind erforderlich, um die Wirkung von Omicron-Mutationen auf die Funktionen von nsp6 zu untersuchen.
Es ist derzeit nicht bekannt, ob Mutationen in S und nsp6 zusammenwirken, um die Omicron-Abschwächung voranzutreiben. Angesichts der Tatsache, dass Omicron S eine höhere Vorliebe für Bronchiolen zeigte, ist es möglich, dass S für den veränderten Virustropismus verantwortlich ist, wohingegen Nicht-Spike-Mutationen – einschließlich derjenigen in nsp6- lediglich Anpassungen an die veränderte Gewebeumgebung sind. Es ist erwähnenswert, dass, obwohl nsp6 das wichtigste Nicht-Spike-Protein hinter der Omicron-Abschwächung zu sein scheint, der Beitrag anderer viraler Proteine nicht vollständig ausgeschlossen werden kann. In-vitro-Experimente zur Untersuchung der Rolle von Nicht-Spike-Mutationen wurden alle in ACE2/TMPRSS2/Caco{9}}-Zellen durchgeführt. Die Verwendung anderer, immunkompetenterer Zelltypen könnte auch die Wirkung anderer Nicht-Spike-Mutationen aufdecken. Darüber hinaus enthielten unsere chimären Viren Omicron S gepaart mit jeweils nur einem Nicht-Spike-Protein, was epistatische Wechselwirkungen über große Entfernungen zwischen Mutationen in mehreren viralen Proteinen einschränkte.

Vorteile von Cistanche für Männer: Stärkung des Immunsystems
Unsere Studie zeigt, dass Mutationen im RBM von Omicron S die Hauptdeterminanten dafür sind, dass Omicron den neutralisierenden Antikörpern entkommt, obwohl auch Mutationen in anderen Regionen von S dazu beitragen. Innerhalb des RBM identifizieren wir zwei Hotspots von Mutationen, die Omicron S die Fähigkeit verleihen, der Neutralisierung zu widerstehen: einer mit der E484A-Substitution und der andere mit einer Gruppe von fünf Substitutionen – Q493R, G496S, Q498R, N501Y und Y505H. Es wurde gezeigt, dass die E484A-Substitution der Neutralisierung durch Rekonvaleszenzseren entgeht51. Darüber hinaus deuten Strukturmodelle darauf hin, dass einige therapeutische monoklonale Antikörper hochstabile Salzbrücken mit dem E484-Rest bilden und ihre Bindung vollständig verlieren, wenn dieser Rest in A oder nach Q493K- und Y505H-Änderungen geändert wird52. In ähnlicher Weise ergab die Kartierung von RBM-Resten, die direkt mit 49 bekannten neutralisierenden Antikörpern interagieren, N440, G446, S477 und T478 als Niederfrequenz-Interaktoren, N501, Y505 und Q498 als Mittelfrequenz-Interaktoren und E484 und Q493 als Hochfrequenz-Interaktoren53 , im Einklang mit unseren Ergebnissen des Neutralisationstests. Obwohl das Antikörperbindungspotenzial von Omicron S beeinträchtigt ist54, ist seine Rezeptorbindungskapazität intakt. Tatsächlich hat das Omicron-RBD eine höhere Affinität für ACE2 im Vergleich zu den Wuhan-Hu-1- und Delta-RBDs25. Dies weist darauf hin, dass sich Mutationen in Omicron S so entwickelt haben, dass sie die Antikörperbindung behindern, aber die Rezeptorbindung aufrechterhalten. Dies eröffnet die Möglichkeit, auf die konservierten und strukturell eingeschränkten Regionen von S, die an der ACE2-Erkennung beteiligt sind, abzuzielen, um Breitbandimpfstoffe zur Bekämpfung der COVID-19-Pandemie zu entwickeln.
Verweise
1. Liu, L. et al. Auffallende Antikörperumgehung durch die Omicron-Variante von SARS-CoV-2. Natur 602, 676–681 (2022).
2. Planas, D. et al. Erhebliches Entweichen von SARS-CoV-2 Omicron zur Antikörperneutralisierung. Natur 602, 671–675 (2022).
3. Schmidt, F. et al. Plasmaneutralisierung der SARS-CoV-2 Omicron-Variante. N. engl. J. Med. 386, 599–601 (2022).
4. Shuai, H. et al. Abgeschwächte Replikation und Pathogenität von SARS-CoV-2 B.1.1.529 Omicron. Natur 603, 693–699 (2022).
5. Halfmann, PJ et al. Das SARS-CoV-2-Omicron-Virus verursacht eine abgeschwächte Erkrankung bei Mäusen und Hamstern. Natur 603, 687–692 (2022).
6. Lewnard, JA et al. Klinische Ergebnisse im Zusammenhang mit einer Infektion mit der Variante SARS-CoV-2 Omicron (B.1.1.529) und der Subvariante BA.1/BA.1.1 oder BA.2 in Südkalifornien. Nat. Med. 28, 1933–1943 (2022).
7. Wolter, N. et al. Frühzeitige Beurteilung des klinischen Schweregrads der SARS-CoV-2-Omicron-Variante in Südafrika: eine Datenverknüpfungsstudie. Lancet 399, 437–446 (2022).
8. Ulloa, AC, Buchan, SA, Daneman, N. & Brown, KA Schätzungen zum Schweregrad der SARS-CoV-2 Omicron-Variante in Ontario, Kanada. Marmelade. Med. Assoc. 327, 1286–1288 (2022).
9. Uraki, R. et al. Charakterisierung von SARS-CoV-2 Omicron BA.4- und BA.5-Isolaten bei Nagetieren. Natur 612, 540–545 (2022).
10. Uraki, R. et al. Charakterisierung und antivirale Anfälligkeit von SARS-CoV-2 Omicron BA.2. Natur 607, 119–127 (2022).
11. Dyer, O. Covid-19: Omicron verursacht mehr Infektionen, aber weniger Krankenhauseinweisungen als Delta, südafrikanische Daten zeigen. Br. Med. J. 375, n3104 (2021).
12. Sigal, A. Leichtere Erkrankung mit Omicron: Liegt es am Virus oder an der bereits bestehenden Immunität? Nat. Rev. Immunol. 22, 69–71 (2022).
13. WER. Verfolgung von SARS-CoV-2-Varianten https://www.who.int/en/activities/tracking-SARS CoV-2-variants/ (2022).
14. Cele, S. et al. Omicron entgeht weitgehend, aber unvollständig, der Neutralisierung von Pfizer BNT162b2. Natur 602, 654–656 (2022).
15. Gu, H. et al. Wahrscheinliche Übertragung der SARS-CoV-2-Omicron-Variante in einem Quarantänehotel, Hongkong, China, November 2021. Emerg. Infizieren. Dis. 28, 460–462 (2022).
16. Iuliano, AD et al. Trends bei der Schwere der Erkrankung und der Inanspruchnahme der Gesundheitsversorgung während der frühen Omicron-Variantenperiode im Vergleich zu früheren SARS-CoV-2-Hochübertragungsperioden – Vereinigte Staaten, Dezember 2020–Januar 2022. Morb. Sterblich. Wkly Rep. 71, 146–152 (2022).
17. CDC. COVID Data Tracker https://covid.cdc.gov/covid-data-tracker/#variant-proportions (2022).
18. Taylor, L. Covid-19: Omicron erreicht wöchentlichen Rekordwert bei weltweiten Infektionen. Br. Med. J. 376, o66 (2022).
19. Dejnirattisai, W. et al. SARS-CoV-2 Omicron-B.1.1.529 führt dazu, dass neutralisierende Antikörperreaktionen weitgehend vermieden werden. Zelle 185, 467–484 (2022).
20. Suzuki, R. et al. Abgeschwächte Fusogenität und Pathogenität der SARS-CoV-2 Omicron-Variante. Natur 603, 700–705 (2022).
21. Smyth, DS et al. Verfolgung kryptischer SARS-CoV-2-Abstammungslinien, die im Abwasser von NYC entdeckt wurden. Nat. Komm. 13, 635 (2022).
22. Kirby, AE et al. Notizen aus der Praxis: Frühe Hinweise auf die Variante SARS-CoV-2 B.1.1.529 (Omicron) im kommunalen Abwasser – USA, November–Dezember 2021. Morb. Sterblich. Wkly Rep. 71, 103–105 (2022).
23. Herrmann, A. et al. Klonierung eines passagefreien SARS-CoV-2-Genoms und Mutagenese mittels roter Rekombination. Int. J. Mol. Wissenschaft. 22, 10188 (2021).
24. Liu, G. & Gack, MU Eine optimierte, auf einer zirkulären Polymerase-Verlängerungsreaktion basierende Methode zur Funktionsanalyse von SARS-CoV-2. Vorabdruck unter https://doi.org/10.1101/2022.11.26.518005 (2022).
25. Meng, B. et al. Veränderte TMPRSS2-Nutzung durch SARS-CoV-2 Omicron wirkt sich auf Tropismus und Fusogenität aus. Natur 603, 706–714 (2022).
26. Willett, BJ et al. SARS-CoV-2 Omicron ist eine Immun-Escape-Variante mit einem veränderten Zelleintrittsweg. Nat. Mikrobiol. 7, 1161–1179 (2022).
27. Martines, RB et al. Pathologie und Pathogenese von SARS-CoV-2 im Zusammenhang mit einer tödlichen Coronavirus-Erkrankung, Vereinigte Staaten. Emerg. Infizieren. Dis. 26, 2005–2015 (2020).
28. Huang, J. et al. Eine SARS-CoV-2-Infektion von aus pluripotenten Stammzellen gewonnenen menschlichen Lungenalveolarzellen vom Typ 2 löst eine schnelle epitheliale Entzündungsreaktion aus. Cell Stem Cell 27, 962–973 (2020).
29. Mulay, A. et al. SARS-CoV-2-Infektion des primären menschlichen Lungenepithels für die COVID-19-Modellierung und Arzneimittelentwicklung. Cell Rep. 35, 109055 (2021).
30. Liu, S., Selvaraj, P., Sangare, K., Luan, B. & Wang, TT Spike-Protein-unabhängige Abschwächung der SARS-CoV-2 Omicron-Variante in Labormäusen. Cell Rep. 40, 111359 (2022).
31. Carossino, M. et al. Die tödliche Neurodissemination und der SARS-CoV-2-Tropismus bei K18-hACE2-Mäusen hängen nur teilweise von der hACE2-Expression ab. Viren 14, 535 (2022).
32. Huang, Y., Yang, C., Xu, . Acta Pharmacol. Sünde. 41, 1141–1149 (2020).
33. Lan, J. et al. Struktur der SARS-CoV-2-Spike-Rezeptor-Bindungsdomäne, die an den ACE2-Rezeptor gebunden ist. Natur 581, 215–220 (2020).
34. Chi, X. et al. Ein neutralisierender menschlicher Antikörper bindet an die N-terminale Domäne des Spike-Proteins von SARS-CoV-2. Wissenschaft 369, 650–655 (2020).
35. Voss, WN et al. Prävalente, schützende und konvergente IgG-Erkennung von SARS-CoV-2-Nicht-RBD-Spike-Epitopen. Wissenschaft 372, 1108–1112 (2021).
36. Premkumar, L. et al. Die Rezeptorbindungsdomäne des viralen Spike-Proteins ist ein immundominantes und hochspezifisches Ziel von Antikörpern bei SARS-CoV-2-Patienten. Wissenschaft. Immunol. 5, eabc8413 (2020).
37. Ju, B. et al. Menschliche neutralisierende Antikörper, die durch eine SARS-CoV-2-Infektion hervorgerufen werden. Natur 584, 115–119 (2020).
38. Piccoli, L. et al. Kartierung neutralisierender und immundominanter Stellen auf der SARS-CoV-2-Spike-Rezeptor-Bindungsdomäne durch strukturgesteuerte hochauflösende Serologie. Zelle 183, 1024–1042 (2020).
39. Chang, MC, Hild, S. & Grieder, F. Nichtmenschliche Primatenmodelle für die SARS-CoV-2-Forschung: Erwägen Sie Alternativen zu Makaken. Laboranimation. 50, 113–114 (2021).
40. Kumari, P. et al. Neuroinvasion und Enzephalitis nach intranasaler Inokulation von SARS CoV-2 bei K18-hACE2-Mäusen. Viren 13, 132 (2021).
41. Peacock, TP et al. Der veränderte Eintrittsweg und die Antigendistanz der SARS-CoV-2-Omicron-Variante kartieren auf getrennte Domänen des Spike-Proteins. Vorabdruck unter https://doi.org/10.1101/2021.12.31.474653 (2022).
42. Padmanabhan, P. & Dixit, NM Modellierung, wie sich die veränderte Nutzung von Zelleintrittswegen durch die Omicron-Variante von SARS-CoV-2 auf die Wirksamkeit und Synergie von TMPRSS2- und Cathepsin-B/L-Inhibitoren auswirken kann. Vorabdruck unter https://doi.org/10.1101/2022.01.13.476267 (2022).
43. Hui, KPY et al. Replikation der SARS-CoV-2 Omicron-Variante im menschlichen Bronchus und in der Lunge ex vivo. Natur 603, 715–720 (2022).
44. Grau-Exposito, J. et al. Bewertung des SARS-CoV-2-Eintritts, der Entzündung und neuer Therapeutika in menschlichen Lungengewebezellen. PLoS Pathog. 18, e1010171 (2022).
45. Zhao, H. et al. Die SARS-CoV-2-Omicron-Variante zeigt im Vergleich zur Delta-Variante in TMPRSS2--exprimierten Zellen eine weniger effiziente Replikations- und Fusionsaktivität. Emerg. Mikroben infizieren. 11, 277–283 (2022).
46. Ricciardi, S. et al. Die Rolle von NSP6 bei der Biogenese des SARS-CoV-2-Replikationsorganells. Natur 606, 761–768 (2022).
47. Sun, X. et al. Das nichtstrukturelle Protein 6 von SARS-CoV-2 löst eine NLRP3-abhängige Pyroptose aus, indem es auf ATP6AP1 abzielt. Zelltod ist unterschiedlich. 29, 1240–1254 (2022).
48. Cottam, EM, Whelband, MC & Wileman, T. Coronavirus NSP6 schränkt die Autophagosomenexpansion ein. Autophagie 10, 1426–1441 (2014).
49. Benvenuto, D. et al. Evolutionsanalyse von SARS-CoV-2: Wie sich eine Mutation des Nichtstrukturproteins 6 (NSP6) auf die virale Autophagie auswirken könnte. J. Infizieren. 81, e24–e27 (2020).
50. Gosert, R., Kanjanahaluethai, A., Egger, D., Bienz, K. & Baker, SC Die RNA-Replikation des Maus-Hepatitis-Virus findet an Doppelmembranvesikeln statt. J. Virol 76, 3697–3708 (2002).
51. Liu, Z. et al. Identifizierung von SARS-CoV-2-Spike-Mutationen, die die Neutralisierung monoklonaler Antikörper und Serumantikörper abschwächen. Cell Host Microbe 29, 477–488 (2021).
52. Shah, M. & Woo, HG Omicron: Eine stark mutierte SARS-CoV-2-Variante weist eine stärkere Bindung an ACE2 auf und entgeht zugelassenen therapeutischen COVID-19-Antikörpern wirksam. Vorderseite. Immunol. 12, 830527 (2021).
53. Ye, G., Liu, B. & Li, F. Kryo-EM-Struktur einer SARS-CoV-2-Omicron-Spike-Protein-Ektodomäne. Nat. Komm. 13, 1214 (2022).
54. Carreno, JM et al. Aktivität von Rekonvaleszenten- und Impfserum gegen SARS-CoV-2 Omicron. Natur 602, 682–688 (2022).